A Via mTOR: Um Centro Regulador Principal no Envelhecimento e na Longevidade
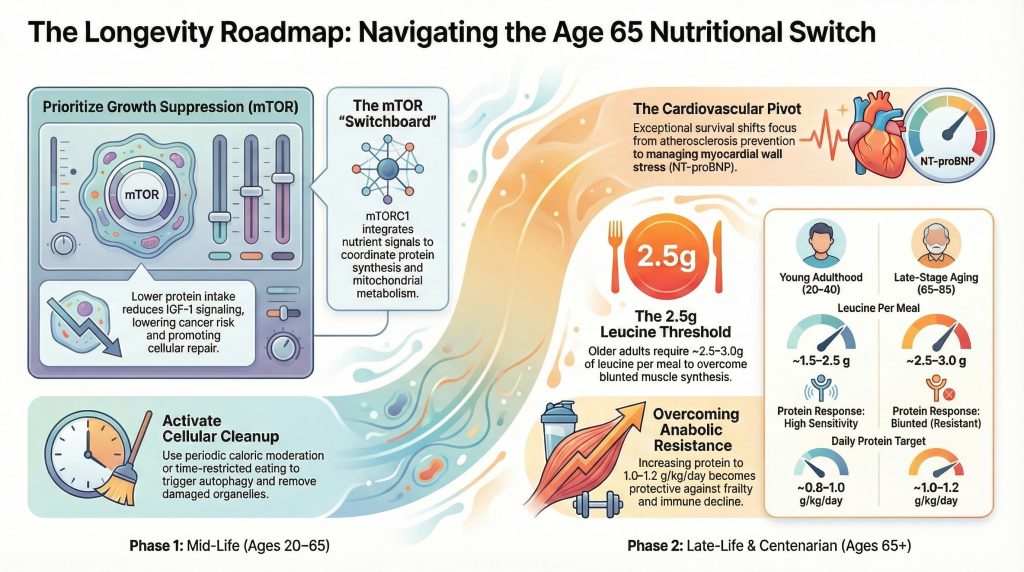
O mTOR funciona como um “painel de controle” metabólico conservado que integra o status energético celular, fatores de crescimento e disponibilidade de aminoácidos para coordenar proteína síntese, autofagia, metabolismo mitocondrial e respostas ao estresse [1,2]. Em organismos modelo—incluindo leveduras, moscas e camundongos—aumentos na sinalização anabólica associados à idade e a depuração autofágica reduzida estão repetidamente ligados ao declínio funcional e ao encurtamento da expectativa de vida, implicando a atividade excessiva de mTORC1 como um contribuinte para a biologia do envelhecimento, em vez de um correlato neutro [1–3].
Arquitetura Molecular dos Complexos mTOR
O mTOR existe em dois complexos funcional e estruturalmente distintos: mTORC1 e mTORC2. Embora ambos compartilhem a subunidade catalítica do mTOR, seus arcabouços determinam a especificidade de substrato e os resultados biológicos. O mTORC1 é o complexo sensível a nutrientes, definido por RAPTOR, e regula a tradução por meio de alvos como S6K1 e 4E-BP1 [2,3]. O mTORC2 é definido pelo RICTOR e desempenha um papel importante na organização do citoesqueleto e na sinalização de sobrevivência mediada por Akt [2].
A hiperativação do mTORC1 na meia-idade e velhice está mecanicamente ligada à patologia associada à idade, incluindo sinalização de crescimento promotora de câncer, prejudicada homeostase proteica, disfunção metabólica e doença vascular [2–4]. Ao promover a tradução contínua enquanto suprime a autofagia (incluindo mitofagia), a atividade excessiva de mTORC1 pode acelerar o acúmulo de organelas danificadas e proteínas mal dobradas — “entupindo” funcionalmente os sistemas de manutenção celular e amplificando os fenótipos associados à senescência [2,4].
Tabela 1. Componentes Estruturais e Funções Regulatórias do mTORC1
| Componente | Função | Papel na sinalização do envelhecimento |
| mTOR | Quinase de Ser/Thr catalítica | Integrador mestre de sinais de nutrientes e energia2] |
| RAPTOR | andaime de recrutamento de substrato | Permite a fosforilação de S6K1 e 4E-BP12,3] |
| mLST8 | Estabilizador do domínio quinase | Suporta a integridade estrutural e a sinalização de saída2] |
| DEPTOR | Inibidor endógeno | A expressão/atividade reduzida pode dessinibirem a sinalização de mTOR2] |
| PRAS40 | Inibidor regulado por Akt | Links insulinaSinalização de Akt para a ativação de mTORC12] |
| Tti1/Tel2 | Fatores de montagem/estabilidade | Necessário para a formação correta do complexo2] |
Intervenções direcionadas ao mTOR. Inibição farmacológica de mTORC1 com rapamicina e intervenções nutricionais, tais como restrição calórica (RC) estão entre as estratégias que mais prolongam a vida e a saúde e que são reprodutíveis em sistemas modelo1–3. Em camundongos, a rapamicinha pode prolongar o tempo de vida mesmo quando iniciada mais tarde na vida, apoiando a visão de que o mTOR permanece modificável ao longo da trajetória do envelhecimento [1]. A RC consistentemente reduz a sinalização de crescimento, estimula a autofagia e preserva a eficiência metabólica. É mais preciso descrever a inibição da mTOR/RC como uma das intervenções pró-longevidade mais consistentes entre os táxons do que como a única intervenção desse tipo, uma vez que várias manipulações (por exemplo, alterações genéticas na sinalização de insulina/IGF) também prolongam o tempo de vida em organismos específicos [1–3].
O Continuum da Resistência Anabólica e a Sinalização da Leucina
À medida que os humanos fazem a transição da idade adulta jovem para o envelhecimento avançado (frequentemente operacionalizado como ≥65 anos), o músculo esquelético exibe progressivamente resistência anabólica—uma estimulação embotada de síntese proteica muscular (SPM) em resposta à proteína alimentar e ao exercício de resistência5,6]. Em indivíduos mais jovens, doses moderadas de proteína de alta qualidade podem desencadear uma robusta MPS. Em adultos mais velhos, o “limiar anabólico” aumenta; maior disponibilidade de aminoácidos essenciais (AAE) — particularmente leucina—é necessário para ativar o início da tradução e alcançar respostas MPS comparáveis [5–7]. Os mecanismos contribuintes incluem perfusão prejudicada e entrega de aminoácidos, redução sensibilidade à insulina, alteração na sinalização intracelular muscular e inflamação crônica de baixo grau inflamação [5,6].
O mecanismo sensor de Sestrin2-leucina
A leucina se destaca entre os aminoácidos de cadeia ramificada porque atua tanto como substrato quanto como sinal para a ativação do mTORC1. Sestrin2 atua como um sensor de leucina citosólico que regula o mTORC1 por meio do complexo GATOR2 e as GTPases Rag8,9Em condições de baixo nível de leucina, a Sestrina2 restringe o GATOR2, suprimindo a ativação de Rag e limitando o recrutamento lisossomal do mTORC18,9Quando a leucina é abundante, ela se liga a um bolsão hidrofóbico conservado na Sestrin2, desencadeando uma mudança conformacional que interrompe a interação Sestrin2–GATOR2 e permite a ativação a jusante de mTORC18,9O trabalho estrutural demonstra determinantes de especificidade que favorecem a leucina em vez da valina/isoleucina, incluindo complementaridade hidrofóbica e reconhecimento coordenado dos grupos amino e carboxila da leucina8,9].
Limites para Superar a Resistência Anabólica
Para a geronutrição prática, a questão fundamental não é se a leucina sinaliza o mTORC1, mas quanta exposição à leucina é necessária para superar a resistência anabólica. Análises observacionais de ponto de virada (breakpoint) em adultos mais velho identificaram um platô para a ingestão diária de leucina associada à massa e força muscular dos membros inferiores de aproximadamente 7,6–8,0 g/dia, equivalente a cerca de 110–115 mg/kg/dia em coortes típicas de idosos [10Em paralelo, a alimentação controlada e a orientação de consenso de especialistas comumente enfatizam que os idosos frequentemente necessitam de ~2,5–3,0 g de leucina por refeição (geralmente fornecida por ~25–40 g de proteína de alta qualidade) para estimular robustamente a Síntese Proteica Muscular (MPS) [6,7Os métodos de oxidação de aminoácidos indicadores sugerem ainda que as necessidades de leucina em adultos mais velhos podem exceder as recomendações atuais, apoiando o conceito de que a leucina pode se tornar limitante quando a qualidade da proteína ou a ingestão total é baixa11].
Tabela 2. Alvo Comparativo de Proteína e Leucina ao Longo do Espectro do Envelhecimento
| Métrica | Início da idade adulta (20–40) | Envelhecimento avançado (65–85 anos) | Centenários (100+) |
| Ingestão Diária Recomendada (IDR) de proteína (mínimo) | 0,8 g/kg/dia | 0,8 g/kg/dia (muitas vezes insuficiente) | 0,8 g/kg/dia (muitas vezes insuficiente) |
| Meta diária prática de proteína | ~0,8–1,0 g/kg/dia | ~1,0–1,2 g/kg/dia (mais se fragilizado) [6] | individualizado; frequentemente ≥1,0 g/kg/dia se tolerado e seguro [6] |
| Proteína por refeição | ~20–30 g | ~25–40 g (distribuídos uniformemente) [6,7] | densidade semelhante ou maior por refeição se o apetite for limitado |
| Leucina por refeição | ~1,5–2,5 g | ~2,5–3,0 g (rico em leucina) [6,7] | alta densidade frequentemente necessária; restrições de apetite dominam |
| Resposta anabólica | alta sensibilidade | embotado (resistente) [5] | forte resistência provável; distribuição crítica |
| Status da autofagia | relativamente eficiente | frequentemente prejudicado | heterogêneo; pode ser preservado seletivamente em fenótipos resilientes |
A implicação clínica é que a dependência estrita da RDA padrão de proteínas pode ser inadequada para preservar a mobilidade e a independência em muitos adultos mais velho, particularmente quando o apetite diminui e a ingestão de energia cai [6]. A qualidade da proteína, a densidade de leucina e a distribuição entre as refeições tornam-se cada vez mais centrais para a manutenção da reserva funcional.
Transições Cardiovasculares: De Aterosclerose para Insuficiência Cardíaca e demência
No contexto da longevidade, o sistema cardiovascular segue uma trajetória distinta de adaptação e declínio. Aterosclerose subclínica é comum nos anos 70 e 80, mas entre os mais idosos, as causas dominantes de incapacidade e morte frequentemente mudam para insuficiência cardíaca, fragilidade e demência, refletindo o remodelamento miocárdico cumulativo, o endurecimento arterial e disfunção microvascular [12–14]. Isso não implica que a doença coronariana desapareça; pelo contrário, a expressão clínica da envelhecimento vascular envolve cada vez mais fenótipos de insuficiência cerebral e cardíaca.
Aterosclerose Subclínica e Risco Cognitivo
Coronário artéria calcificação (CAC) é um marcador robusto da carga aterosclerótica cumulativa. Vários estudos associam um CAC mais alto a uma estrutura e função cerebral piores, bem como a um risco aumentado de comprometimento cognitivo e desfechos de demência em adultos mais velhos [12,13Trabalhos recentes também sugerem que a progressão da CAC pode carregar sinais incrementais de risco de demência em coortes prospectivas [14]. A ponte mecânica é plausivelmente o envelhecimento vascular compartilhado: disfunção endotelial, perfusão cerebral prejudicada, carga de microinfartos e sinalização pró-inflamatória que acelera a vulnerabilidade neurodegenerativa [15].
Rigidez Vascular como um Fator Determinante da Senescência Endotelial
Um conceito crítico no envelhecimento cardiovascular é que a rigidez vascular não é meramente a consequência da placa acúmulo, mas pode funcionar como um impulsionador mecanobiológico da disfunção endotelial. O endurecimento impulsionado por elastina degradação, remodelamento de colagênio e ligações cruzadas aumentam o estresse endotelial e alteram mecanotransdução vias. A literatura vascular-envelhecida experimental e integrativa apoia que o aumento da rigidez e o fluxo alterado promovem programas de sinalização prós-senescentes e produção de mediadores inflamatórios consistentes com fenótipos de envelhecimento endotelial [16,17]. Isso contribui para um circuito de retroalimentação feed-forward no qual a rigidez amplifica a inflamação e o remodelamento, e a inflamação acelera ainda mais matriz extracelular disfunção16,17].
Tabela 3. Cardiovascular Biomarcadores e o Contexto de Risco na Longevidade Excepcional
| Biomarcador / característica | Envelhecimento padrão (anos 80) | Centenários (100+) | Implicações para a sobrevivência |
| NT-proBNP | frequentemente elevado com a idade | relativamente menor em subgrupos excepcionalmente sobreviventes | NT-proBNP mais baixo associado à vantagem de sobrevia nas idades mais avançadas18] |
| Custo de aquisição de clientes | comumente presente | variável; menor carga apoia o cérebro /resiliência vascular | CAC mais alto associado a piores resultados cerebrais e risco de demência12–14] |
| Rigidez vascular | frequentemente aumentado | elasticidade preservada em fenótipos resilientes | reduz o estresse endotelial e apoia a saúde microvascular16,17] |
| Albumina | declina com a idade/inflamação | albumina mais alta indica melhor reserva | Níveis baixos de albumina estão associados a maior mortalidade em todas as faixas etárias [18] |
Um marcador particularmente forte e reproduzível em estudos com os “idosos mais avançados” é o NT-proBNP. Em coortes longitudinais agregadas que incluem centenários e (semi-)supercentenários, a relação entre o NT-proBNP e a mortalidade permanece robusta mesmo após o ajuste para fatores tradicionais fatores de risco e indicadores da reserva orgânica [18]. Esses achados corroboram a ideia de que a resistência ao estresse da parede miocárdica e a fisiologia da insuficiência cardíaca subclínica são componentes-chave da sobrevivência excepcional.
A “mudança” nutricional: o limiar crítico por volta dos 65 anos
Uma das principais descobertas translacionais na pesquisa sobre longevidade é que a estratégia nutricional ideal não permanece estática ao longo da vida. Uma importante “mudança metabólica” ocorre por volta dos 65 anos, quando a relação risco-benefício associada à ingestão de proteínas e aos sinais de crescimento sofre alterações significativas.
Os benefícios de uma dieta com baixo teor de proteínas na meia-idade
Durante a meia-idade, padrões de menor ingestão de proteínas têm sido associados a uma menor sinalização do IGF-1 e a um risco reduzido de câncer em algumas coortes, o que está de acordo com a visão de que a sinalização crônica de crescimento pode ser prejudicial quando os mecanismos de reparo e vigilância começam a se deteriorar [19]. Nessa fase, a meta nutricional geralmente enfatiza a sensibilidade à insulina, saúde metabólica, e a ativação periódica de vias de manutenção, como a autofagia — alcançada por meio de hábitos como a ingestão moderada de proteínas, a alimentação com restrição de horário ou a moderação calórica [2,19].
A necessidade de alta ingestão de proteínas na terceira idade
Após os ~65 anos, o perfil de risco se inverte. A baixa ingestão de proteínas passa a estar fortemente associada a resultados adversos causados por sarcopenia, fragilidade, quedas e redução da função imunológica [6,19]. Uma maior ingestão de proteínas contribui para a manutenção da massa muscular, da reserva funcional e da capacidade de resposta imunológica — sistemas que se tornam cada vez mais vulneráveis com a idade [6]. Em idosos, a distribuição de proteínas e a densidade de leucina tornam-se particularmente importantes à medida que o apetite diminui e as necessidades energéticas caem, tornando a densidade nutricional (e não apenas as calorias) um fator decisivo.
Em consonância com isso, um estudo prospectivo com adultos japoneses com idades entre 85 e 89 anos, sem incapacidade inicial (Projeto Kawasaki sobre Envelhecimento e Bem-estar), relatou níveis mais baixos de mortalidade por todas as causas risco nos grupos com maior e menor ingestão de proteínas, após ajuste para covariáveis clínicas, o que corrobora a ideia de que uma maior ingestão de proteínas pode ter efeito protetor na terceira idade avançada, quando a independência funcional é mantida [20]. É importante ressaltar que a fonte de proteína e o contexto alimentar continuam sendo relevantes; evidências de coortes mais amplas sugerem que a substituição de algumas fontes de proteína animal — especialmente carne vermelha e processada — por proteínas vegetais pode melhorar os resultados a longo prazo na população em geral [21].
Marcadores proteômicos e genéticos da resiliência dos centenários
Os centenários não “escapam” do envelhecimento; muitas vezes, eles retardam o início das doenças e reduzem a morbidade. A análise de perfis em nível sistêmico corrobora cada vez mais a existência de constelações de biomarcadores protetores em coortes de longevidade extrema. Estudos em larga escala sobre biomarcadores em idosos de idade muito avançada identificam perfis consistentes com a preservação da reserva orgânica e menor incidência de insuficiência cardíaca entre aqueles que atingem as idades mais avançadas, com o NT-proBNP emergindo como um marcador particularmente informativo [18]. Ao mesmo tempo, os padrões proteômicos em grupos com longevidade excepcional costumam refletir alterações no nível de inflamação e na eficiência metabólica, em vez de uma regulação positiva uniforme das proteínas clássicas de “defesa”.
O “paradoxo” redox e antioxidante”
Uma armadilha interpretativa recorrente é equiparar a menor abundância de certas proteínas associadas aos antioxidantes a defesas mais fracas. Em fenótipos de envelhecimento resiliente, a menor expressão de algumas proteínas de resposta ao estresse pode refletir uma menor carga oxidativa a montante, impulsionada por mitocôndrias mais eficientes e pela redução da sinalização inflamatória crônica. Em outras palavras, a homeostase redox pode ser alcançada por meio da redução da produção de espécies reativas, em vez de um nível máximo constante antioxidante implementação. Essa abordagem está em consonância com a literatura mecanicista e epidemiológica que associa estresse oxidativo caminhos para os resultados cognitivos e heterogeneidade nas trajetórias de envelhecimento cerebral [13].
Variantes genéticas e atraso no diagnóstico de doenças
As contribuições genéticas para a longevidade excepcional parecem atuar, em grande parte, por meio do adiamento de doenças, e não da prevenção do próprio envelhecimento. Entre os loci repetidamente associados a populações de longa vida estão APOE (especialmente o enriquecimento de APOE2), variantes do FOXO3A associadas à resposta ao estresse e à regulação da sinalização da insulina, e vias relacionadas aos lipídios, incluindo características associadas à CETP [22]. Essas variantes provavelmente contribuem para a resiliência vascular e metabólica, reduzindo a probabilidade de que lesões relacionadas à idade ultrapassem os limiares clínicos.
Tabela 4. Principais mecanismos moleculares e sua influência na longevidade
| Mecanismo | Impacto fisiológico | Papel na longevidade |
| Mitofagia | controle seletivo da qualidade mitocondrial | limita a produção de ROS provenientes de mitocôndrias disfuncionais; promove a resiliência energética [23] |
| Proteostase | síntese equilibrada, dobramento e degradação | reduz o acúmulo de proteínas agregadas e a disfunção das organelas [2,4] |
| Flexibilidade metabólica | alternância entre fontes de combustível | favorece níveis baixos de insulina basal e uma resposta adaptativa ao estresse [2,3] |
| Estabilidade epigenética | manutenção da regulação gênica | pode reduzir a ativação inadequada dos programas de crescimento/senescência [3] |
| Complância vascular | elasticidade arterial preservada | reduz a tensão nas paredes e contribui para a função microvascular do cérebro e do coração [15–17] |
Geronutrição de Precisão e Geroterapêutica Emergente
À medida que a gerociência amadurece, a integração de estratégias nutricionais com intervenções farmacológicas voltadas para os sinais característicos do envelhecimento tornou-se uma importante fronteira.
Intervenções farmacológicas direcionadas (baseadas em evidências)
- Rapamicina/rapalógos: Entre as intervenções mais eficazes para prolongar a expectativa de vida em modelos animais [1–3]. Em seres humanos, os primeiros estudos clínicos sugerem que a inibição da mTOR pode melhorar certos parâmetros imunológicos em idosos, o que reforça a relevância dessa abordagem para a gerociência, embora a extensão da expectativa de vida ainda não tenha sido comprovada [24].
- Agonistas do receptor do GLP-1: Demonstrar benefícios significativos nos resultados cardiometabólicos e cardiovasculares em ensaios clínicos randomizados em diabetes, com relevância secundária para a biologia do envelhecimento por meio da redução da adiposidade, da inflamação e do risco cardiometabólico [25].
- Inibidores da SGLT2: Apresentam reduções significativas nas hospitalizações por insuficiência cardíaca e na mortalidade cardiovascular em ensaios clínicos randomizados de resultados, sugerindo a preservação da resiliência cardiovascular; ligações mecanistas com a energia mitocondrial e a inflamação são plausíveis, mas alegações de alongamento dos telômeros ou de geroproteção definitiva devem ser consideradas como em fase de investigação [26].
- Urolitina A: A microbiota intestinal– um pós-biótico derivado que ativa as vias de mitofagia; evidências de ensaios clínicos randomizados indicam melhorias no desempenho muscular e nos perfis de biomarcadores mitocondriais em adultos de meia-idade, o que corrobora um papel plausível no controle de qualidade mitocondrial [27].
O papel da restrição calórica na saúde do cérebro
O cérebro apresenta vulnerabilidades específicas com o avanço da idade, incluindo o declínio da integridade da substância branca e da mielina, alterações inflamatórias na microglia e redução da resiliência metabólica. Estudos de mapeamento de alta resolução em modelos de envelhecimento indicam que a restrição calórica pode preservar programas gênicos específicos de cada região ligados à manutenção da mielina, reduzir a expressão de vias inflamatórias associadas ao envelhecimento e promover estados celulares associados à neuroproteção [28]. Embora não seja simples aplicar aos seres humanos a restrição calórica praticada há décadas, essas descobertas corroboram o conceito de que a moderação metabólica sustentada pode preservar a biologia neurovascular e da substância branca, relevante para a resiliência cognitiva.
Perspectivas regionais e impactos das políticas na longevidade
Os resultados em termos de longevidade não são determinados exclusivamente pela biologia; os ambientes alimentares e as estruturas políticas moldam a exposição a alimentos ultraprocessados, qualidade da alimentação e conhecimento nutricional. Ferramentas de saúde pública que reduzam o atrito na tomada de decisões podem, portanto, ter efeitos consideráveis no envelhecimento cardiometabólico em nível populacional.
Rotulagem na parte frontal da embalagem e alfabetização nutricional
Evidências de estudos randomizados indicam que os sistemas de rotulagem na parte frontal da embalagem — incluindo designs de rótulos semelhantes ao conceito de “Informações Nutricionais” proposto pela FDA — podem melhorar a compreensão do consumidor e incentivar padrões de escolha mais saudáveis em tarefas simuladas de compra [29,30]. Os efeitos podem variar de acordo com o nível de conhecimento nutricional e fatores sociodemográficos; rótulos graduados, no estilo de espectro, podem reduzir as disparidades na compreensão ao fornecerem sinais comparativos mais claros entre os produtos [29,30]. Essas descobertas são relevantes para a longevidade, pois pequenas melhorias sustentadas na qualidade da alimentação podem se acumular ao longo de décadas.
A vulnerabilidade ao estresse oxidativo como alvo de precisão
A vulnerabilidade individual ao estresse oxidativo e à sinalização inflamatória varia. Estudos genéticos e de inferência causal corroboram uma relação entre as vias do estresse oxidativo e os resultados cognitivos, sugerindo que a biologia redox possa contribuir para a heterogeneidade nas trajetórias de envelhecimento cerebral [13]. Isso reforça a perspectiva da nutrição de precisão: algumas pessoas podem se beneficiar de forma desproporcional com a otimização precoce do risco cardiometabólico, da qualidade da alimentação e de intervenções que reduzam a inflamação crônica e a carga oxidativa.
Conclusão: Um roteiro para a longevidade nutricional ao longo da vida
Alcançar uma longevidade excepcional requer uma transição estratégica nas prioridades nutricionais, alinhada às realidades biológicas do envelhecimento. A sobrevivência até a 11ª década parece ser favorecida pela preservação do controle de qualidade mitocondrial, pela manutenção da complacência vascular e por uma adequação nutricional suficiente para superar a resistência anabólica, apesar da diminuição do apetite e da reserva fisiológica.
Protocolo Nutricional Recomendado para Transições de Longevidade
- Início e meia-idade (20–65): Dê ênfase à saúde metabólica e a reduções periódicas na sinalização de crescimento (por exemplo, moderação calórica ou alimentação com restrição de horário). Mantenha uma ingestão moderada de proteínas e priorize padrões alimentares que promovam a saúde cardiometabólica e reduzam a inflamação crônica.
- Transição na terceira idade (65–80): Aumente a ingestão de proteínas para cerca de 1,0–1,2 g/kg/dia, conforme a tolerância e conforme for clinicamente adequado, prestando atenção à distribuição por refeição. Priorize porções de proteínas ricas em leucina, visando cerca de 2,5–3,0 g de leucina por refeição, para apoiar a sinalização da síntese proteica muscular (MPS) em condições de resistência anabólica [6,7].
- Idade avançadíssima (80–100+): Concentre-se na densidade nutricional e na distribuição viável entre as refeições; o apetite e as limitações relacionadas à mastigação e à deglutição são os fatores predominantes. Monitore os marcadores de estresse cardiovascular (por exemplo, NT-proBNP) e preserve a saúde vascular por meio de pressão arterial controle, atividade física sempre que possível e hábitos alimentares que promovam função endotelial.
Redução do risco de doenças cardiovasculares e demência
Manter a saúde vascular durante a meia-idade continua sendo essencial para reduzir o risco de insuficiência cardíaca na terceira idade e a vulnerabilidade cognitiva. A carga de CAC e rigidez arterial refletir exposição cumulativa e os riscos, bem como suas consequências a longo prazo, apontam cada vez mais para o envelhecimento cerebral à medida que a expectativa de vida aumenta [12–17]. A preservação de um ambiente mecânico fisiológico — elasticidade arterial e integridade microvascular — pode reduzir a disfunção endotelial e a amplificação da inflamação, contribuindo tanto para a longevidade cardíaca quanto para a cognitiva.
Em resumo, a transição para a longevidade não consiste em realizar “mais” das mesmas intervenções para sempre; trata-se de uma mudança estratégica, da supressão do crescimento e da priorização da manutenção na meia-idade para a preservação estrutural e o apoio anabólico na terceira idade. Ao compreender a detecção de nutrientes (notadamente os limiares de leucina e a dinâmica do mTOR) e a mecanobiologia do envelhecimento vascular, indivíduos e profissionais da saúde podem superar melhor os obstáculos biológicos que separam o envelhecimento geriátrico padrão das trajetórias resilientes dos centenários.
Referências
- Johnson SC, Rabinovitch PS, Kaeberlein M. mTOR is a key modulator of ageing and age-related disease. Nature. 2013;493(7432):338-345. doi:10.1038/nature11861
- Kennedy BK, Lamming DW. The Mechanistic Target of Rapamycin: The Grand ConducTOR of Metabolism and Aging. Cell Metab. 2016;23(6):990-1003. doi:10.1016/j.cmet.2016.05.009
- Papadopoli D, Boulay K, Kazak L, et al. mTOR as a central regulator of lifespan and aging. F1000Res. 2019;8:F1000 Faculty Rev-998. Published 2019 Jul 2. doi:10.12688/f1000research.17196.1
- Zarzycka W, Kobak KA, King CJ, Peelor FF 3rd, Miller BF, Chiao YA. Hyperactive mTORC1/4EBP1 signaling dysregulates proteostasis and accelerates cardiac aging. Geroscience. 2025;47(2):1823-1836. doi:10.1007/s11357-024-01368-w
- Breen L, Phillips SM. Skeletal muscle protein metabolism in the elderly: Interventions to counteract the ‘anabolic resistance’ of ageing. Nutr Metab (Lond). 2011;8:68. Published 2011 Oct 5. doi:10.1186/1743-7075-8-68
- Bauer J, Biolo G, Cederholm T, et al. Evidence-based recommendations for optimal dietary protein intake in older people: a position paper from the PROT-AGE Study Group. J Am Med Dir Assoc. 2013;14(8):542-559. doi:10.1016/j.jamda.2013.05.021
- Moore DR, Churchward-Venne TA, Witard O, et al. Protein ingestion to stimulate myofibrillar protein synthesis requires greater relative protein intakes in healthy older versus younger men. J Gerontol A Biol Sci Med Sci. 2015;70(1):57-62. doi:10.1093/gerona/glu103
- Wolfson RL, Chantranupong L, Saxton RA, et al. Sestrin2 is a leucine sensor for the mTORC1 pathway. Science. 2016;351(6268):43-48. doi:10.1126/science.aab2674
- Saxton RA, Knockenhauer KE, Wolfson RL, et al. Structural basis for leucine sensing by the Sestrin2-mTORC1 pathway. Science. 2016;351(6268):53-58. doi:10.1126/science.aad2087
- Lixandrão ME, Longobardi I, Leitão AE, et al. Daily Leucine Intake Is Positively Associated with Lower Limb Skeletal Muscle Mass and Strength in the Elderly. Nutrients. 2021;13(10):3536. Published 2021 Oct 9. doi:10.3390/nu13103536
- Szwiega S, Pencharz PB, Rafii M, et al. Dietary leucine requirement of older men and women is higher than current recommendations. Am J Clin Nutr. 2021;113(2):410-419. doi:10.1093/ajcn/nqaa323
- Bos D, Vernooij MW, Elias-Smale SE, et al. Atherosclerotic calcification relates to cognitive function and to brain changes on magnetic resonance imaging. Alzheimers Dement. 2012;8(5 Suppl):S104-S111. doi:10.1016/j.jalz.2012.01.008
- Fan Z, Yang C, Qu X, et al. Association of Oxidative Stress on Cognitive Function: A Bidirectional Mendelian Randomisation Study. Mol Neurobiol. 2024;61(12):10551-10560. doi:10.1007/s12035-024-04231-3
- Huang GS, Hansen SL, McClelland RL, et al. Relation of Progression of Coronary Artery Calcium to Dementia (from the Multi-Ethnic Study of Atherosclerosis). Am J Cardiol. 2022;171:69-74. doi:10.1016/j.amjcard.2022.01.061
- Iadecola C. The pathobiology of vascular dementia. Neuron. 2013;80(4):844-866. doi:10.1016/j.neuron.2013.10.008
- Li Q, Qian Z, Huang Y, et al. Mechanisms of endothelial senescence and vascular aging. Biogerontology. 2025;26(4):128. Published 2025 Jun 25. doi:10.1007/s10522-025-10279-y
- Lai A, Zhou Y, Chheang C, et al. Decoding vascular aging: Substrate stiffness and shear stress orchestrate endothelial inflammation and remodelling via mechanosensitive pathways. Biomaterials. 2026;329:123932. doi:10.1016/j.biomaterials.2025.123932
- Hirata T, Arai Y, Yuasa S, et al. Associations of cardiovascular biomarkers and plasma albumin with exceptional survival to the highest ages. Nat Commun. 2020;11(1):3820. Published 2020 Jul 30. doi:10.1038/s41467-020-17636-0
- Levine ME, Suarez JA, Brandhorst S, et al. Low protein intake is associated with a major reduction in IGF-1, cancer, and overall mortality in the 65 and younger but not older population. Cell Metab. 2014;19(3):407-417. doi:10.1016/j.cmet.2014.02.006
- Kurata H, Meguro S, Abe Y, et al. Dietary protein intake and all-cause mortality: results from The Kawasaki Aging and Wellbeing Project. BMC Geriatr. 2023;23(1):479. Published 2023 Aug 9. doi:10.1186/s12877-023-04173-w
- Budhathoki S, Sawada N, Iwasaki M, et al. Association of Animal and Plant Protein Intake With All-Cause and Cause-Specific Mortality in a Japanese Cohort. JAMA Intern Med. 2019;179(11):1509-1518. doi:10.1001/jamainternmed.2019.2806
- Brooks-Wilson AR. Genetics of healthy aging and longevity. Hum Genet. 2013;132(12):1323-1338. doi:10.1007/s00439-013-1342-z
- Shirakabe A, Ikeda Y, Sciarretta S, Zablocki DK, Sadoshima J. Aging and Autophagy in the Heart. Circ Res. 2016;118(10):1563-1576. doi:10.1161/CIRCRESAHA.116.307474
- Mannick JB, Del Giudice G, Lattanzi M, et al. mTOR inhibition improves immune function in the elderly. Sci Transl Med. 2014;6(268):268ra179. doi:10.1126/scitranslmed.3009892
- Marso SP, Daniels GH, Brown-Frandsen K, et al. Liraglutide and Cardiovascular Outcomes in Type 2 Diabetes. N Engl J Med. 2016;375(4):311-322. doi:10.1056/NEJMoa1603827
- Zinman B, Wanner C, Lachin JM, et al. Empagliflozin, Cardiovascular Outcomes, and Mortality in Type 2 Diabetes. N Engl J Med. 2015;373(22):2117-2128. doi:10.1056/NEJMoa1504720
- Singh A, D’Amico D, Andreux PA, et al. Urolithin A improves muscle strength, exercise performance, and biomarkers of mitochondrial health in a randomized trial in middle-aged adults. Cell Rep Med. 2022;3(5):100633. doi:10.1016/j.xcrm.2022.100633
- Zhang Z, Epstein A, Schaefer C, et al. Spatiotemporal profiling reveals the impact of caloric restriction in the aging mammalian brain. Cell Rep. 2025;44(9):116165. doi:10.1016/j.celrep.2025.116165
- Grummon AH, O’Sullivan K, Petimar J, et al. Nutrition Info and Other Front-of-Package Labels and Simulated Food and Beverage Purchases: A Randomized Clinical Trial. JAMA Netw Open. 2025;8(10):e2537389. Published 2025 Oct 1. doi:10.1001/jamanetworkopen.2025.37389
- Huang Y, O’Sullivan K, Block JP, Petimar J, Lee CJY, Grummon AH. Impact of the Food and Drug Administration’s Proposed Front-of-Package Label and Alternative Designs on Consumer Understanding: A Randomized Experiment. Am J Prev Med. Published online December 13, 2025. doi:10.1016/j.amepre.2025.108222

