分子レベルの血流と動脈疾患
ApoBリポタンパク質とRho GEFシグナル伝達が、アテローム性動脈硬化症のメカニズム解明にどのように寄与するか
動脈硬化症 多くの場合、あまりにも単純に説明され過ぎています。ほとんどの人は「高」と言われます コレステロール”」は動脈を詰まらせるが、その考え方は正しい方向を指し示しているものの、実際に疾患を引き起こすより深層の生物学的メカニズムを見落としている。コレステロールそのものがすべてではない。より正確な見方としては、アテローム性動脈硬化は、アテローム形成性 リポタンパク質 粒子が 動脈 血管壁に付着し、閉じ込められ、長期にわたる炎症の連鎖を引き起こす。それが起こるかどうかは、血液中に循環している粒子の数だけでなく、分子レベルでの動脈壁の挙動にも左右される [1-8].
この後半の部分は、多くの議論で認識されている以上に重要です。動脈壁は単なる受動的な管ではありません。それは能動的で、反応性の高い組織なのです。. 内皮細胞 どの粒子が血管壁を通過するかを制御する。免疫細胞は、それらの粒子が捕捉された後、どのように反応するかを決定する。. 平滑筋細胞 そして、Aが~であるかどうかを判断する手助けとなり、 歯垢 安定化するか、あるいは危険な状態になる。こうした局所的な調節の多くは、いわゆる Rhoグアニンヌクレオチド交換因子, 、または Rho GEF, 、順を追って Rho GTPases RhoA、Rac1、Cdc42など [4].
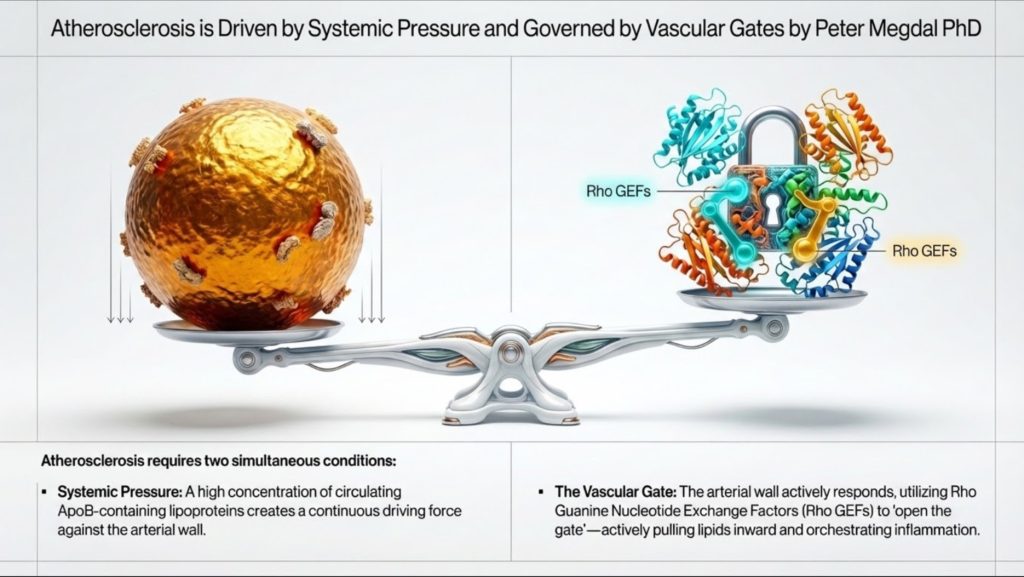
これは、〜について考えるための、より包括的な方法を提供します 心血管疾患. 全身の脂質負荷、とりわけその数は アポB含有リポ蛋白, 、システム内の圧力を設定します。しかし、動脈壁内の局所的なシグナル伝達が、それらの粒子が侵入し、留まり、プラークへと変化するかどうかを決定します。実用的な観点から言うと、, アポリポ蛋白B 道路上の車両数を計測する一方、Rho GEFシグナル伝達は、ゲートがどの程度開いているか、また局所的な応答がどの程度破壊的になるかを決定するのに役立つ [1-4].
この関係を理解することは、高次元の臨床脂質学と現代の血管生物学の架け橋となります。また、この病気を一般の人々に説明しやすくすることにもつながります。動脈硬化は単なる「血中の脂肪」ではありません。それは 微粒子トラフィック、動脈への侵入、滞留、免疫活性化、および組織リモデリング.
そもそもなぜリポタンパク質が存在するのか
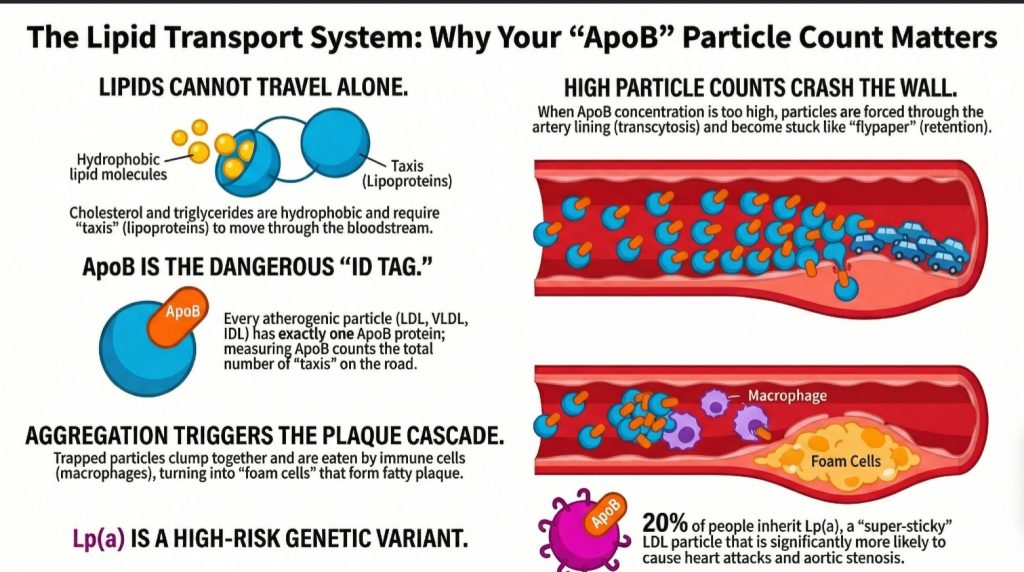
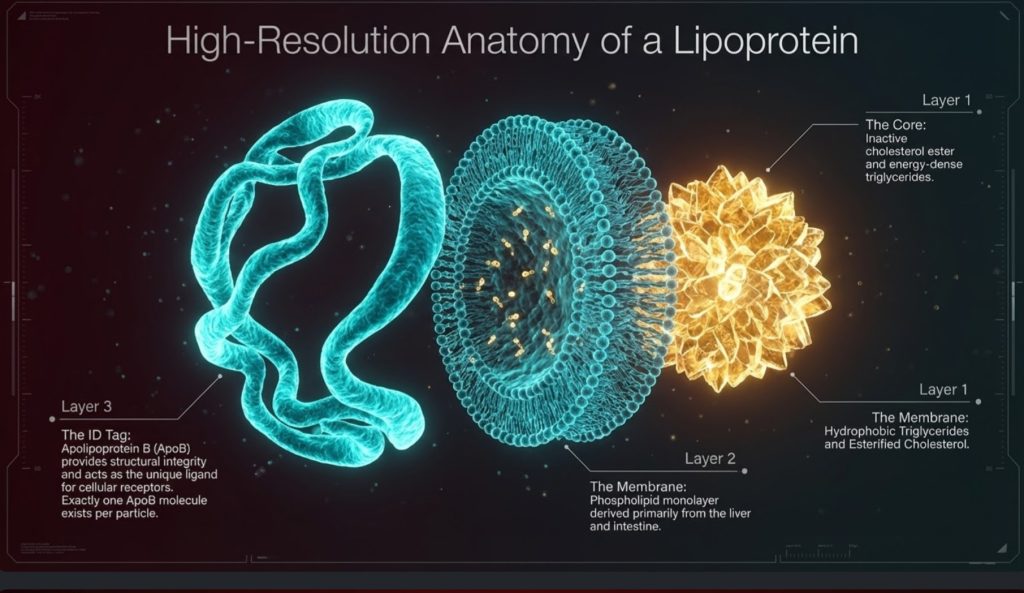
人体には、基本的な工学上の問題があります。それは、次のような脂質を輸送する必要があるという点です。 中性脂肪 やコレステロールも含まれていますが、血漿の大部分は水で構成されています。脂質は疎水性であり、水環境では溶けにくい性質を持っています。もし体内で未処理の脂肪がそのまま血流に放出されたら、水中の油のように分離して凝集してしまうでしょう [1,2].
その答えはリポタンパク質です。リポタンパク質は、疎水性の物質を水分の多い血漿中を運ぶために作られた輸送粒子です。リポタンパク質は、トリグリセリドやコレステロールエステルが蓄えられている疎水性のコアと、リン脂質や遊離コレステロール、そして タンパク質 呼ばれました アポリポプロテイン [1,2,5].
これは重要な点です。なぜなら、リポタンパク質はしばしば抽象的な検査値として扱われがちですが、実際には物質を運搬する物理的な「輸送手段」として理解するほうが適切だからです。リポタンパク質は、エネルギーや構造成分を体内で運搬します。トリグリセリドは、主要なエネルギー源です。コレステロールは、細胞膜の構造的支えとなり、ステロイドホルモンの合成に役立ち、 胆汁酸 生産。血流は高速道路であり、リポタンパク質はその車列である [1-3,5].
その観点から言えば、生体のリポタンパク質は、主にコレステロールを運搬するために進化したわけではない。エネルギーを運搬するために進化したのだ。 コレステロールは必要ですが、その輸送システムはエネルギー供給と深く結びついています。この区別は重要です。なぜなら、心血管疾患において最も誤解されがちな問題の一つを明らかにするのに役立つからです。すなわち、体は確かにコレステロールを必要としていますが、組織の生存と機能を維持するために、血漿中を大量のコレステロールが移動する必要はないのです [2,11-15].
コレステロールの恒常性:実際に必要な量はどれほど少ないのか
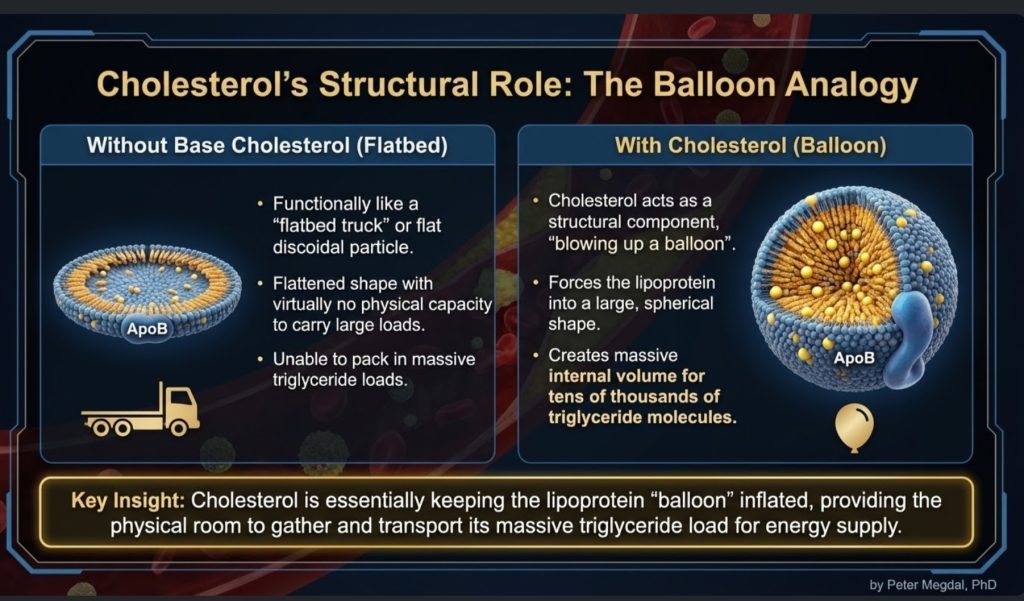
脂質生物学において重要でありながら、しばしば見過ごされがちな事実は、細胞レベルでは体が必要とするコレステロールの量はごくわずかであるということです。すべての細胞膜は、その構造と流動性を保つためにコレステロールを必要とし、特定の特殊な組織ではステロイドホルモンの合成にコレステロールが必要です。しかし、その必要量は驚くほど少なく、厳密に調節されており、その大部分は循環血液からの大量供給ではなく、局所的に満たされています。 LDL [2,11-17].
コレステロールの恒常性は、毒性を防ぎつつ十分な量を維持する、厳密に制御された細胞内シグナル伝達経路によって調節されている。一般的な通説とは異なり、実質的にすべての有核細胞は、自らコレステロールを合成する能力を備えている。細胞は単にリポタンパク質がコレステロールを運んでくるのを待っているわけではない。細胞には、必要な量を自ら作り出すための遺伝的機構が備わっている [11,12].
中枢神経系は、 SREBP-2–SCAP–INSIG 軸. 細胞内のコレステロール濃度が低下すると、, ステロール 調節因子結合タンパク質2(SREBP-2) に付き添われて SREBP切断活性化タンパク質(SCAP) 小胞体からゴルジ体へと運ばれる。そこで、SREBP-2はタンパク質分解による活性化を受ける。その後、活性化した転写因子は細胞核に入り、以下の関与する遺伝子の発現を亢進させる。 コレステロール合成 および取り込み、具体的には HMG-CoA還元酵素 (HMGCR) そして、その LDL受容体 (LDL受容体) [11,12].
これが メバロン酸経路, 、アセチルCoAを起点とし、HMG-CoAやメバロン酸を経てコレステロール合成に至る一連の過程。この機構は体全体に存在するため、細胞は膜の完全性を維持したり、基本的な生存を維持したりするために、血漿中の大量のコレステロールに依存する必要はない [11,12].
細胞内のコレステロールが増加すると、このシステムは自動的に停止します。コレステロールと オキシステロール 促進する INSIGを介した保持 小胞体内のSCAP–SREBP複合体の結合を阻害し、それによって転写活性化をさらに抑制する。同時に、, HMG-CoA還元酵素 は、ユビキチン・プロテアソーム経路を通じて分解されるようになっている。言い換えれば、コレステロール代謝は、過剰な蓄積を防ぐように設計された内在的なフィードバックループによって制御されている [11,12].
その過剰分が問題となるのは、遊離コレステロールが細胞内に蓄積すると、決して無害ではないからです。細胞内のコレステロールが多すぎると、細胞膜の安定性が損なわれたり、リソソーム内で結晶化したり、以下のような炎症シグナルを引き起こしたりする可能性があります。 NLRP3インフラマソーム, 、そしてアポトーシスや壊死を促進する [13,14]. これが、人体がこの物質を蓄えるようにはできていない理由の一つです。.
したがって、細胞は合成やフィードバック抑制だけでなく、能動的な排出にも依存している。これを通じて 肝X受容体(LXR) シグナル伝達において、オキシステロールは以下のようなトランスポーターを誘導し、 ABCA1 そして ABCG1, 、これは細胞から余分なコレステロールを運び出し、HDLを介して コレステロール引き抜き転送 [15].
これらの経路を総合すると、重要なことが明らかになります。すなわち、細胞にはコレステロールが必要ですが、それはごく少量かつ制御された範囲内でのみ必要であるということです。生物学上の主要な課題は、より多くのコレステロールを獲得することではありません。過剰なコレステロールが毒性を示さないよう、合成、利用、貯蔵、および排出のバランスを保つことにあるのです [11-15].
組織特異的なコレステロール非依存性
この原理は、特定の臓器を例に挙げるとさらに明確になります。多くの組織は、局所的にコレステロールを合成しており、循環しているLDLに大きく依存しているわけではありません。.
その 中枢神経系 が最も顕著な例である。アポBを含むリポタンパク質は血液脳関門をほとんど通過しないため、脳は必要なコレステロールの大部分を自ら生成しなければならない。. アストロサイト コレステロールを合成し、それを局所的に apoEを含むリポタンパク質, 、LXRによって制御される経路に関連するプロセス [16].
これと同様のことが、おおむね ステロイド生成組織, 、副腎や生殖腺などがこれに含まれる。これらの組織は、酢酸からコレステロールをデ・ノヴォ合成することができる。これらの組織は、LDLRなどの受容体を発現しており、 SR-B1, 、通常の状態では循環中のLDLへの依存度は限定的であるようであり、急性ACTH刺激などの特殊な状態や需要が高い状態において、その取り込みがより重要になる [2,17].
これは、重要な生理学的観点の裏付けとなる。体は、正常な内分泌機能や細胞機能を維持するために、血中LDL-C濃度が高い状態に依存しているわけではない。実際、脂質学におけるメカニズムや臨床に関する議論では、極めて低いLDL-C濃度、さらには約 10 mg/dL, 細胞内の合成機能が損なわれていない場合、必ずしもステロイド生成障害や膜機能不全を意味するわけではない [2,11,17].
つまり、コレステロールは不可欠ではあるものの、細胞の生存のために血中において実際に必要とされる量は、多くの人が想定しているよりもはるかに少ないのです。この事実は、血中アポB粒子濃度の上昇が生物学的な必要性ではなく、リスク要因であるという見解を裏付けるものです。.
ApoBフリート:粒子数が重要な理由
血液中に存在する数多くのリポタンパク質のうち、アテローム性動脈硬化症と最も関連が深いのは、アポBを含む粒子である。これらには、 カイロミクロン およびそれらの残存物である、超低密度リポタンパク質(VLDL)、中間密度リポタンパク質(IDL)、低密度リポタンパク質(LDL)、および リポ蛋白(a), 、またはLp(a) [1,2].
重要な臨床的知見は、それぞれが 動脈硬化惹起性粒子 正確に1つのApoB分子を含んでいます。つまり、ApoBは、血中を循環するアテローム性粒子の数を直接示す指標となります。対照的に、LDL-CはLDL粒子に含まれるコレステロールの質量のみを測定するものです。 LDL-C値が比較的正常範囲内であっても、粒子が小さく、コレステロールが乏しい場合には、粒子数が多くなる可能性がある。そのような状況では、臨床医がLDL-C値のみを参考にした場合、リスクが過小評価される恐れがある[1-3].
そのため、現在では多くの脂質専門家が、アポBを生物学的により意義のある指標と見なしています。これは、粒子が動脈壁に侵入する機会がどれほどあるかを反映しているからです。簡単に言えば、すべてのアポB粒子が動脈との衝突の可能性を1回表すとすれば、アポBは交通量を示していることになります [1-3].
この交通の例えは、専門家ではない人々にリスクを説明する際に特に役立ちます。重要なのは、各トラックにどれだけの貨物が積まれているかということだけではありません。重要なのは、道路上に何台のトラックが走っているか、それらがどれくらいの時間道路上に留まっているか、そして側壁に衝突する可能性がどれほどあるか、ということです。.
ここで、コレステロール最小限説が臨床的に重要になる。組織が必要とする少量のコレステロールを自ら合成できるのであれば、ApoB値が高いことは、有益な輸送予備力として捉えるのは適切ではない。むしろ、動脈壁に浸透する可能性のある粒子の負荷が増加しているものと捉える方が妥当である [2,11-17].
燃料の供給からLDLの持続性まで
この物語は、トリグリセリドを豊富に含む粒子から始まります。腸では、食事由来の脂肪を輸送するためにカイロミクロンが生成されます。肝臓では、体内で生成されたトリグリセリドを輸送するためにVLDLが生成されます。これらは大きな粒子であり、その主な役割はエネルギー源の供給です [1,2].
これらの粒子が循環するにつれて、それらは リポ蛋白リパーゼ (LPL)は、筋肉、心臓、脂肪組織が利用できるようトリグリセリドを放出する酵素である。トリグリセリドが除去されるにつれて、粒子は縮小する。表面の物質は剥がれ落ちる。しかし、ApoBの骨格は残る。時間の経過とともに、VLDLはIDLへと再構成され、その後LDLとなる [1,2,18].
したがって、LDLは本来、何らかの異常な、あるいは有害な粒子というわけではない。それは、正常なリポタンパク質代謝の末端産物である。LDLが特に重要視される理由は、その滞留性にある。LDLは、トリグリセリドを豊富に含むより大きな粒子よりもはるかに長い間、多くの場合2日から5日間も循環系にとどまるため、動脈壁を透過する統計的な確率が上昇する [1,2].
ここで、この疾患モデルの輪郭がはっきりし始める。. アテローム性動脈硬化形成 LDLが存在するというだけの理由では引き起こされません。それは、十分な量のアポB粒子が、循環系に長期間留まり、最終的に 内膜 そして、保持されることになる。.
同時に、これは重要な概念上の区別を裏付けるものでもあります。血液中にLDLが存在しても、それが組織がコレステロールを切実に必要としている証拠にはなりません。LDLの生物学的特性の多くは、トリグリセリドの輸送後のアポB粒子の再構成や残存を反映したものです。その意味で、LDLは単なる「コレステロール運搬車」というわけではありません。 LDLは、全身の脂質輸送の過程で生じた、長期間循環し続ける残渣でもあり、血管壁と相互作用する機会が増えているのです [1,2,18].
アテローム性動脈硬化は、単に存在することではなく、侵入することから始まる
現代の循環器医学における最も有益な知見の一つは、アテローム性動脈硬化症が単に血液中に粒子が存在するからといって発症するわけではないという認識である。それは、それらの粒子が内皮のバリアを通過し、 内皮下腔, 、あるいは内膜 [1,6-8].
つまり、動脈壁は非常に重要な役割を果たしているということです。その 内皮 厚さはわずか1層の細胞に過ぎませんが、生物学的活性を有しています。血流を感知し、炎症シグナルに反応し、バリア機能を調節し、どの物質が通過するかを制御します。 特定の動脈領域、特に分岐部や湾曲部は、局所的な血流パターンが乱れるため、プラークが形成されやすい。こうした乱流領域は、アテローム発生を促進する分子環境を作り出す[4,6-8].
従来、多くの人々は、LDLが単に損傷した内皮を透過して漏れ出ると考えていました。しかし、最新の知見では、LDLの侵入は、いわゆる トランスサイトーシス [6-8].
これは概念的に重要な点です。もし粒子の侵入が制御されているのであれば、アテローム性動脈硬化は単に血漿中に何が含まれているかという問題だけではありません。動脈壁がその血漿環境にどのように反応するかという点も関係してくるのです。全身的な曝露と局所的な感受性が相まって作用しているのです。.
DOCK4、SR-B1、および調節型LDLトランスサイトーシス
近年、最も興味深い発見の一つは、内皮細胞がSR-B1およびDOCK4が関与するメカニズムを通じて、LDLを細胞膜を横切って能動的に輸送できるということである [6-8].
SR-B1、すなわちスカベンジャー受容体B型1は、長年にわたり、以下の文脈において議論されてきた。 HDL 生物学的な役割だけでなく、特定の条件下ではLDLの取り込みやトランスサイトーシスにも関与しているようである。DOCK4はRho GEFであり、Rac1を活性化させる。これにより、この輸送プロセスに必要な細胞骨格の変化や小胞の移動が促進される [4,7,8].
これが重要なのは、アテローム発生の最も初期の段階に対する見方を一新するからです。LDLが血管壁に侵入するのは、単なる偶発的な浸透ではありません。それは、少なくとも部分的には特定のシグナル伝達システムによって制御されています。さらに注目すべきは、目に見える変化が現れる前に、アテローム性動脈硬化を起こしやすい領域でDOCK4の発現が増加することが観察されていることです。 病変 が存在しており、画像診断や病理検査で疾患が明らかになるずっと前から、動脈壁が病変を受け入れやすい状態になっている可能性があることを示唆している [4,8].
臨床的には、そこから興味深い可能性が浮かび上がります。ApoBは、侵入可能な粒子の数を示しています。しかし、DOCK4/SR-B1/Rac1システムは、それらがどれほど容易に侵入できるかを決定する一助となる可能性があります。言い換えれば、ApoBは「門」にかかる圧力を測定するものであり、DOCK4は「門」そのものの調節に関与しているのです。.
顧客維持:後戻りできないポイント
単に侵入するだけでは不十分である。ApoB粒子が内膜に到達すると、次の重要な過程は滞留である。これらの粒子は、プロテオグリカンと呼ばれるマトリックス分子に結合するが、この分子はまるで動脈の粘着テープのように作用する [1,3].
この段階は極めて重要である。なぜなら、滞留した粒子は、この時点で全く異なる微小環境にさらされるからである。 動脈壁の内部では、粒子には一連の変化が生じ得る。酸化が起こる可能性もあるが、酸化はあくまでその一部に過ぎない。リパーゼやその他の酵素が粒子表面を変化させ、スフィンゴミエリンやセラミドといった脂質を生成することで、粒子の付着性が高まり、凝集しやすくなる[4].
この凝集の段階は特に重要です。単一の孤立した残留LDL粒子は、修飾された粒子が固まってできた粘着性の凝集体とは、生物学的に同じものではありません。粒子が凝集すると、それらが引き起こす可能性がはるかに高くなります マクロファージ 取り込みと 泡沫細胞 形成 [1,4].
臨床医にとっても、知識のある読者にとっても、この区別は有用です。危険なのは、単に血中を循環しているLDLや、さらには内膜に沈着したLDLだけではありません。真の危険は、組織内に滞留し、修飾され、凝集したアポB含有リポタンパク質にあるのです。.
また、この時点で「コレステロール毒性」は状況に応じて異なる性質を示すようになります。コレステロールは、細胞内で微量かつ厳密に調節された状態であれば必要不可欠ですが、ApoB粒子が動脈壁に捕捉され、修飾されると、その脂質成分は極めて毒性の強い炎症環境の一部となってしまいます。 膜にとって不可欠なこのステロールも、誤った形態で誤った組織区画に運ばれると、病理的なものとなり得る [13,14].
白血球の動員:動脈が炎症を起こす仕組み
内膜に滞留・変化したリポタンパク質が蓄積すると、病変は脂質の問題から炎症性の問題へと移行する。この段階では、単球やその他の白血球の動員が中心的な役割を果たすようになる [4].
SGEFと呼ばれるRho GEF(Arhgef26としても知られる)が、ここで重要な役割を果たしているようだ。 SGEFは、内皮細胞がICAM-1依存性のドッキング構造を形成するのを助ける。これはアクチンを豊富に含む突起であり、血流下において白血球がより効果的に付着できるようにする。これらの構造は、免疫細胞がそうでなければ洗い流されてしまう可能性のある動脈の高せん断環境において、特に重要である[4].
もう1つの関連するシグナル伝達分子であるArhgef1は、炎症細胞の動員とアンジオテンシンIIシグナル伝達を結びつけています。これにより、 高血圧 および動脈性 炎症. 高 血圧 これは単なる血行動態的な負担にとどまらず、RhoAを介した経路を通じて白血球の動員を増強する可能性もある [4].
これにより、なぜ心血管系が……なのかが説明できる 危険因子 生物学的にはしばしば集まって現れる。高血圧、, インスリン抵抗性, 、そして高ApoBは単独で作用するわけではない。これらは動脈壁内で相互に作用し合い、そこで内皮細胞のシグナル伝達、免疫細胞の動員、およびリポタンパク質の滞留が互いに増幅し合う。.
発泡細胞とマクロファージの反応
マクロファージは、しばしば「体内の清掃隊」と表現されます。しかし、アテローム性動脈硬化症では、この清掃活動がかえって体に害を及ぼすことがあります。マクロファージは、変化して凝集したリポタンパク質を取り込み、コレステロールを大量に蓄積して、泡沫細胞へと変化します [1,4].
この段階は受動的なものではありません。細胞骨格のリモデリングや受容体シグナル伝達に大きく依存しています。 Rho GEFのVavファミリー、特にVav1、Vav2、およびVav3は、これらのプロセスの調節に関与している。Vavタンパク質は、CD36を介した酸化リポタンパク質の取り込みに影響を与え、リソソームシナプスの形成を促進する。これにより、マクロファージは大きなリポタンパク質凝集体と相互作用し、それを消化することが可能となる[4].
泡沫細胞が蓄積するにつれて、これらは炎症性メディエーターを放出し、最終的には死滅し、その結果、 壊死核 プラークの。これにより、微小病変が臨床的に意義のあるプラークへと変化する。時間の経過とともに、その病変は石灰化したり、安定した状態を維持したり、あるいは破裂しやすくなったりする [1,3].
これもまた、分子レベルの視点が価値をもたらす点の一つです。この疾患は、単に「コレステロールが多すぎる」というだけのものではありません。特定の組織環境の中で、免疫細胞が異常な脂質物質をどのように処理するかという点が重要なのです。.
コレステロール恒常性に関する追加の文献は、この理解をさらに深めてくれる。泡沫細胞の形成は、単に受動的な脂質貯蔵の問題ではない。それは、正常なコレステロール処理機能の破綻である。マクロファージによる取り込みが、細胞内の制御や排出システムを上回ると、遊離コレステロールが蓄積し、炎症経路が活性化され、その結果として細胞死が引き起こされる。 その意味で、プラークの進行は、動脈壁内部におけるコレステロール恒常性の局所的な破綻として理解することができる[13-15].
平滑筋細胞とプラークの安定性
プラークが進行するにつれて、血管平滑筋細胞(VSMC)が主要な役割を果たすようになる。これらの細胞は通常、血管の緊張を維持する役割を担っているが、アテローム性動脈硬化症ではその表現型が変化することがある。これらは中膜から内膜へ移動し、増殖して、プラークの形成に寄与する可能性がある [4].
この挙動は、Rho GEFシグナル伝達によって影響を受けます。カリリンやVav3などの分子は、Rac1およびRhoAに関連する経路を通じて、細胞の遊走や増殖を促進します。このリモデリングの一部には保護的な役割がある可能性があります。なぜなら、VSMCは 線維性被膜 プラークの上で。しかし、過度または無秩序なリモデリングも、管腔の狭窄やプラークの不安定化の一因となり得る [4].
対照的に、β-PIXとも呼ばれるArhgef7は、バリア機能の維持や、細胞の極性を守るシグナル伝達経路を支えているようである。これは、プラークの生物学的メカニズムが、単に疾患を促進するシグナルによってのみ駆動されているわけではないことを示唆している。それは、動脈の構造を維持しようとする対抗調節システムによっても形作られているのである [4].
したがって、プラークの安定性は、損傷、修復、炎症、およびリモデリングの間のバランスにかかっている。そのバランスは、当初から病変に影響を与えてきたのと同じ分子スイッチのファミリーによって、部分的に制御されている。.
Lp(a):遺伝的リスクの増幅因子
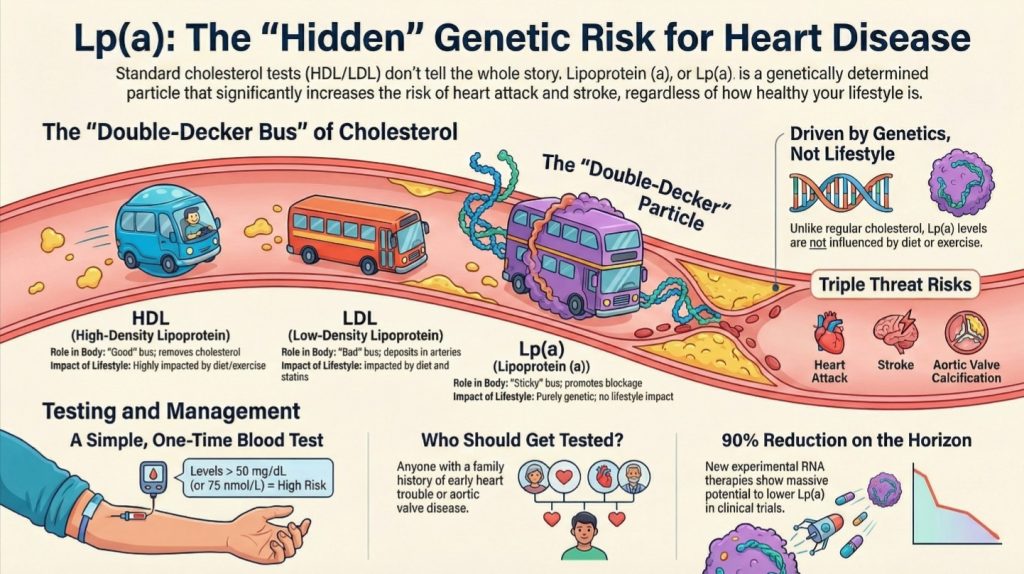
脂質に起因する心血管疾患に関する現代の議論において、リポタンパク質(a)、すなわちLp(a)を抜きにしては語れません。構造的には、Lp(a)はアポリポタンパク質(a)が結合したLDLに類似した粒子です。臨床的には、これは最も重要な遺伝性心血管疾患の危険因子のひとつです [1-3,5,9].
およそ5人に1人がLp(a)値の上昇が見られ、その数値は主に遺伝的に決定されます。通常のLDLとは異なり、Lp(a)は食事や運動によって著しく改善されることはなく、従来の脂質治療のほとんどでもその影響はわずかに留まります [1-3,5,9].
Lp(a)は、アテローム形成を促進するだけでなく、炎症を促進し、血栓形成を促進する性質も持つため、特に危険であると考えられています。その値の上昇は、早期の 心筋梗塞, 脳卒中, 、および 大動脈弁 狭窄. 。このため、現在では多くの専門家が、すべての患者に対し、生涯に少なくとも一度はLp(a)を測定するよう推奨している [1-3,5,9].
これは公衆衛生上、極めて重要なメッセージです。たとえ多くの点で健康的な生活を送っていても、Lp(a)値の上昇によって遺伝的なリスクをかなり抱えている可能性があります。そのリスクを早期に特定することが重要です。.
なぜApoBはLDL-Cよりも優れた臨床的指標なのか
日常診療において、診断上の主な教訓は単純明快です。ApoBは、LDL-Cよりも疾患の生物学的メカニズムに密接に関連しているからです [1-3].
LDL-Cは、LDL粒子中にどれだけのコレステロールが存在するかを推定する指標である。一方、ApoBは、血中を循環している動脈硬化性粒子の数を推定する指標である。各粒子は動脈壁に侵入する可能性のある存在であるため、ApoBの方が動脈損傷のリスクをより的確に把握できる。.
非HDLコレステロール は、すべてのApoB含有粒子によって運ばれるコレステロールを含んでいるため、LDL-Cよりも優れた代替指標となる場合が多い。しかし、ApoBは依然として、粒子に基づくより明確な指標である。冠動脈カルシウムスコアリングは、高齢期に発症した既往疾患の検出に役立ち、Lp(a)は遺伝性リスクの特定に役立つ。 しかし、血中を循環するアテローム形成性粒子による病因的負荷を理解する上では、アポBが中心的な役割を果たす [1-3].
だからといって、LDL-Cが役に立たないというわけではありません。LDL-Cは依然として臨床的に有用であり、広く利用されています。しかし、検査と作用機序を一致させることを目的とするならば、ApoBの方がより有力なマーカーとなります。.
また、これは前述の生理学的メカニズムともより整合性が高い。 もし組織が生存するために大量の循環コレステロールを必要とせず、コレステロールの需要が主に局所的な合成と厳密に制御された細胞内経路によって満たされているのであれば、臨床的に重要な問いは「血漿中にどれだけのコレステロールが存在するか」ではなく、「動脈壁と繰り返し相互作用している動脈硬化性粒子がどれほどあるか」ということになる。 この問いに対しては、LDL-CよりもApoBの方がより的確に答えを提示してくれる [2,11-17].
治療上の意義:現在と未来
現在行われている脂質低下療法は、依然として極めて重要である。. スタチン, エゼチミブ, 、および PCSK9阻害薬 アテローム発生を抑制する 粒子負荷 かつ、確かな成果データがある。. PCSK9 阻害剤もLp(a)をわずかに低下させ、Lp(a)を標的とする新しいRNAベースの治療法は、臨床試験において劇的な低下を示している [1,3,9].
ライフスタイルは依然として基本です。. 減量, 改善された インスリン感受性, 、肝臓でのVLDL産生の低下、および炎症負荷の軽減は、いずれも全身的なリスクの低減に寄与する [1]. しかし、最新の生物学的研究によれば、心血管疾患の予防の未来は、血漿中の粒子濃度を低下させることにとどまらない可能性がある。動脈壁そのものを直接標的とするアプローチも含まれるかもしれない。.
そこで、Rho GEFの生物学的機能は特に興味深いものとなります。もしDOCK4やSGEFといった特定のGEFが、LDLの細胞内取り込みや白血球の動員における重要な調節因子であるならば、それらの経路を直接阻害することで、プラーク形成をより選択的に阻害できる可能性があります [4]. 臨床医は、単に血管内の血流を減らすだけでなく、いつの日か、血管壁内部の炎症反応を抑制し、その進行を食い止めることもできるようになるかもしれない。.
これはまだ発展途上の分野であり、日常的な臨床戦略というわけではありません。しかし、概念的には、循環しているリスク因子が動脈疾患へと進行する特定の局所的な経路を標的とする、プレシジョン・メディシンへの道筋を示唆しています。.
コレステロール恒常性の統合的枠組みは、アポB負荷を積極的に低減させることが生物学的に妥当である理由を説明するのにも役立ちます。もし、内因性合成と厳密に制御された組織内での処理によって細胞内の需要が依然として満たされるのであれば、循環するアテロゲン性粒子を減少させても、必ずしも細胞への供給不足につながるわけではありません。それは単に、動脈への不必要な曝露を減らすだけである可能性があります [2,11-17].
アテローム性動脈硬化症をよりわかりやすく説明する方法
一般の人々にとっては、この病気は直感的かつ正確に要約することができる。.
ApoBを含むリポタンパク質は、血液中を流れながら燃料や構造物質を運ぶ輸送トラックのようなものです。道路上のトラックが多すぎると、そのうちいくつかは動脈壁に侵入してしまいます。そこに閉じ込められると、それらは損傷を受け、粘着性を持つようになります。免疫系は清掃細胞を送り込みますが、それらの細胞は処理能力を超え、プラークを形成してしまいます。 一方、動脈壁自体もただ受動的に見ているわけではありません。そこには、粒子の侵入、免疫細胞の結合、コレステロールの処理、そして組織のリモデリングを調節する分子レベルの「門番」が存在しています[1-8,11-15].
この枠組みは、一般向けの啓発には十分に簡潔でありながら、臨床医にとっても有用なほど詳細に練られています。コレステロールだけが動脈を「詰まらせる」という誤解を招くような過度な単純化を避けつつ、コレステロールを含むApoB粒子が疾患の発生に因果的に不可欠であるという核心的な事実を保っています [1-3].
また、ここには重要なニュアンスも含まれています。すなわち、人体にはコレステロールが必要ですが、それはごく微量で、厳密に制御された量に限られるということです。真の危険は、コレステロールそのものの存在にあるのではありません。危険なのは、アポB含有粒子が慢性的に循環し、動脈に入り込み、組織内に滞留することで、その内容物が炎症やプラークへと変化してしまうことです。.
結論
アテローム性動脈硬化症は、2つのシステムの交点として理解するのが最も適切である。1つ目は全身的なリポタンパク質生物学であり、ここではアポBを含む粒子が、トリグリセリドやコレステロールの必須の運搬体として循環している。2つ目は局所的な動脈生物学であり、ここでは内皮細胞、白血球、マクロファージ、平滑筋細胞が、それらの粒子がプラークになるかどうかを決定する。.
ApoBは、血中を循環するアテロゲニック粒子の数を把握し、ひいては動脈損傷が生じる統計的な可能性を反映しています。Rho GEF–Rho GTPaseシグナル伝達経路は、その損傷がなぜ、どのようにして血管壁内で生じるのかを説明する一助となります。これらのシステムを総合することで、従来のLDL-Cのみを基盤とした枠組みよりも、より詳細な疾患モデルが構築されます。.
一方で、コレステロール自体は、厳密に制御された細胞内代謝機構によって調節されている。SREBP-2–SCAP–INSIG システム、メバロン酸経路、LXR を介した排出シグナル伝達、および組織特異的な合成を通じて、体は必要な少量のコレステロールを維持しつつ、過剰なコレステロールから身を守っている [11-17]. つまり、コレステロールに対する生理的な必要性は確かに存在するが、その必要量はごくわずかであり、局所的に調節されており、過剰な循環アポB粒子によってもたらされる病理学的負担とは根本的に異なる。.
臨床医にとっては、このことはアポB、Lp(a)、そして早期予防をより重視すべきであることを裏付けるものです。一般の人々にとっては、心血管疾患が単に脂肪の摂取や「高コレステロール」の問題ではないことが明らかになります。 重要なのは、どれだけの動脈硬化性粒子が循環しているか、それらがどれほど長く留まるか、動脈壁がそれらにどのように反応するか、そして局所的なコレステロール処理の機能不全によって、滞留した粒子がどのように炎症やプラークへと変化するかという点にある。.
したがって、脂質学の将来は、血流中の危険な粒子の数を減らすことと、そもそもそれらの粒子が動脈壁に入り込んで損傷を与える原因となる分子メカニズムに働きかけること、という二つの側面を持つことになるかもしれない [1-10]. こうしたより広い枠組みにおいて、最も重要な概念上の修正の一つは、次の点である。すなわち、人体が生存するために、血液中に大量の余剰コレステロールを循環させる必要はない。必要なのは、細胞レベルで厳密に調節されたごく微量のコレステロールだけである。動脈硬化は、その必要量を超えてコレステロールが運ばれ、その結果、動脈壁がダメージを受けることから始まる。.
参考文献
- Perone F, Bernardi M, Spadafora L, et al. Non-Traditional Cardiovascular Risk Factors: Tailored Assessment and Clinical Implications. J Cardiovasc Dev Dis. 2025;12(5):171. Published 2025 Apr 28. doi:10.3390/jcdd12050171
- Attia P, Dayspring T. #20 – Tom Dayspring, M.D., FACP, FNLA – Part I of V: an introduction to lipidology.
- Hill S. What Causes Cardiovascular Disease? Lipid Series Part 1. The Proof with Simon Hill.
- Li M, Jiao Q, Xin W, et al. The Emerging Role of Rho Guanine Nucleotide Exchange Factors in Cardiovascular Disorders: Insights Into Atherosclerosis: A Mini Review. Front Cardiovasc Med. 2022;8:782098. Published 2022 Jan 3. doi:10.3389/fcvm.2021.782098
- Heart Matters. Cholesterol Explained: HDL, LDL, and the Hidden Risk of Lp(a).
- Hackethal V. Research Suggests LDL Is Actively Transported Into Arterial Walls. NeurologyLive.
- Getz GS, Reardon CA. The “HDL receptor” scavenger receptor class B type 1 finesses the uptake of low-density lipoproteins into the subendothelial space of arteries. Biotarget.
- Huang L, Chambliss KL, Gao X, et al. SR-B1 drives endothelial cell LDL transcytosis via DOCK4 to promote atherosclerosis. Nature. 2019;569(7757):565-569. doi:10.1038/s41586-019-1140-4
- Nutrition Made Simple. Everything you need to know about Lp(a) | ft. Dr. Tom Dayspring.
- Heart Fit Clinic. Webinar on Cholesterol from a Lipidologist. Dr. Tom Dayspring.
- Brown MS, Goldstein JL. The SREBP pathway: regulation of cholesterol metabolism by proteolysis of a membrane-bound transcription factor. Cell. 1997;89(3):331-340. doi:10.1016/s0092-8674(00)80213-5
- Brown MS, Goldstein JL. Sterol regulatory element binding proteins (SREBPs): controllers of lipid synthesis and cellular uptake. Nutr Rev. 1998;56(2 Pt 2):S1-S75. doi:10.1111/j.1753-4887.1998.tb01680.x
- Muneer PMA, Alikunju S, Mishra V, et al. Activation of NLRP3 inflammasome by cholesterol crystals in alcohol consumption induces atherosclerotic lesions. Brain Behav Immun. 2017;62:291-305. doi:10.1016/j.bbi.2017.02.014
- Feng B, Yao PM, Li Y, et al. The endoplasmic reticulum is the site of cholesterol-induced cytotoxicity in macrophages. Nat Cell Biol. 2003;5(9):781-792. doi:10.1038/ncb1035
- Murphy AJ, Akhtari M, Tolani S, et al. ApoE regulates hematopoietic stem cell proliferation, monocytosis, and monocyte accumulation in atherosclerotic lesions in mice. J Clin Invest. 2011;121(10):4138-4149. doi:10.1172/JCI57559
- Dietschy JM, Turley SD. Cholesterol metabolism in the brain. Curr Opin Lipidol. 2001;12(2):105-112. doi:10.1097/00041433-200104000-00003
- Miller WL. MECHANISMS IN ENDOCRINOLOGY: Rare defects in adrenal steroidogenesis. Eur J Endocrinol. 2018;179(3):R125-R141. doi:10.1530/EJE-18-0279
- Ginsberg HN. Lipoprotein metabolism and its relationship to atherosclerosis. Med Clin North Am. 1994;78(1):1-20. doi:10.1016/s0025-7125(16)30174-2

