Estructura, transporte y requerimiento biológico del colesterol
Un análisis mecanístico de la partición en compartimentos, lipoproteína requisitos estructurales y el mínimo estimado por el modelo para el sistema de transporte circulatorio
Resumen
Antecedentes. De cuerpo entero colesterol la distribución, los requerimientos estructurales de las lipoproteínas y la dependencia tisular del colesterol circulante se confunden con frecuencia en fuentes clínicas y educativas, lo que lleva a exageraciones sobre cuánto colesterol circulante “requiere” el cuerpo.”
Métodos. Este análisis (i) define un vocabulario estricto basado en compartimentos que distingue entre el colesterol corporal total, el colesterol tisular, el colesterol intracelular y el colesterol circulante (plasmático/sérico), y (ii) construye una estimación transparente mediante un modelo de transporte para la concentración mínima de colesterol circulante requerida para mantener la integridad estructural de las lipoproteínas y satisfacer la demanda tisular exógena, con supuestos declarados, parámetros con conversión de unidades explícita y límites de sensibilidad. Las ecuaciones y los rangos de parámetros se indican en el apéndice de Métodos (Sección 11).
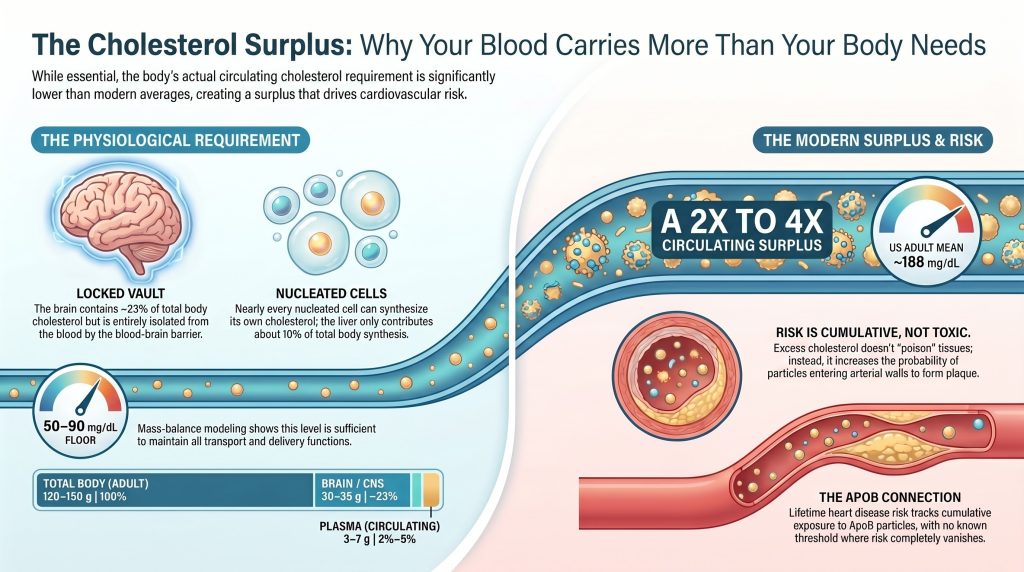
Hallazgos. (1) El colesterol corporal total en un adulto es de aproximadamente 120–150 g; el conjunto plasmático de intercambio rápido es de 3–7 g (dependiendo del volumen plasmático y medido colesterol total (concentración) representa entre 2 y 51 TP9T del contenido corporal. (2) Solo el cerebro contiene aproximadamente entre 30 y 35 g, aislados del plasma mediante el barrera hematoencefálica. (3) El colesterol plasmático es de ~70% esterificado / ~30% libre. (4) Un modelo representativo de 22 nm LDL Una partícula (reconstrucción de Hevonoja) contiene aproximadamente 2,200 moléculas de colesterol, de las cuales aproximadamente 18% son colesterol libre de superficie; el LDL es heterogéneo y estas cifras no deben aplicarse sin crítica a todas las partículas de LDL. (5) Bajo los supuestos del modelo de transporte mencionado y utilizando recuentos de partículas consistentes con la RMN (LDL-P en nmol/L → ~10¹⁶–10¹⁷ partículas/dL; HDL-P en µmol/L → ~10¹⁸ partículas/dL), el colesterol total plasmático mínimo estimado por el modelo que estabiliza simultáneamente el sistema de lipoproteínas y satisface ~50 mg/día de demanda exógena neta en un adulto no embarazada es de aproximadamente 50–90 mg/dL (sensibilidad 40–110 mg/dL). Se trata de un escenario calculado, no de un mínimo fisiológico demostrado.
Conclusiones. El promedio de colesterol total plasmático en adultos estadounidenses modernos de ~188 mg/dL (NHANES 2017–2018) supera el límite mínimo de transporte estimado por el modelo en un factor que depende de los supuestos, pero que es consistentemente > 2. El excedente es tolerado metabólicamente, está vinculado causalmente al riesgo de ASCVD sobre la base de cada partícula de apoB y no es necesario para ninguna función fisiológica conocida. Las guías clínicas que recomiendan la reducción de LDL-C para la prevención de ASCVD operan en un registro epistémico diferente (reducción de eventos en ensayos clínicos) que este artículo (modelación de balance de masa); los dos son complementarios, no están en conflicto.
1. Vocabulario basado en compartimentos
Cada afirmación sobre el colesterol en este artículo especifica (i) el compartimento, (ii) la forma química y (iii) las unidades. Confundir las concentraciones del panel lipídico clínico con la masa de colesterol en los tejidos o en todo el cuerpo es la fuente de la mayoría de los errores cuantitativos en la literatura divulgativa y educativa. A lo largo del texto se utiliza la siguiente terminología. [1]
| Término | Significado | Unidades típicas |
| Colesterol total en plasma / colesterol total en suero | Concentración de colesterol total en la fracción sanguínea correspondiente (calculada o medida directamente en un perfil lipídico de rutina) | mg/dL o mmol/L |
| LDL-C / HDL-C / VLDL-C en plasma | Colesterol transportado por la clase de lipoproteína mencionada en el plasma | mg/dL o mmol/L |
| LDL-P / HDL-P | Concentración numérica de LDL o HDL partículas (típicamente medidas por espectroscopía de RMN) | LDL-P en nmol/L; HDL-P en µmol/L (tener en cuenta los diferentes órdenes de magnitud) |
| Colesterol libre plasmático / plasma éster de colesterilo | Distribución química del colesterol plasmático entre las formas no esterificadas y esterificadas (por lo general, ~30% / ~70%) | mg/dL, mmol/L o % de colesterol total (CT) en plasma |
| Masa de colesterol plasmático | Plasma CT × volumen plasmático; la masa absoluta de colesterol circulando en el plasma en un momento dado | g (= mg/dL × dL_plasma / 1000) |
| Masa de colesterol circulante | Masa de colesterol plasmático + colesterol transportado en membranas eritrocitarias (se intercambia rápidamente con el plasma) | g |
| Concentración de colesterol en los tejidos | Colesterol por unidad de masa de tejido (p. ej., cerebro a ~23 mg/g de peso húmedo) | mg/g de peso húmedo o seco |
| Colesterol celular / subcelular | Colesterol en un tipo celular específico, en la membrana de un orgánulo o en un fondo común | mol% de lípidos de membrana; µg/mg proteína |
| Colesterol corporal total | Masa total de colesterol corporal en todos los tejidos y líquidos | g |
| Piso de transporte estimado por el modelo | Concentración plasmática mínima de colesterol calculada que satisface las funciones estructurales y de entrega del sistema de lipoproteínas circulantes bajo los supuestos establecidos | mg/dL |
| ■ Las unidades de partículas de lipoproteínas son convenciones de RMN
El análisis de subfracciones de lipoproteínas por RMN (LipoProfile y similares) informa la LDL-P en nanomoles por litro (nmol/L), lo que refleja el rango típico de ~10¹⁵–10¹⁸ partículas/L en adultos. La HDL-P se informa convencionalmente en micromoles por litro (µmol/L) debido a que las HDL son más abundantes por partícula. Este artículo utiliza las convenciones de la RMN en todo momento y realiza la conversión a partículas por dL mediante aritmética explícita. |
| ■ Plasma vs. suero
Los perfiles lipídicos clínicos de rutina se realizan tanto en suero como en plasma; la diferencia en los valores de colesterol medidos es mínima (por lo general, < 3%). A menos que se especifique lo contrario, todas las concentraciones de colesterol circulante se refieren indistintamente al plasma o al suero. |
2. Distribución sistémica y balance de masa
2.1 Colesterol corporal total
El colesterol corporal total en un adulto es de aproximadamente 120–150 g, con escala de peso corporal. El rango refleja la variabilidad entre sujetos y entre métodos en los estudios de distribución en tejidos. [2][3Las citas de libros de texto antiguos de ~35 g representan solo el grupo A de intercambio rápido de Goodman (hígado + plasma + eritrocitos + parte de las vísceras) en el modelo de trazadores cinéticos, no el contenido de todo el cuerpo. El análisis tisular cuantitativo directo (Sabine, 1977, recapitulado en revisiones modernas) sitúa el colesterol corporal total humano adulto en la cifra más alta, con el cerebro, el tejido conjuntivo, incluido el adiposo, y el músculo esquelético contribuyendo cada uno con aproximadamente 25–35 g.2][3]
El modelo de trazador de tres compartimentos de Goodman define un compartimento A de intercambio rápido (hígado, plasma, eritrocitos, esplácnico) de 15 a 30 g, un compartimento B de intercambio lento (músculo esquelético, tejido adiposo, tejido conectivo denso) de 35 a 60 g, y un compartimento del SNC cinéticamente aislado de ~30 a 35 g.4][5El compartimento plasmático por sí solo contiene 3–7 g de colesterol, dependiendo del volumen plasmático y de la concentración plasmática total de colesterol medida.
2.2 Distribución en tejidos
Distribución bajo el supuesto de ~140 g de colesterol corporal total (punto medio representativo). Todas las entradas son la masa de colesterol en los tejidos. [2][3]
| Compartimiento | Colesterol (g) | % del total del cuerpo | Forma química dominante |
| Cerebro / SNC (mielina + membranas neuronales) | 30–35 | ~22–25% | >99,51 TP9T libre (no esterificado) |
| Músculo esquelético | ~25–30 | ~18–22% | Libre (membrana plasmática) |
| Tejido conectivo, tejido adiposo, líquidos corporales | ~25–32 | ~18–23% | Mixto; la CE se acumula con la edad en el tendón/duramadre |
| Piel | ~12–18 | ~9–13% | Gratis |
| Otras vísceras (pulmón, riñón, intestino, etc.) | ~12–18 | ~9–13% | Gratis de forma predominante |
| Hígado | ~4–6 | ~3–4% | FC + CE mixto |
| Plasma / reserva circulante | 3–7 | ~2–5% | ~70% CE / ~30% FC |
| Corazón, bazo, suprarrenales (por órgano) | <1 cada uno | <1% | Alta densidad por gramo (suprarrenales ≥ 25 mg/g) |
El SNC contiene entre ~22 y 251 TP9T de colesterol corporal, con la mayor concentración tisular (~23 mg/g de peso húmedo). [5][6] La barrera hematoencefálica es impermeable al colesterol de las lipoproteínas; todo el pool del SNC se sintetiza localmente. El colesterol neuronal cortical tiene una renovación con una vida media de 6 meses a 5 años; el colesterol de la mielina se renueva en el orden de décadas. El eflujo neto desde el SNC ocurre principalmente como 24S-hidroxicolesterol, que cruza la barrera hematoencefálica y se aclara en el plasma.5][6][7]
2.3 Masa de colesterol plasmático a diferentes concentraciones de colesterol total en plasma
La masa de colesterol plasmático es el producto del volumen plasmático y la concentración de colesterol total en plasma. A un volumen plasmático representativo de 3.0 L:
| Colesterol total en plasma (mg/dL) | Masa de colesterol plasmático (g, 3.0 L de plasma) | Contexto clínico |
| 50 | 1.5 | Por debajo del rango neonatal típico; mutaciones raras con pérdida de función |
| 80 | 2.4 | Reportado PCSK9 rango de homocigotos LOF |
| 100 | 3.0 | inhibidor de PCSK9 objetivos durante el tratamiento |
| 150 | 4.5 | Objetivo terapéutico en la reducción intensiva de lípidos |
| 188 | 5.6 | Promedio de adultos en EE. UU. (NHANES 2017-2018) [8] |
| 220 | 6.6 | Límite alto |
| 280 | 8.4 | Rango de HF heterocigota |
| ■ El volumen plasmático varía según el tamaño corporal
El volumen plasmático en adultos es de aproximadamente 40–45 mL/kg de peso corporal (~2.8–3.2 L para un adulto de 70 kg, ~3.5–4.0 L para un adulto de 90 kg). Todos los cálculos de masa plasmática en este artículo utilizan un valor representativo de 3.0 L a menos que se indique lo contrario. |
2.4 Distribución subcelular y el sensor de colesterol del RE
En la mayoría de las células no neuronales, la membrana plasmática contiene entre 60 y 90% de colesterol celular por cada 30 a 40 mol% de lípidos de la membrana plasmática, mientras que el retículo endoplásmico solo contiene entre 3 y 6 mol%. [9][10] El gradiente es regulado por SREBP2, junto con SCAP e Insig: cuando el colesterol en el retículo endoplásmico (ER) supera los ~5 mol%, SCAP retiene a SREBP2 en el ER y se suprime la síntesis. [11] Das et al. (eLife 2014) clasificaron el colesterol de la membrana plasmática en tres reservas funcionales utilizando una sonda de Perfringolisina O (PFO*): un grupo secuestrado en la esfingomielina (~15 mol% de lípidos de la membrana plasmática), un grupo “esencial” necesario para la viabilidad celular y un grupo “accesible” que fluye hacia el retículo endoplásmico para regular la síntesis. [11][12El grupo accesible (y no el colesterol PM total) es la señal reguladora.
| ▲ El umbral de unión de PFO* se aplica a las bicapas de la membrana plasmática, no a las monocapas de lipoproteínas.
El umbral de accesibilidad de 35 mol% PFO* en las membranas plasmáticas refleja la arquitectura de la bicapa y la formación de complejos entre la esfingomielina y el colesterol, características específicas de la membrana plasmática. [11][12Las superficies de LDL y HDL son monocapas de fosfolípidos estabilizadas por apolipoproteínas; tienen diferente composición lipídica, asimetría de las monocapas y restricciones de empaquetamiento. El umbral no debe aplicarse directamente a las superficies de las lipoproteínas sin un análisis adicional. |
Rotación diaria de 2.5
desnovo de cuerpo entero síntesis de colesterol en adultos es aproximadamente 10 mg/kg/día (~700 mg/día en un adulto de 70 kg, ~880 mg/día en un adulto de 88 kg). El hígado contribuye solo con ~10% a la síntesis total en los seres humanos; la mayor parte se produce fuera del hígado. [13Los estudios con trazadores de tres compartimentos del recambio de colesterol plasmático arrojan una tasa de producción total (síntesis más absorción dietética) de ~1,0–1,2 g/día en sujetos normolipidémicos.4] La ingesta alimentaria (aprox. 300–500 mg/día en una dieta occidental, aprox. 30–50% absorbidos) se compensa mediante la regulación a la baja de la síntesis endógena. [14]
3. Arquitectura de las lipoproteínas y partición del colesterol
3.1 Composición representativa de partículas de LDL de 22 nm
La reconstrucción a continuación es de Hevonoja et al. (BBA 2000) para una partícula de LDL representativa de 22 nm de diámetro.15][16][17]
| Componente | Moléculas / partícula | Fracción másica (%) | Ubicación |
| Ésteres de colesterilo (EC) | ~1,600 | 40–45% | Núcleo |
| Colesterol no esterificado (CL) | ~600 | 8–10% | ~400 superficie, ~200 núcleo |
| Triglicéridos (TG) | ~170 | 5–9% | Núcleo |
| Fosfatidilcolina | ~450 | } 19–21% combinado | Monocapa superficial |
| Esfingomielina | ~185 | (fósfolipidos totales) | Monocapa superficial |
| ApoB-100 (copia única) | 1 | 20–25% | Envuelve la superficie |
El colesterol total por partícula representativa de LDL es de ~2,200 moléculas; el FC superficial representa ~18% de colesterol LDL. Algunas referencias generales citan ~1500 de colesterol por partícula LDL promedio, lo que refleja diferentes esquemas de promedio en toda la distribución del tamaño de las LDL; ambos números son descripciones de tendencia central de una población intrínsecamente heterogénea.16]
| ▲ El LDL es heterogéneo.
Las LDL in vivo abarcan entre ~22 y 27.5 nm con una variación composicional sustancial; LDL pequeño y denso transporta menos colesterol por partícula y está enriquecida en triglicéridos, mientras que las LDL grandes y flotantes transportan más. La reconstrucción de Hevonoja es una partícula representativa de tendencia central y no debe aplicarse acríticamente a todas las especies de LDL. |
3.2 Relación plasmática de colesterol libre a esterificado
Las mediciones enzimáticas y cromatográficas directas en suero humano sano muestran que el colesterol libre en plasma representa aproximadamente entre el 25 y el 30% del colesterol plasmático total, mientras que la fracción esterificada representa aproximadamente entre el 70 y el 75%. [18][19Un cociente FC/CE elevado se asocia con la disfunción de la LCAT, la quilomicronemia familiar y una señal aterogénica independiente en algunos estudios.20]
3.3 Colesterol libre de superficie: rol estructural
El colesterol libre en la superficie de la lipoproteína se intercala entre las cadenas acilas de los fosfolípidos, con su hidroxilo 3β proyectándose hacia la interfaz acuosa y su rígida esterol anillo alineado con las colas lipídicas. Esta “condensación” reduce el volumen libre en la monocapa, disminuye su permeabilidad al agua y aumenta la estabilidad mecánica de la partícula.21][22] Un FC de aproximadamente 25 mol% de lípidos superficiales es compatible con una monocapa líquida ordenada y bien compactada; esta configuración favorece la estabilidad de las partículas y la movilidad lateral para el procesamiento enzimático. [23]
3.4 Intercambio de colesterol libre
El colesterol libre en las superficies de las lipoproteínas se encuentra en equilibrio espontáneo con las membranas celulares y otras partículas de lipoproteínas a través de difusión acuosa pasiva. El tiempo de semivida de intercambio escala inversamente con la curvatura superficial: ~5 min para las HDL nacientes, ~45 min para las LDL. [21][23Este sistema cinético mantiene una actividad termodinámica del colesterol casi uniforme en todas las superficies lipídicas extracelulares.22][23]
4. Ésteres de colesterilo: Carga de transporte
Los ésteres de colesterol son totalmente hidrofóbicos y se encuentran en el núcleo de las lipoproteínas en forma de gotitas líquidas o de cristal líquido. Los ésteres de colesterol en las LDL representan entre el 40 y el 45% de la masa de la partícula y constituyen la mayor parte del colesterol que se transporta a las células mediante endocitosis mediada por receptores, donde la lipasa ácida lisosomal libera el colesterol libre para su uso. [17]
CETP lanzaderas de esteres de colesterol de HDL a lipoproteínas que contienen apoB a cambio de triglicéridos, enriqueciendo apoB partículas con carga de colesterol. Una fracción sustancial del EC del núcleo de las partículas de apoB refleja, por lo tanto, colesterol que ha circulado a través de células periféricas, plasma y HDL antes de ser transferido a las LDL, superpuesto a los reservorios de colesterol hepático secretados como VLDL. [24]
5. Maduración de HDL
HDL naciente se secreta como apoA-I pobre en lípidos que adquiere fosfolípidos y colesterol libre de las células periféricas a través de ABCA1, formando una partícula discoidal de dos moléculas de apoA-I en una conformación de “doble cinturón”.25] LCAT, activada por la apoA-I, transfiere un grupo acilo desde la posición sn-2 de la fosfatidilcolina al CL de la superficie, generando CE que migra hacia el núcleo hidrofóbico. [23][25]
A medida que el éster de colesterol (CE) se acumula, la bicapa discoidal se vuelve esférica. Las HDL2 maduras alcanzan un diámetro de ~10–12 nm y transportan ~30–60 moléculas de colesterol por partícula (principalmente CE), con ~5–15 de colesterol libre (FC) en la superficie. [23] El CE regresa directamente al hígado a través de SR-B1 o transferencias a partículas de apoB a través de CETP para su aclaramiento hepático mediante LDLR. [23][24]
6. Requerimientos de tejidos: síntesis *de novo* y captación exógena
6.1 La mayoría de los tejidos con núcleo pueden sintetizar colesterol de novo
Cada célula con núcleo del cuerpo humano expresa la vía biosintética completa del mevalonato y el colesterol.13][26] En condiciones habituales, la mayoría de los tejidos no dependen absolutamente del suministro exógeno continuo de colesterol proveniente del plasma; el balance cuantitativo entre la síntesis local y la captación derivada de lipoproteínas varía según el tejido, la edad y el estado fisiológico.
| Tejido | Fuente primaria de colesterol | Notas |
| Cerebro / SNC | Síntesis local (astrocitos → neuronas a través de apoE) | BHE excluye lipoproteína colesterol; efluente neto a través de 24S-OH-colesterol7] |
| Músculo esquelético | Síntesis predominantemente local | Baja demanda de nuevo esterol |
| Piel | ~Síntesis local 90% | Apoya la función de barrera |
| corteza suprarrenal | Mixto: LDLR > SR-B1 en humanos; inverso en roedores [27][28] | Los esteroles almacenados amortiguan la demanda esteroidogénica aguda |
| Gónadas (testículos, ovarios) | Mixto: LDLR + SR-B1; dependiente del estado reproductivo | El embarazo y la lactancia aumentan la demanda |
| Placenta | LDL y HDL maternos; solo embarazo | Fuera del alcance del análisis de adultos no embarazadas |
| Hígado | Síntesis + dieta + transporte inverso | Regulador maestro; secreta VLDL |
En la fisiología adrenocortical y gonadal humana, la endocitosis mediada por LDLR tiene mayor peso cuantitativo que el SR-B1 para el suministro de colesterol, lo opuesto al patrón de los roedores en el que el SR-B1 predomina. No obstante, el SR-B1 sigue estando expresado y biológicamente activo en los tejidos esteroidogénicos humanos, y la pérdida de función del SR-B1 en humanos produce anormalidades sutiles pero reales en la respuesta del cortisol estimulado por ACTH. La naturaleza de vía mixta del suministro de colesterol esteroidogénico humano debe preservarse en cualquier discusión mecanística.27][28]
6.2 Cinética del receptor de LDL: in vitro e in vivo no son intercambiables
In vitro en fibroblastos humanos cultivados, la unión de alta afinidad de la apoB-100 de las LDL se satura a concentraciones de proteína LDL inferiores a 50 µg/mL (Brown & Goldstein).29][30] Catapano y sus colegas (2024) describen esto como una semisaturación que corresponde a un equivalente plasmático de LDL-C de ~2,5 mg/dL, y lo combinan con la observación de que el colesterol LDL del líquido intersticial es de ~20% del colesterol LDL plasmático para argumentar que un colesterol LDL plasmático de ~12,5 mg/dL saturaría los receptores de LDL (LDLR) tisulares. [31] Este argumento depende de suposiciones intermedias sobre la proporción de masa de proteína a colesterol de LDL, la composición del líquido intersticial y la uniformidad del comportamiento del LDLR de los fibroblastos; este artículo cita el argumento sin respaldarlo como un umbral humano medido.
In vivo: la depuración de LDL a nivel de órganos en ratas y hámsteres (Spady y Dietschy) da una Km ≈ 90 mg/dL, aproximadamente 30 veces mayor, lo que refleja capas límite sin agitar, permeabilidad capilar y densidad de receptores en lugar de afinidad intrínseca.32] Este número *in vivo* de roedores no es directamente aplicable a los umbrales de entrega de colesterol a nivel de tejido humano.
| ▲ La cinética de saturación de receptores no es un umbral claro de administración en humanos.
La cadena (de fibroblaste *in vitro* Km → c-LDL equivalente plasmático → saturación de LDLR en líquido intersticial en células adrenales/gonadales) depende de suposiciones que no han sido validadas independientemente en humanos, y los hepatocitos están expuestos a sangre sinusoidal en lugar de a líquido intersticial ordinario. La afirmación sustancialmente defendible es empírica: los humanos con c-LDL plasmático muy bajo, mediante genética o terapia, no han mostrado signos clínicos de insuficiencia en el suministro de colesterol en las poblaciones informadas. |
6.3 Observaciones empíricas: C-LDL muy bajo en humanos
Los portadores de mutaciones homocigóticas con pérdida de función de PCSK9 son una muestra pequeña informada. Los homocigotos afroamericanos del estudio original Dallas Heart Study tenían niveles plasmáticos de c-LDL de por vida de 14–29 mg/dL (colesterol total típicamente de 50 a 80 mg/dL) sin anomalías clínicas evidentes en las limitadas descripciones publicadas.33][34] La población global total informada de tales homocigotos sigue siendo pequeña, por lo que esta evidencia respalda la ausencia de daños de gran efecto, pero no prueba un mínimo fisiológico universal.
Mayor evidencia proviene de los ensayos aleatorizados con inhibidores de PCSK9. Fourier (n = 27,564) tuvo una mediana de seguimiento aleatorizado de 2.2 años, con un valor mediano de c-LDL durante el tratamiento de 30 mg/dL y sin señales de insuficiencia suprarrenal, hipogonadismo, deterioro cognitivo, derrame cerebral hemorrágico, o enfermedad muscular.35] Odisea RESULTADOS (n = 18,924) tuvieron una mediana de seguimiento de 2.8 años con hallazgos de seguridad similares.36] La extensión abierta de FOURIER (FOURIER-OLE, n = 6,635 de los 27,564 originales) agregó una mediana 5.0 años de evolocumab exposición, trayendo exposición acumulativa en ese subconjunto a ~8.4 años, sin nueva señal de seguridad.37Estos son datos de seguridad amplios y prospectivos; no son una medición directa de los umbrales de entrega de colesterol humano, pero delimitan el rango seguro empíricamente demostrado de c-LDL plasmático desde arriba.
En estudios sobre la linfa periférica humana, se ha reportado que el nivel de LDL en el líquido intersticial es de aproximadamente 10–20% de la concentración de LDL en plasma. [38][39Estos datos son descriptivos y no establecen un umbral medido de saturación de tejido humano.
7. Una estimación mediante un modelo de transporte del colesterol circulante mínimo
| ■ Lo que esta sección es y no es.
Esta sección presenta una estimación basada en un modelo de transporte de la concentración mínima de colesterol plasmático que simultáneamente (i) mantiene la integridad estructural del sistema de lipoproteínas circulantes y (ii) satisface la demanda neta diaria de colesterol exógeno de un adulto no gestante en condiciones habituales. La estimación es un cálculo, no una medición. Las ecuaciones y los valores de los parámetros se encuentran en la Sección 11. |
7.1 Integridad estructural
Todas las partículas de lipoproteínas circulantes requieren colesterol libre en la superficie para estabilizar su monocapa de fosfolípidos. Utilizando recuentos de partículas consistentes con RMN (LDL-P en nmol/L; HDL-P en µmol/L) y conversión explícita de unidades: [15][17]
| Clase Partícula | Concentración en clase (clínica) | Partículas por dL | FC de superficie por partícula | Contribución de FC de superficie (mg/dL) |
| LDL | LDL-C 100 mg/dL; LDL-P ~1,200 nmol/L | ~7.1 × 10¹⁶ | ~400 | ~18 |
| HDL | HDL-C 50 mg/dL; HDL-P ~30 µmol/L | ~1.8 × 10¹⁸ | ~10 | ~12 |
| VLDL IDL | Impulsado por triglicéridos; recuentos de partículas ~10¹⁵–10¹⁶ /dL | — | ~variable | ~2–3 |
| Superficie total FC (modelo, TC inicial ~190) | — | — | — | ~30–33 |
| FC plasmático total medido (~28% de TC a TC 190) | — | — | — | ~50–55 (incluye el FC principal y otros) |
El colesterol libre (FC) de superficie derivado del modelo de ~30–33 mg/dL a valores clínicos típicos de lípidos, más el FC de núcleo de ~10–15 mg/dL (las LDL tienen ~200 FC de núcleo por partícula, las HDL tienen una contribución menor de FC de núcleo), y una pequeña contribución de los remanentes de quilomicrones y Lp(a), suman aproximadamente 45–55 mg/dL de FC plasmática. Esto concuerda con la fracción de colesterol libre (FC) en plasma, medida directamente, de ~25–30% del colesterol total, cuando el colesterol total es de ~190 mg/dL. [18][19]
7.2 Suministro neto diario de colesterol exógeno a los tejidos periféricos
transporte inverso de colesterol estudios de trazadores en adultos sanos (Turner et al., 2012) estiman la salida de FC de los tejidos de todo el cuerpo en 3.79 ± 0.88 mg/kg/h, reportada en el artículo original como ≈8 g/día; esto corresponde a ~6.4 g/día a 70 kg o ~8 g/día a 88 kg (el peso corporal aproximado medio del estudio).40Este es un flujo de intercambio bidireccional, no una demanda de entrega neta. La absorción exógena obligatoria neta estimada por los tejidos cuya síntesis local es insuficiente en condiciones basales, en un adulto no gestante, es de aproximadamente:
| Tejido / función | Uso diario estimado de colesterol | Fuente de suministro |
| Esteroidogénesis suprarrenal (basal) | ~30–60 mg/día | Principalmente mediado por LDLR; contribución de SR-B1 |
| Esteroidogénesis gonadal (adulto no gestante, basal) | < 10 mg/día | Predominantemente mediado por LDLR en humanos |
| Ácido biliar síntesis | ~400 mg/día | Reserva hepática; no una demanda periférica |
| Recambio de membranas extrahepáticas (todas) | ~600–700 mg/día | Sintetizado localmente |
| Demanda exógena obligatoria neta (adulto no gestante, basal) | Del orden de decenas de mg/día (~50 mg/día como estimación central) | Encontrado con una concentración plasmática de c-LDL muy baja |
| ▲ Adulto no gestante, solo valor inicial.
El embarazo duplica aproximadamente el colesterol plasmático materno; la demanda placentaria se encuentra en un orden de magnitud diferente y no se incluye aquí. La enfermedad aguda, el estrés severo y la rápida regeneración tisular también aumentan la demanda. |
7.3 Piso de transporte combinado estimado por el modelo
Resultado del modelo en un rango de valores de CT plasmático:
| Escenario de plasma TC | Colesterol libre en la superficie de LDL (mg/dL) | Colesterol libre en la superficie de HDL (mg/dL) | CT plasmático total (mg/dL) | Notas |
| TC 188 (promedio en EE. UU.) | ~18 | ~12 | ~50–55 | Línea base |
| TC 100 (objetivo PCSK9-Rx) | ~10 | ~10 | ~30 | Adecuado; muy por encima de cualquier piso estructural |
| TC 70 (homocigoto LOF para PCSK9) | ~4 | ~9 | ~17 | En o cerca del límite inferior del modelo; tolerado empíricamente |
| TC 50 (genética extrema) | ~2 | ~8 | ~13 | Por debajo de cualquier caso empírico bien validado |
En resumen: el modelo de transporte predice que un adulto no gestante en condiciones basales puede mantener un sistema de lipoproteínas circulantes funcional y satisfacer ~50 mg/día de demanda tisular exógena a un colesterol total plasmático del orden de 50–90 mg/dL (rango de sensibilidad: 40–110 mg/dL). La forma química se mantiene aproximadamente en un 70% esterificado y un 30% no esterificado en todo este rango. La estimación del nivel mínimo del modelo concuerda numéricamente con el colesterol total (CT) plasmático observado en homocigotos con pérdida de función (LOF) de PCSK9 (~50–80 mg/dL), lo que proporciona una corroboración independiente de las observaciones clínicas y genéticas. El CT plasmático promedio en adultos estadounidenses en la actualidad es de ~188 mg/dL [8] supera el piso estimado por el modelo en aproximadamente 2 a 4 veces, dependiendo del escenario de sensibilidad que se utilice.
7.4 Límites de sensibilidad
| Suposición variada | Rango probado | Efecto en la estimación del piso de transporte |
| Volumen plasmático | 2.5–4.0 L | Escalamiento inverso; efecto primario en la masa absoluta, secundario en mg/dL |
| LDL-P con un LDL-C determinado | ± 50% de la muestra representativa | Afecta al componente FC de forma proporcional |
| Superficie de colesterol libre por partícula de LDL | 300–500 | ± 15% en el componente FC |
| FC por partícula de HDL | 5–15 | ± 25% en el componente FC del HDL |
| Demanda periférica neta | 20–150 mg/día | Añade un margen de 5–30 mg/dL |
| Embarazo / enfermedad aguda | — | Modelo no aplicable; la demanda puede aumentar de 2 a 10 veces |
| Rango plausible combinado (adulto no embasazado, basal) | — | ~40–110 mg/dL CT en plasma |
8. Causalidad de ApoB y riesgo de ASCVD
Si los tejidos periféricos requieren colesterol circulante es una cuestión distinta de si las lipoproteínas circulantes que contienen apoB son causalmente aterogénicas. Aleatorización mendeliana a través de > 50 instrumentos genéticos (LDLR, PCSK9, HMGCR, NPC1L1, APOB, ANGPTL3, LPL, CETP) ha establecido que el riesgo de por vida de ASCVD sigue la exposición acumulada a partículas de apoB en lugar de solo la concentración absoluta de LDL-C, con un relación log-lineal entre la apoB y el riesgo de eventos que se extiende por debajo de 20 mg/dL de C-LDL. [41][42]
El riesgo aterogénico impuesto por una masa de colesterol circulante dada está determinado por el número de partículas (recuento de apoB) y el tiempo de residencia, y no por si el colesterol se requiere para la entrega a los tejidos. Las dos preguntas son fisiológicamente ortogonales.
9. Contexto evolutivo y mecanicista
La biosíntesis de colesterol requiere 11 moléculas de O₂ y aproximadamente 100 equivalentes de ATP por molécula de colesterol, e involucra intermediarios tóxicos.43][44Este gasto es coherente con el surgimiento del colesterol a medida que los eucariotas se adaptaban a una creciente tensión de oxígeno atmosférico; el colesterol consume O₂ durante la síntesis y reduce la permeabilidad de la membrana al O₂, funcionando parcialmente como un sumidero de O₂.44]
Bajo la perspectiva de modelado desarrollada en la Sección 7, el sistema de transporte de lipoproteínas se interpreta mejor como (i) un vehículo para la distribución de triglicéridos —las LDL son un subproducto cinético del catabolismo de las VLDL— y (ii) un tampón de potencial químico cinético que mantiene una actividad de esteroles uniforme en todas las superficies lipídicas extracelulares.22][23Bajo esta interpretación, la concentración de colesterol circulante de la población moderna está determinada principalmente por la capacidad de depuración hepática (densidad de LDLR, actividad de PCSK9, actividad de IDOL) más que por la demanda periférica.
10. Conclusiones
- El colesterol corporal total en un adulto es de aproximadamente 120–150 g; el compartimento plasmático, de 3–7 g, representa el 2–5% —y no el 10–30%— del contenido corporal.
- El cerebro contiene aproximadamente entre 30 y 35 g (22–25% del colesterol corporal), que se sintetiza íntegramente de forma local y queda aislado del plasma gracias a la barrera hematoencefálica.
- Una partícula de LDL representativa de 22 nm contiene ~2200 moléculas de colesterol (~1600 CE + ~600 FC, de las cuales ~400 FC están en la superficie). Las LDL son heterogéneas; estos números describen una reconstrucción representativa.
- El colesterol plasmático es, aproximadamente, 70% esterificado y 30% libre.
- En los seres humanos, la endocitosis mediada por LDLR tiene mayor peso que SR-B1 para la captación de colesterol adrenal y gonadal, pero SR-B1 sigue siendo biológicamente activo.
- Utilizando recuentos de partículas de lipoproteínas (LDL-P en nmol/L, HDL-P en µmol/L), el colesterol total plasmático mínimo estimado por el modelo para un adulto no embarazado en condiciones basales es de aproximadamente 50–90 mg/dL (sensibilidad: 40–110 mg/dL). Se trata de un escenario calculado, no de un mínimo fisiológico humano medido directamente.
- El suministro diario neto de colesterol exógeno a los tejidos periféricos en un adulto no gestante en condiciones basales es del orden de decenas de mg/día, el cual se satisface fácilmente con un C-LDL plasmático en el rango de 15 a 30 mg/dL observado en portadores de pérdida de función de PCSK9 y en sujetos de ensayos con inhibidores de PCSK9 (mediana de FOURIER de 2.2 años, mediana del subconjunto FOURIER-OLE de 5.0 años adicionales), en quienes no se ha informado ninguna señal de insuficiencia en el suministro de colesterol.
- El promedio de colesterol total plasmático en adultos de EE. UU. de ~188 mg/dL (NHANES 2017-2018) excede el límite mínimo de transporte estimado por el modelo en aproximadamente 2 a 4 veces, según el escenario de sensibilidad que se utilice. El excedente es metabólicamente tolerado, está causalmente vinculado al riesgo de ASCVD sobre una base por apoB y no es necesario para ninguna función fisiológica conocida en un adulto no gestante bajo condiciones basales.
11. Apéndice de métodos
11.1 Alcance
Este apéndice especifica las ecuaciones, los valores de los parámetros y las suposiciones utilizados en la estimación del modelo de transporte de la Sección 7.
11.2 Ecuaciones
Masa de colesterol en plasma:
M_plasma = TC × V_plasma / 1000 (g)
donde TC está en mg/dL y V_plasma está en dL.
Conversión de la concentración de partículas obtenida por RMN a partículas por dL:
N_partículas_por_dL = [clase-P] × 10⁻⁹ × N_A / 10 (LDL: [LDL-P] en nmol/L)
N_partículas_por_dL = [clase-P] × 10⁻⁶ × N_A / 10 (HDL: [HDL-P] en µmol/L)
donde N_A = 6.022 × 10²³ /mol. El /10 convierte L a dL.
Ejemplo resuelto, LDL-P = 1 200 nmol/L:
1.200 × 10⁻⁹ × 6.022 × 10²³ / 10 = 7.23 × 10¹⁶ partículas/dL
Ejemplo resuelto, HDL-P = 30 µmol/L:
30 × 10⁻⁶ × 6,022 × 10²³ / 10 = 1,81 × 10¹⁸ partículas/dL
Contribución del FC de superficie procedente de una clase de lipoproteínas:
[FC]_clase (mg/dL) = N_partículas_por_dL × n_FC,clase × MW_col × 1000 / N_A
Ejemplo resuelto, LDL a LDL-C 100 (N = 7.23 × 10¹⁶/dL), 400 FC de superficie por partícula, MW_col = 386.7 g/mol:
7.23 × 10¹⁶ × 400 × 386.7 × 1000 / 6.022 × 10²³ = ~18.2 mg/dL
Piso de transporte total estimado por el modelo:
TC_piso ≈ Σ [FC]_clase,superficie + Σ [FC]_clase,núcleo + CE_núcleo,estructural + CE_reserva_de_entrega
11.3 Valores de los parámetros utilizados
| Parámetro | Valor central | Fuente / base | Rango de sensibilidad |
| Volumen plasmático | 3,0 L (= 30 dL) | ~42 mL/kg × 70 kg | 2.5–4.0 L |
| LDL-P a un LDL-C de 100 mg/dL | ~1 200 nmol/L (= 7,1 × 10¹⁶ /dL) | Datos de perfil lipídico por RMN; MESA, Júpiter | 600–1 800 nmol/L |
| HDL-P a HDL-C de 50 mg/dL | ~30 µmol/L (= 1.8 × 10¹⁸ /dL) | Datos de RMN | 20–40 µmol/L |
| Superficie de colesterol libre por partícula de LDL | 400 | Reconstrucción de Hevonoja 2000 [15] | 300–500 |
| FC por partícula de HDL (total) | ~10 | Análisis de la composición del HDL2/3; calculada a partir de la relación HDL-C/HDL-P en valores centrales | 5–15 |
| Demanda exógena periférica neta diaria (adulto no embarazado) | ~50 mg/día | Estimación combinada de las glándulas suprarrenales, gonadales y membranas [26][27] | 20–150 mg/día |
| Colesterol MW | 386,7 g/mol | Corregido | n/a |
| El número de Avogadro | 6,022 × 10²³ /mol | Corregido | n/a |
11.4 Supuestos
El cálculo del piso de transporte depende de los supuestos que se detallan a continuación:
- La persona adulta que no está embarazada se encuentra en un estado de equilibrio metabólico en condiciones normales (sin embarazo, sin enfermedad aguda, sin regeneración tisular rápida).
- El volumen plasmático se considera un valor único representativo, en lugar de un valor individualizado.
- El recuento de partículas varía de manera aproximadamente lineal con la concentración de colesterol de clase en el rango modelado; esta aproximación deja de ser válida en los valores extremos.
- El FC superficial por LDL se ha tomado de la reconstrucción de Hevonoja; la composición superficial varía ligeramente según el tamaño de la partícula y el estado de remodelación.
- El contenido de FC por partícula de HDL refleja la composición de las partículas esféricas maduras de HDL2/3; las partículas discoidales incipientes de HDL tienen un contenido de FC por partícula diferente.
- Se considera que la demanda periférica neta es del orden de decenas de mg/día; esto representa la suma de los valores a nivel tisular, los cuales presentan una amplia incertidumbre en diferentes estados endocrinos.
- Lp(a), quilomicrones, y los restos de quilomicrones no se modelan por separado; incluirlos aumentaría ligeramente la contribución de la FC.
- El modelo es de estado estacionario y no toma en cuenta las variaciones diurnas, posprandial, y la variación estacional.
11.5 Lo que no establece este apéndice
Este apéndice no establece un mínimo fisiológico humano medido para el colesterol total. Proporciona una estimación transparente y reproducible basada en un modelo de transporte. La evidencia empírica directa sobre la seguridad de niveles muy bajos de colesterol LDL en plasma en humanos (portadores de PCSK9 con pérdida de función; participantes en ensayos con inhibidores de PCSK9) se presenta por separado en la sección 6.3 y sigue siendo la evidencia más sólida de que el nivel mínimo predicho por el modelo es fisiológicamente plausible. Las dos líneas de evidencia son independientes: un modelo de transporte y una observación clínica/genética. Son numéricamente consistentes —ambas indican que el colesterol total en plasma puede descender a ~50–80 mg/dL sin consecuencias clínicas identificadas en un adulto no embarazado—, pero ninguna de ellas por sí sola es concluyente.
Referencias
- Mach F, Baigent C, Catapano AL, et al. 2019 ESC/EAS Guidelines for the management of dyslipidaemias: lipid modification to reduce cardiovascular risk. Eur Heart J. 2020;41(1):111-188. doi:10.1093/eurheartj/ehz455
- Pikuleva IA, Curcio CA. Cholesterol in the retina: the best is yet to come. Prog Retin Eye Res. 2014;41:64-89. doi:10.1016/j.preteyeres.2014.03.002
- Mc Auley MT, Wilkinson DJ, Jones JJ, Kirkwood TB. A whole-body mathematical model of cholesterol metabolism and its age-associated dysregulation. BMC Syst Biol. 2012;6:130. Published 2012 Oct 10. doi:10.1186/1752-0509-6-130
- Goodman DS, Noble RP, Dell RB. Three-pool model of the long-term turnover of plasma cholesterol in man. J Lipid Res. 1973;14(2):178-188.
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Lütjohann D, Breuer O, Ahlborg G, et al. Cholesterol homeostasis in human brain: evidence for an age-dependent flux of 24S-hydroxycholesterol from the brain into the circulation. Proc Natl Acad Sci U S A. 1996;93(18):9799-9804. doi:10.1073/pnas.93.18.9799
- Gao Y, Shah LM, Ding J, Martin SS. US Trends in Cholesterol Screening, Lipid Levels, and Lipid-Lowering Medication Use in US Adults, 1999 to 2018. J Am Heart Assoc. 2023;12(3):e028205. doi:10.1161/JAHA.122.028205
- Canfrán-Duque A, Rotllan N, Zhang X, et al. Macrophage-Derived 25-Hydroxycholesterol Promotes Vascular Inflammation, Atherogenesis, and Lesion Remodeling. Circulation. 2023;147(5):388-408. doi:10.1161/CIRCULATIONAHA.122.059062
- van Meer G, Voelker DR, Feigenson GW. Membrane lipids: where they are and how they behave. Nat Rev Mol Cell Biol. 2008;9(2):112-124. doi:10.1038/nrm2330
- Das A, Brown MS, Anderson DD, Goldstein JL, Radhakrishnan A. Three pools of plasma membrane cholesterol and their relation to cholesterol homeostasis. Elife. 2014;3:e02882. Published 2014 Jun 11. doi:10.7554/eLife.02882
- Schoop V, Martello A, Eden ER, Höglinger D. Cellular cholesterol and how to find it. Biochim Biophys Acta Mol Cell Biol Lipids. 2021;1866(9):158989. doi:10.1016/j.bbalip.2021.158989
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Jones PJ, Pappu AS, Hatcher L, Li ZC, Illingworth DR, Connor WE. Dietary cholesterol feeding suppresses human cholesterol synthesis measured by deuterium incorporation and urinary mevalonic acid levels. Arterioscler Thromb Vasc Biol. 1996;16(10):1222-1228. doi:10.1161/01.atv.16.10.1222
- Hevonoja T, Pentikäinen MO, Hyvönen MT, Kovanen PT, Ala-Korpela M. Structure of low density lipoprotein (LDL) particles: basis for understanding molecular changes in modified LDL. Biochim Biophys Acta. 2000;1488(3):189-210. doi:10.1016/s1388-1981(00)00123-2
- Kumar V, Butcher SJ, Öörni K, et al. Three-dimensional cryoEM reconstruction of native LDL particles to 16Å resolution at physiological body temperature. PLoS One. 2011;6(5):e18841. Published 2011 May 9. doi:10.1371/journal.pone.0018841
- Feingold KR. Introduction to Lipids and Lipoproteins. In: Feingold KR, Adler RA, Ahmed SF, et al., eds. Endotext. South Dartmouth (MA): MDText.com, Inc.; January 14, 2024.
- Leonard PJ, Shaper AG, Jones KW. Relationship between free and total cholesterol values in human serum. Am J Clin Nutr. 1965;17(6):377-380. doi:10.1093/ajcn/17.6.377
- Saier EL, Nordstrand E, Juves MW, Hartsock RJ. The ratio of free to esterified cholesterol in serum. A new discriminant in correlating lipid metabolism with disease state. Am J Clin Pathol. 1979;71(1):83-87. doi:10.1093/ajcp/71.1.83
- Bagheri B, Alikhani A, Mokhtari H, Rasouli M. The Ratio of Unesterified/esterified Cholesterol is the Major Determinant of Atherogenicity of Lipoprotein Fractions. Med Arch. 2018;72(2):103-107. doi:10.5455/medarh.2018.72.103-107
- Lange Y, Steck TL. Cholesterol homeostasis and the escape tendency (activity) of plasma membrane cholesterol. Prog Lipid Res. 2008;47(5):319-332. doi:10.1016/j.plipres.2008.03.001
- Maxfield FR, Tabas I. Role of cholesterol and lipid organization in disease. Nature. 2005;438(7068):612-621. doi:10.1038/nature04399
- Rothblat GH, Phillips MC. High-density lipoprotein heterogeneity and function in reverse cholesterol transport. Curr Opin Lipidol. 2010;21(3):229-238. doi:10.1097/mol.0b013e328338472d
- Barter PJ, Brewer HB Jr, Chapman MJ, Hennekens CH, Rader DJ, Tall AR. Cholesteryl ester transfer protein: a novel target for raising HDL and inhibiting atherosclerosis. Arterioscler Thromb Vasc Biol. 2003;23(2):160-167. doi:10.1161/01.atv.0000054658.91146.64
- Shih AY, Sligar SG, Schulten K. Maturation of high-density lipoproteins. J R Soc Interface. 2009;6(39):863-871. doi:10.1098/rsif.2009.0173
- Cerqueira NM, Oliveira EF, Gesto DS, et al. Cholesterol Biosynthesis: A Mechanistic Overview. Biochemistry. 2016;55(39):5483-5506. doi:10.1021/acs.biochem.6b00342
- Azhar S, Reaven E. Scavenger receptor class BI and selective cholesteryl ester uptake: partners in the regulation of steroidogenesis. Mol Cell Endocrinol. 2002;195(1-2):1-26. doi:10.1016/s0303-7207(02)00222-8
- Gomez-Sanchez CE, Gomez-Sanchez EP. Cholesterol Availability and Adrenal Steroidogenesis. Endocrinology. 2024;165(4):bqae032. doi:10.1210/endocr/bqae032
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Goldstein JL, Brown MS. Familial hypercholesterolemia: identification of a defect in the regulation of 3-hydroxy-3-methylglutaryl coenzyme A reductase activity associated with overproduction of cholesterol. Proc Natl Acad Sci U S A. 1973;70(10):2804-2808. doi:10.1073/pnas.70.10.2804
- Borghi C, Bragagni A. There are those who would like zero LDL cholesterol. Eur Heart J Suppl. 2024;26(Suppl 1):i19-i22. Published 2024 Apr 17. doi:10.1093/eurheartjsupp/suae012
- Spady DK, Bilheimer DW, Dietschy JM. Rates of receptor-dependent and -independent low density lipoprotein uptake in the hamster. Proc Natl Acad Sci U S A. 1983;80(11):3499-3503. doi:10.1073/pnas.80.11.3499
- Cohen JC, Boerwinkle E, Mosley TH Jr, Hobbs HH. Sequence variations in PCSK9, low LDL, and protection against coronary heart disease. N Engl J Med. 2006;354(12):1264-1272. doi:10.1056/NEJMoa054013
- Zhao Z, Tuakli-Wosornu Y, Lagace TA, et al. Molecular characterization of loss-of-function mutations in PCSK9 and identification of a compound heterozygote. Am J Hum Genet. 2006;79(3):514-523. doi:10.1086/507488
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- O’Donoghue ML, Giugliano RP, Wiviott SD, et al. Long-Term Evolocumab in Patients With Established Atherosclerotic Cardiovascular Disease. Circulation. 2022;146(15):1109-1119. doi:10.1161/CIRCULATIONAHA.122.061620
- Sloop CH, Dory L, Roheim PS. Interstitial fluid lipoproteins. J Lipid Res. 1987;28(3):225-237.
- Reichl D, Simons LA, Myant NB, Pflug JJ, Mills GL. The lipids and lipoproteins of human peripheral lymph, with observations on the transport of cholesterol from plasma and tissues into lymph. Clin Sci Mol Med. 1973;45(3):313-329. doi:10.1042/cs0450313
- Turner S, Voogt J, Davidson M, et al. Measurement of reverse cholesterol transport pathways in humans: in vivo rates of free cholesterol efflux, esterification, and excretion. J Am Heart Assoc. 2012;1(4):e001826. doi:10.1161/JAHA.112.001826
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Sniderman AD, Thanassoulis G, Glavinovic T, et al. Apolipoprotein B Particles and Cardiovascular Disease: A Narrative Review. JAMA Cardiol. 2019;4(12):1287-1295. doi:10.1001/jamacardio.2019.3780
- Summons RE, Bradley AS, Jahnke LL, Waldbauer JR. Steroids, triterpenoids and molecular oxygen. Philos Trans R Soc Lond B Biol Sci. 2006;361(1470):951-968. doi:10.1098/rstb.2006.1837
- Brown AJ, Galea AM. Cholesterol as an evolutionary response to living with oxygen. Evolution. 2010;64(7):2179-2183. doi:10.1111/j.1558-5646.2010.01011.x