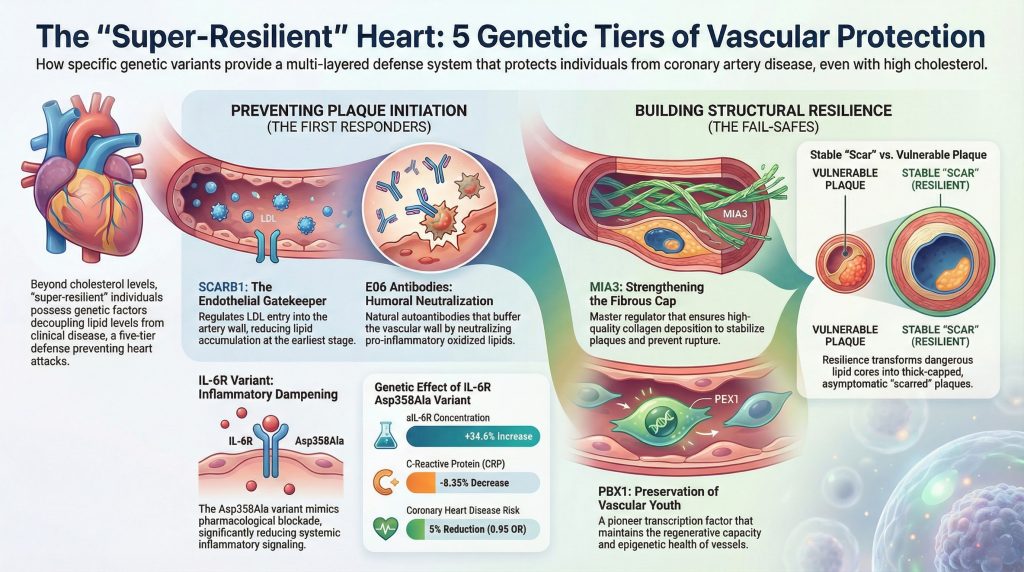
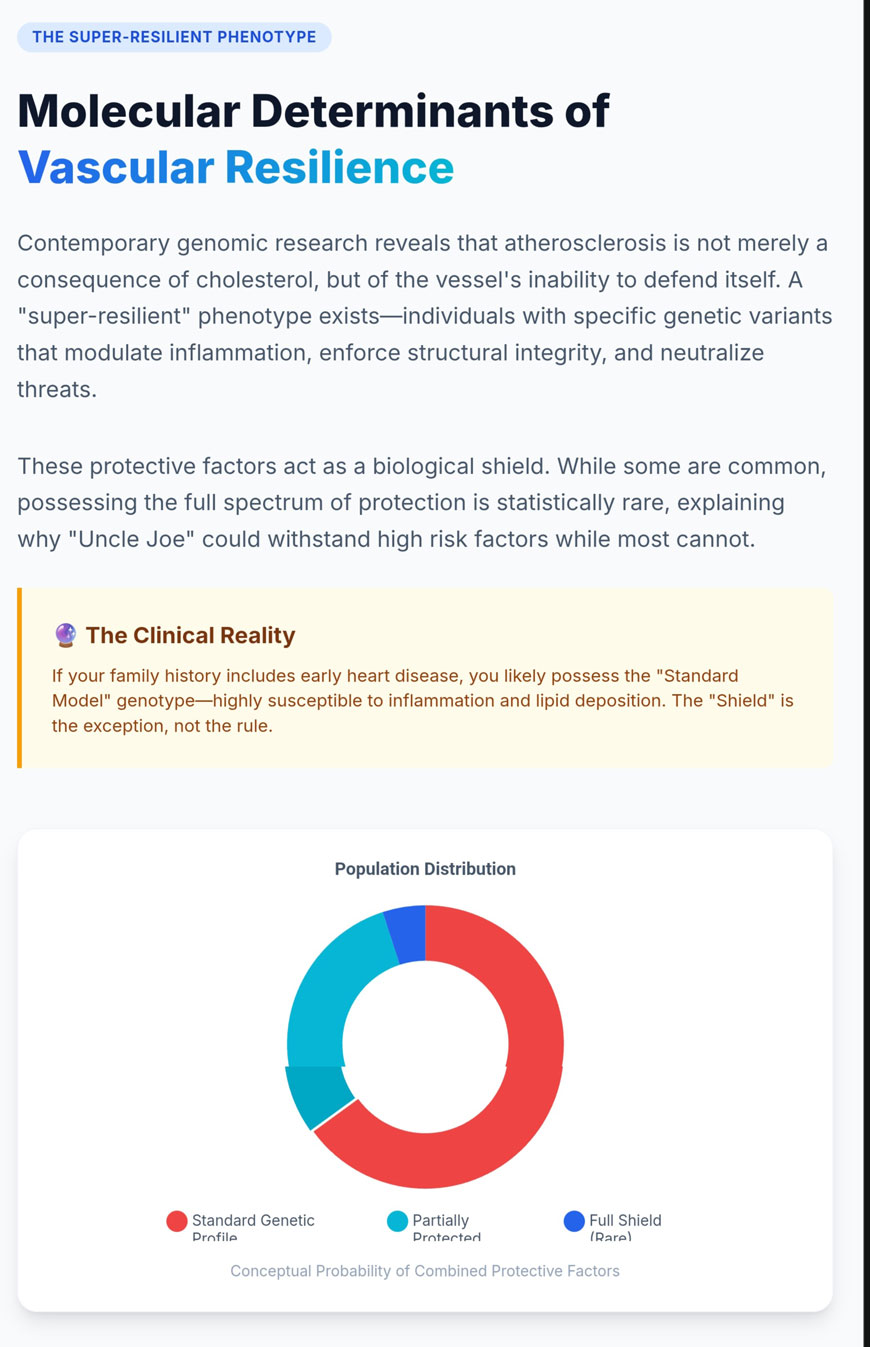
歴史的な概念化としては、 動脈硬化 これまで、血中濃度の間の線形関係に焦点を当ててきたことが多く、 コレステロール レベルおよび閉塞性疾患の進行 冠動脈疾患. 。しかし、現代のゲノム研究、とりわけ大規模なゲノムワイド関連解析や メンデルランダム化 分析の結果、はるかに複雑な状況が明らかになった [1]. 現在では、特定の個人が「超耐性」の血管表現型を有していることが明らかになっており、その特徴は、高レベルの全身性ストレスに耐えうる能力にある。 危険因子 破裂しやすいアテローム性動脈硬化症を発症することなく 病変 [1]. この耐性は、全身および局所的な炎症シグナル伝達、血管壁の構造的完全性、内皮細胞を介した輸送など、複数のレベルで血管の反応を調節する一連の個別の遺伝的要因によって支えられている。 リポタンパク質, 、および酸化促進的な脅威に対する自然免疫による中和作用 [1]. この理解において中心となるのは、インターロイキン-6受容体の変異体p.Asp358Alaが果たす役割である [1–3], 輸送 タンパク質 MIA3/TANGO1 [6,7], スカベンジャー受容体SCARB1 [8–10], 先駆的な転写因子PBX1 [11–13]、およびE06などの酸化リン脂質に対する天然の自己抗体の保護作用 [14–16].
IL-6受容体経路の炎症による調節
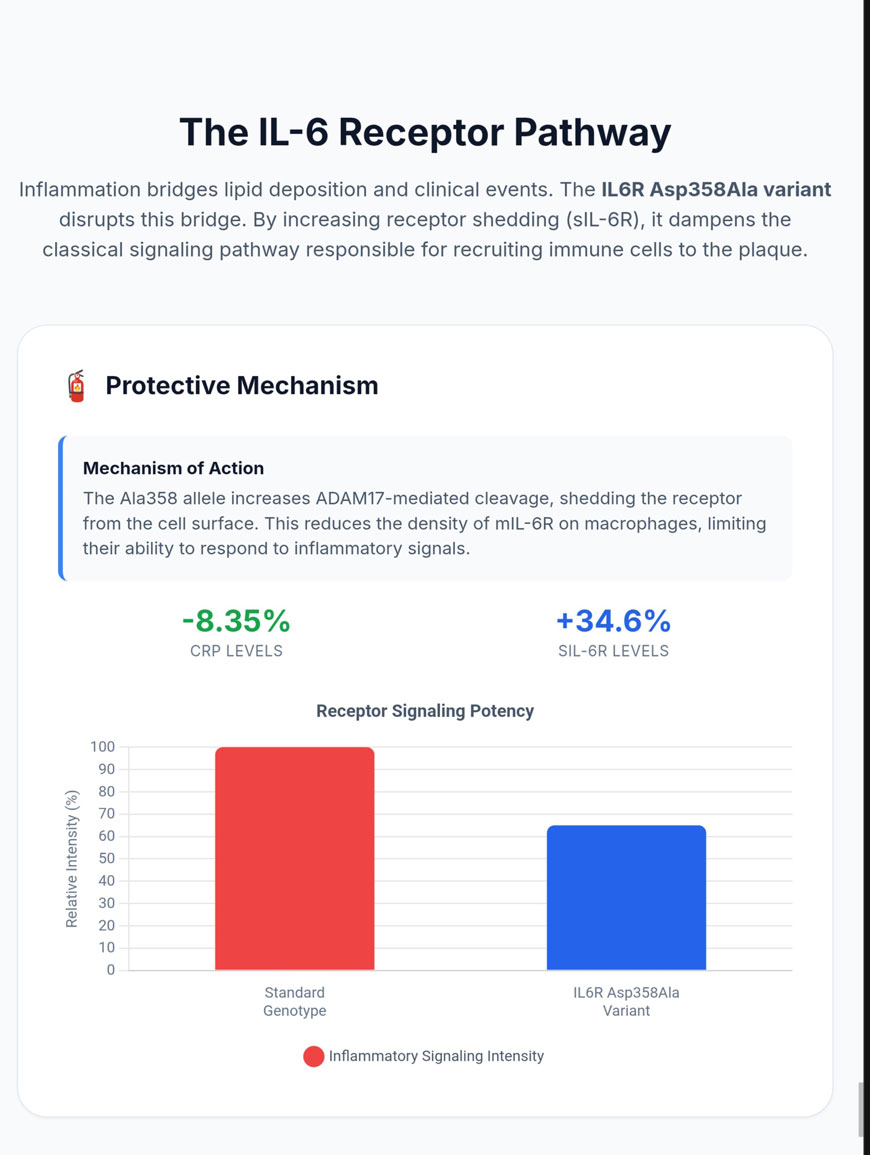
炎症 は、~の根本的な原動力であり、 アテローム発生, 、脂質沈着と以下のような臨床的事象との間の架け橋として機能し、 心筋梗塞 [1]. この過程に関与するとされるサイトカインのうち、, インターロイキン-6 (IL-6) 免疫応答の多面的な調節因子として中心的な役割を果たしており、主に マクロファージ, 、T細胞、および脂肪細胞 [2]. そのシグナル伝達機構は、 IL-6 これは、膜結合型IL-6受容体(mIL-6R)を介して起こる古典的シグナル伝達と、可溶性型受容体(sIL-6R)によって媒介されるトランスシグナル伝通の2つに分類される [2]. 従来のシグナル伝達は、mIL-6Rを発現する細胞(肝細胞や特定の免疫細胞サブセットなど)に限定されていますが、トランスシグナル伝達により、IL-6はシグナル伝達サブユニットであるgp130を発現するあらゆる細胞を活性化することが可能となり、その結果、このサイトカインの炎症誘発作用の及ぶ範囲が血管へと拡大します。 内皮 およびその他の重要な組織 [2].
Asp358Ala変異体と脱落メカニズム
IL6R遺伝子におけるrs2228145一塩基多型(SNP)の同定により、p.Asp358Ala置換が生じ、IL-6の因果的役割を観察するための独自の遺伝学的視点が得られた。 冠動脈疾患 [1]. この非同義変異は、受容体の細胞外ドメインをコードするエクソン9内の、遺伝子の1073番目の位置において、アデニンからシトシンへの転移を伴うものである [2]. この置換は、メタロプロテアーゼADAM17(mIL-6RをsIL-6Rに変換する役割を担う「シェダーゼ」としても知られる)によって認識される切断部位(バリン356)のすぐ近くで生じる [2].
アラニン(C)対立遺伝子の存在は、受容体がタンパク質分解を受ける感受性を著しく高め、その結果、受容体の分布に劇的な変化をもたらす。Ala358変異の保因者では、単球およびCD4+ T細胞におけるmIL-6Rの表面発現が著しく低下し—1対立遺伝子あたり最大28%の減少—を示し、同時に血中sIL-6R濃度が著しく上昇し、通常はマイナー対立遺伝子のコピー1つあたり34.6%の増加が見られる[2].
メンデルランダム化と因果的保護統計
Asp358Ala変異体をメンデル型遺伝の遺伝的ツールとして用いる ランダム化 これにより、ヒト集団におけるIL-6受容体阻害の長期的な影響を推定することが可能となる [1]. さまざまな証拠が一貫して示しているように、このメカニズムを介したIL-6シグナル伝達の抑制は、幅広い心血管疾患や炎症性疾患に対して保護効果をもたらす [1–3]. 遺伝学的知見を、IL-6Rモノクローナル抗体の無作為化臨床試験で観察された効果と比較することにより トシリズマブ, 研究者らは、この遺伝子変異が薬理学的遮断を効果的に模倣することを確認した [1].
表1. 表現型または バイオマーカー 協会
| 表現型またはバイオマーカー | 効果量(Ala358対立遺伝子あたり) | 95% 信頼区間 | p値 |
| 血漿中のIL-6R濃度 | +34.6%(相対的な増加率) | [33.2%, 36.1%] | < 1 × 10⁻²⁰ |
| C反応性タンパク質 (CRP) | -8.35%(相対的な減少) | [-9.38%, -7.31%] | < 1 × 10⁻¹⁵ |
| フィブリノゲン濃度 | -0.85%(相対的な減少) | [-1.10%, -0.60%] | 1.2 × 10⁻¹⁰ |
| 冠動脈性心疾患(CHD) | 0.95(オッズ比) | [0.93, 0.97] | 1.53 × 10⁻⁵ |
| 末梢動脈疾患 (PAD) | 0.91(オッズ比) | [0.88, 0.94] | 6.2 × 10⁻⁹ |
最大133,449人の被験者を分析した研究コンソーシアムから集約されたデータ [1].
これらの知見の統計的有意性は、IL-6Rシグナル伝達が単なる疾患のマーカーではなく、因果関係に関わる要因であることを示唆している。sIL-6Rに結合した循環IL-6分子の半減期が潜在的に延長しているにもかかわらず、CADリスクの低下が見られる。その生物学的正味効果は、形成および不安定化に必要な炎症反応の低減である。 歯垢 [1]. この遺伝的な「抑制」により、 動脈 脂質貯留に通常伴う大規模な炎症反応の発生を防ぎ、その結果、その存在と LDL 臨床症状の発症から。バングラデシュ人を対象とした最近の研究は、この多型が2型糖尿病のリスク低下と関連していることをさらに裏付けている。 糖尿病 そして 高血圧 [5].
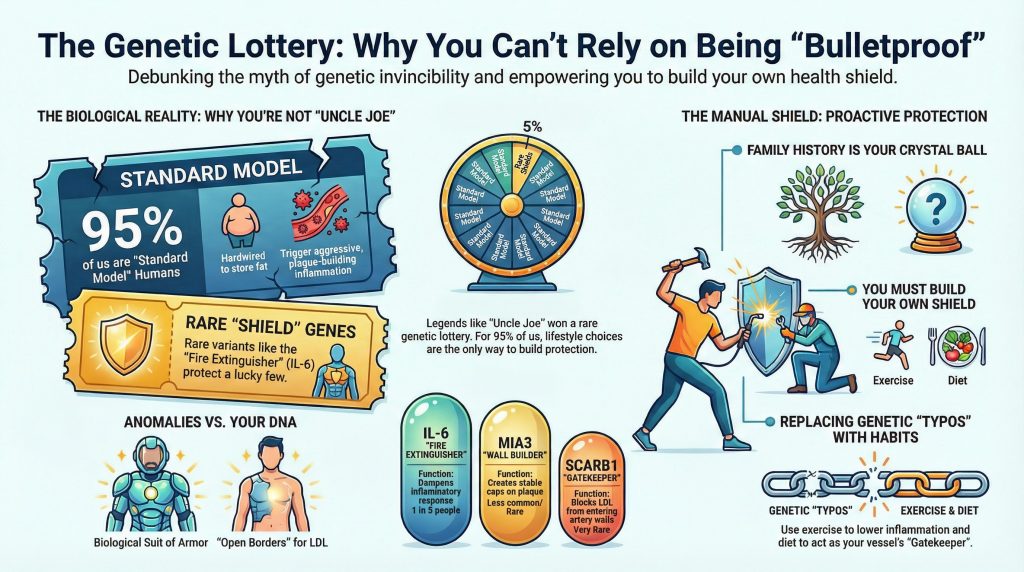
治療上の意義とより広範な保護効果
Asp358Ala変異から得られた知見は、創薬において極めて重要な意味を持ちます。この変異は、以下のような従来の危険因子を著しく変化させることなく、全身性の炎症を軽減する(CRPおよびフィブリノゲンの低下によって裏付けられている)ため、 血圧, 、この研究は、IL-6Rの遮断が、その影響を軽減するための精密な手段であることを強調している 残存炎症リスク [1]. さらに、この変異体の保護効果は慢性期にとどまらず、 心血管疾患 急性重篤疾患に対して。メンデルランダム化研究によると、IL-6R遮断は、重症COVID-19における敗血症の発症率の低下および転帰の改善と因果関係があることが示唆されている [4].
しかし、このメカニズムには、必ずしもトレードオフがないわけではない。Asp358Ala対立遺伝子は冠動脈疾患(CAD)を予防する一方で、 関節リウマチ, 、薬理学的IL-6R拮抗薬の副作用プロファイルと同様に、特定の感染症に対する感受性が高まる可能性がある [2]. これは、IL-6/IL-6R軸について、微妙なニュアンスを含んだ理解が必要であることを浮き彫りにしている。この軸において、当該変異体は、炎症による保護作用と宿主防御とのバランスをとる上で「自然実験」としての役割を果たしている。.
MIA3と線維性被膜の構造的完全性
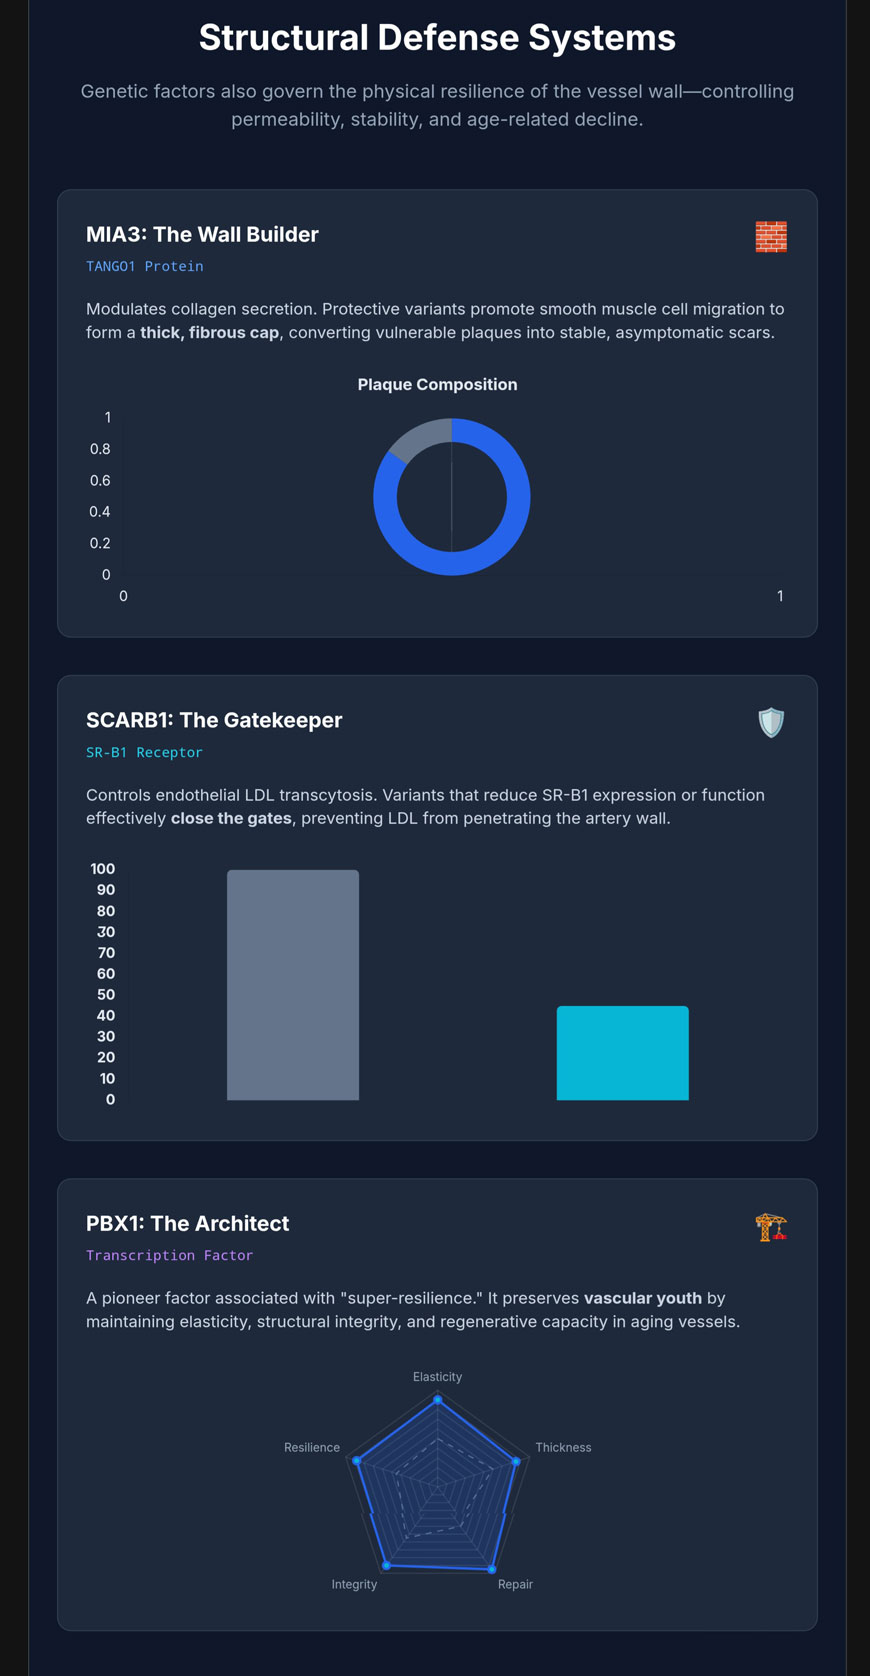
炎症の調節はプラークの形成を阻止する一方で、いったん形成された病変の安定性は、主に血管壁の構造的特徴によって左右される。タンパク質TANGO1(Transport and Golgi Organization 1)をコードするMIA3遺伝子は、 血管のレジリエンス …の分泌におけるその役割を通じて 細胞外マトリックス コンポーネント [6].
TANGO1の生化学と輸送体機能
TANGO1は、小胞体(ER)膜に存在する、進化的に保存されたタンパク質である。その主な機能は、標準的な COPII小胞, 、その直径は通常わずか60~80 nmである [6]. プロコラーゲンなど、長さが300 nmにも達する高分子は、特殊な輸送メカニズムを必要とします。 TANGO1は、小胞体出口部位(ERES)で環状の足場を形成し、小胞体-ゴルジ体中間区画(ERGIC)の膜を動員することで、一過性の拡大した分泌トンネルを作り出すことで、これを実現している [6].
このタンパク質は、管腔側のSH3様ドメインを利用して、三重らせん構造のコラーゲンモチーフやシャペロンHSP47に特異的に結合し、適切に折りたたまれたタンパク質のみが輸出のためにパッケージされることを保証している [6]. この機構は、間質性線維状コラーゲン(I、II、III型)、非線維状基底膜コラーゲン(IV型)、およびFACITコラーゲン(IX型)など、いくつかのコラーゲン種の輸送に不可欠である [6].
rs67180937 変異と VSMC の表現型の安定性
血管系におけるMIA3発現の遺伝的制御は、プラークが危険で破裂しやすい病変となるか、あるいは安定した「瘢痕」となるかを決定する上で極めて重要である。 ゲノムワイド関連解析により、1q41染色体上の特定の遺伝子座が同定されており、そこにある主要なSNPであるrs67180937のG対立遺伝子は、冠動脈疾患のリスク上昇と関連していることが明らかになっている [7]. メカニズムに関する研究により、このリスクアレルは、血管におけるMIA3の発現低下と相関していることが明らかになった。 平滑筋細胞 (VSMCs) および成長因子に対する増殖反応の著しい低下 [7].
弾力性のある血管表現型において、MIA3の高発現は、血管平滑筋細胞(VSMCs)が保護的かつ合成的な表現型へと移行することを促進する。これらの細胞は、 内膜 そして、厚みのあるものを形成するために必要な、コラーゲンを豊富に含む細胞外マトリックスを生成し、, 線維性被膜 ~を超えて 脂質コア プラークの [7].
表2. MIA3の発現によるプラークの特徴
| プラークの特性 | MIA3の発現が低い(リスク遺伝子型) | MIA3の高発現(保護的遺伝子型) |
| VSMCの増殖 | 減少;キャップ内の細胞数が少なくなった | 強化された、堅牢な細胞の存在感 |
| コラーゲンの沈着 | 損傷している;薄くてもろいマトリックス | 効率的;厚く、保護作用のある線維性被膜 |
| 臨床転帰 | 破裂しやすい「脆弱な」プラーク | 安定しており、無症状の「瘢痕化した」プラーク |
ヒトドナー由来の平滑筋細胞およびマウスモデルに関する研究から統合されたデータ [7].
MIA3の重要性は、ヒトの冠動脈病変における観察結果によってさらに裏付けられている。そこでは、薄壁部においてMIA3タンパク質の量が著しく減少していることが確認されており、 不安定プラーク 安定した病変の分厚い被膜と比較して [7].
SCARB1とリポタンパク質トランスサイトーシスのゲートキーピング
アテローム形成における初期の重要な段階の一つは、低密度リポタンパク質(LDL)が 内皮下腔. 現在では、これは「」として知られる、厳格に制御された細胞間輸送プロセスであると認識されている。 トランスサイトーシス, 、主にスカベンジャー受容体B型1(SR-B1), SCARB1遺伝子によってコードされる [8].
DOCK4/Rac1シグナル伝達軸
内皮細胞のSR-B1がLDL粒子を内取り込みし、輸送するメカニズムには、複雑なシグナル伝達カスケードが関与している。LDLがSR-B1の細胞外ドメインに結合すると、受容体の特定の細胞質ドメインがグアニンヌクレオチド交換因子(GEF)を動員する。 DOCK4(細胞質分裂促進因子4) [8]. この動員は、輸送に必要なアクチン細胞骨格の再編成を調整する小GTPアーゼRac1の活性化の前提条件である [8].
表3. LDLのトランスサイトーシスにおける分子成分の機能
| 分子成分 | LDLのトランスサイトーシスにおける機能 |
| SR-B1(SCARB1) | 管腔面におけるLDL捕捉の主要な受容体 |
| IQAYSESL モチーフ | アダプタータンパク質の細胞質ドッキング部位 |
| DOCK4 | グアニンヌクレオチド交換因子;SR-B1に結合する |
| Rac1 | アクチンを介した内取り込みを誘導するGTPase |
内皮細胞の物質輸送に関する研究から統合されたデータ [8].
SR-B1が内皮細胞特異的に欠損したマウスを用いた実験的証拠によると、動脈壁へのLDLの取り込みが60~80%減少することが示されており、その結果、アテローム性動脈硬化病変の面積が大幅に減少した [8]. これは、SCARB1の変異によってこのトランスサイトーシスの速度が低下すると、アテローム性動脈硬化症の発症を「侵入」段階で根本的に阻止できることを示唆している [8].
ヒトSCARB1の変異とリポタンパク質パラドックス
肝臓において、SR-B1は、の選択的取り込みにおける主要な受容体であり、 コレステリルエステル 出典: HDL. 。その結果、SCARB1遺伝子における稀な機能喪失型変異は、血中HDLコレステロール値の極端な上昇を引き起こす可能性があるが、こうした人々はしばしば冠動脈疾患のリスクが高まるという問題に直面する。その理由は、 コレステロール引き抜き転送 損なわれている [9,10].
表4. SCARB1の遺伝的変異の影響
| SCARB1の遺伝子多型 | への影響 脂質プロファイル | 血管リスクへの影響 |
| rs5888(TT遺伝子型) | HDL-C値の上昇と関連している | しばしば保護的である(特にアジア系以外の男性において) |
| rs144334493(欠失) | FOXA1の結合を弱め、SR-B1を低下させる | 冠動脈疾患(CHD)の発症リスクの増加 |
| S129L置換 | HDL-C値の高値とLp(a)値の高値が併存する場合 | Lp(a)のクリアランスが低下している;高リスク |
メタ分析およびコホート研究から統合されたデータ [10].
レジリエンスは、肝臓および内皮の両方における受容体の機能効率と関連している。肝臓におけるコレステロール逆輸送を損なうことなく、内皮のトランスサイトーシスを低下させる好ましい多型は、理想的な「超レジリエント」な遺伝子型である [8–10].
PBX1と血管の若々しさの維持
血管の老化 は、さまざまな心血管疾患の前駆状態である。最近の研究により、その近傍にある変異体が特定されており、 PBX1(プレB細胞白血病ホメオボックス1) この遺伝子は、高齢者の極めて良好な血管の健康状態と関連していることが示されている [11].
先駆的転写因子としてのPBX1
PBX1は、TALE(Three Aminoacid Loop Extension)クラスのホメオボックス転写因子に属し、「パイオニア因子」として機能する。つまり、閉鎖型クロマチンにアクセスし、特定の遺伝子を転写活性化の対象としてマーキングすることができる [12,13]. 心血管系において、PBX1は、大動脈のパターン形成および心臓流出路の発達を制御する転写経路を調整している [12,13]. 加齢に伴う成人の血管系において、PBX1の発現は、内皮細胞の損傷の修復および内皮前駆細胞集団の維持に不可欠である [11–13].
エピジェネティックな制御と血管のレジリエンス
PBX1変異体に見られる耐性は、血管壁の若々しいエピジェネティックな状態を維持する能力に起因していると考えられる。修復遺伝子の高発現を維持し、細胞の 酸化ストレス また、アポトーシスにおいて、PBX1は構造の崩壊を防ぐ [12,13].
天然の抗LDL抗体と体液性防御
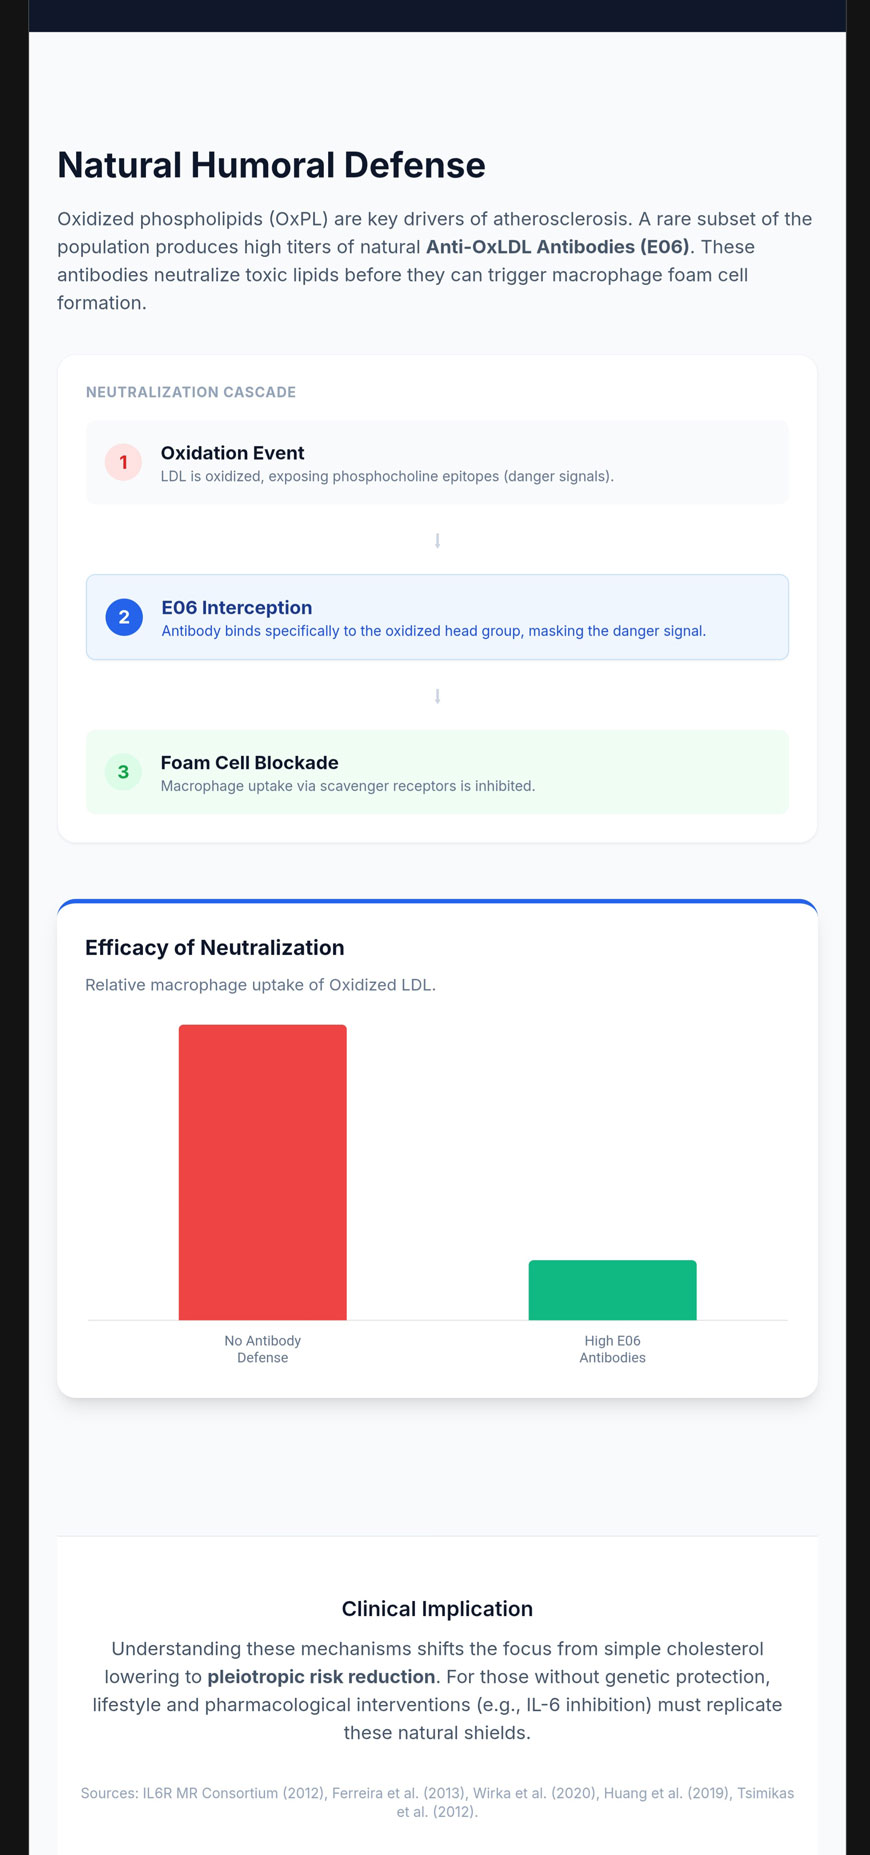
リポタンパク質が血管壁に入り込んで酸化(OxLDL)したとしても、炎症を引き起こす前に、E06のような天然に存在する自己抗体によって中和される可能性がある。 泡沫細胞 サイクル [15].
E06抗体とホスホコリンエピトープ
E06は、酸化リン脂質(OxPL)のホスホコリン(PC)頭部基に特異的に結合する天然のIgM自己抗体である [15]. sn-2の位置にある脂肪酸断片が酸化されると、PCの頭部基がネオエピトープ、すなわち「危険信号」として露呈する [15].
表5. E06による生物実体認識
| 生物学的実体 | E06による認定 | 作用機序 |
| 天然型LDL | いいえ | 正常な脂質代謝への干渉を防ぐ |
| 銅酸化LDL | はい | 表面にある断片化したOxPLに結合する |
| リポタンパク(a) | はい | Apo(a)に共有結合しているOxPLを不活性化させる |
| アポトーシスを起こした細胞 | はい | 損傷した膜上の露出したPCを検出する |
免疫学的アッセイおよび構造研究から得られたデータを統合した [15].
E06の保護メカニズムには2つの側面がある。1つは、マクロファージのスカベンジャー受容体によるこれらの粒子の取り込みを阻害し、泡沫細胞の形成を防ぐこと、もう1つは、TLR-2やTLR-4などの受容体を介した炎症誘発性シグナル伝達を中和することである [15].
治療の可能性と臨床的相関
E06様抗体の自然レベルが高いことは、強力な「自然免疫」をもたらす。このことから、炎症誘発性OxPLと競合してCD14およびTLR-2への結合を阻害するように設計された低分子レシノキソイドであるVB-201などの治療候補物質の開発が進められている [16]. 高濃度のOxPL-apoB(E06法に基づくELISAで測定)は、冠動脈、大腿動脈、および 頸動脈 病気 [14].
参考文献
- Interleukin-6 Receptor Mendelian Randomisation Analysis (IL6R MR) Consortium, Swerdlow DI, Holmes MV, et al. The interleukin-6 receptor as a target for prevention of coronary heart disease: a mendelian randomisation analysis. Lancet. 2012;379(9822):1214-1224. doi:10.1016/S0140-6736(12)60110-X
- Ferreira RC, Freitag DF, Cutler AJ, et al. Functional IL6R 358Ala allele impairs classical IL-6 receptor signaling and influences risk of diverse inflammatory diseases. PLoS Genet. 2013;9(4):e1003444. doi:10.1371/journal.pgen.1003444
- Levin MG, Klarin D, Georgakis MK, et al. A Missense Variant in the IL-6 Receptor and Protection From Peripheral Artery Disease. Circ Res. 2021;129(10):968-970. doi:10.1161/CIRCRESAHA.121.319589
- Hamilton FW, Thomas M, Arnold D, et al. Therapeutic potential of IL6R blockade for the treatment of sepsis and sepsis-related death: A Mendelian randomisation study. PLoS Med. 2023;20(1):e1004174. Published 2023 Jan 30. doi:10.1371/journal.pmed.1004174
- Aparicio-Siegmund S, Garbers Y, Flynn CM, et al. The IL-6-neutralizing sIL-6R-sgp130 buffer system is disturbed in patients with type 2 diabetes. Am J Physiol Endocrinol Metab. 2019;317(2):E411-E420. doi:10.1152/ajpendo.00166.2019
- Wilson DG, Phamluong K, Li L, et al. Global defects in collagen secretion in a Mia3/TANGO1 knockout mouse. J Cell Biol. 2011;193(5):935-951. doi:10.1083/jcb.201007162
- Aherrahrou R, Guo L, Nagraj VP, et al. Genetic Regulation of Atherosclerosis-Relevant Phenotypes in Human Vascular Smooth Muscle Cells. Circ Res. 2020;127(12):1552-1565. doi:10.1161/CIRCRESAHA.120.317415
- Huang L, Chambliss KL, Gao X, et al. SR-B1 drives endothelial cell LDL transcytosis via DOCK4 to promote atherosclerosis. Nature. 2019;569(7757):565-569. doi:10.1038/s41586-019-1140-4
- Hu S, Hu D, Wei H, et al. Functional Deletion/Insertion Promoter Variants in SCARB1 Associated With Increased Susceptibility to Lipid Profile Abnormalities and Coronary Heart Disease. Front Cardiovasc Med. 2022;8:800873. Published 2022 Jan 13. doi:10.3389/fcvm.2021.800873
- Ye LF, Zheng YR, Zhang QG, Yu JW, Wang LH. Meta-analysis of the association between SCARB1 polymorphism and fasting blood lipid levels. Oncotarget. 2017;8(46):81145-81153. Published 2017 Sep 14. doi:10.18632/oncotarget.20867
- Wen Y, Chen H, Wang Y, et al. Extracellular vesicle-derived TP53BP1, CD34, and PBX1 from human peripheral blood serve as potential biomarkers for the assessment and prediction of vascular aging. Hereditas. 2024;161(1):3. Published 2024 Jan 3. doi:10.1186/s41065-023-00306-8
- Crisafulli L, Brindisi M, Liturri MG, Sobacchi C, Ficara F. PBX1: a TALE of two seasons-key roles during development and in cancer. Front Cell Dev Biol. 2024;12:1372873. Published 2024 Feb 9. doi:10.3389/fcell.2024.1372873
- Chen H, Yu Z, Niu Y, Wang L, Xu K, Liu J. Research progress of PBX1 in developmental and regenerative medicine. Int J Med Sci. 2023;20(2):225-231. Published 2023 Jan 22. doi:10.7150/ijms.80262
- Taleb A, Witztum JL, Tsimikas S. Oxidized phospholipids on apoB-100-containing lipoproteins: a biomarker predicting cardiovascular disease and cardiovascular events. Biomark Med. 2011;5(5):673-694. doi:10.2217/bmm.11.60
- Hörkkö S, Bird DA, Miller E, et al. Monoclonal autoantibodies specific for oxidized phospholipids or oxidized phospholipid-protein adducts inhibit macrophage uptake of oxidized low-density lipoproteins. J Clin Invest. 1999;103(1):117-128. doi:10.1172/JCI4533
- Mendel I, Feige E, Yacov N, et al. VB-201, an oxidized phospholipid small molecule, inhibits CD14- and Toll-like receptor-2-dependent innate cell activation and constrains atherosclerosis. Clin Exp Immunol. 2014;175(1):126-137. doi:10.1111/cei.12212