La vía mTOR: un centro regulador clave en el envejecimiento y la esperanza de vida
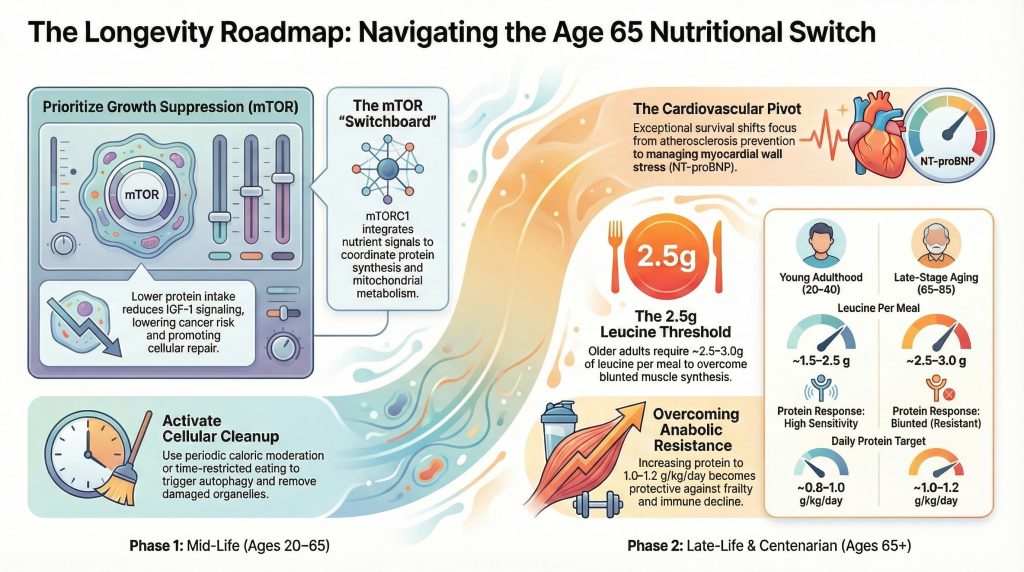
El mTOR funciona como una “central de control” metabólica conservada que integra el estado energético celular, los factores de crecimiento y la disponibilidad de aminoácidos para coordinar proteína síntesis, autofagia, el metabolismo mitocondrial y las respuestas al estrés [1,2]. En diversos organismos modelo —como la levadura, las moscas y los ratones—, el aumento de la señalización anabólica y la disminución de la eliminación autofágica asociados a la edad se relacionan repetidamente con el deterioro funcional y la reducción de la esperanza de vida, lo que sugiere que la actividad excesiva de mTORC1 contribuye a la biología del envejecimiento, en lugar de ser un correlato neutral [1–3].
Arquitectura molecular de los complejos mTOR
El mTOR existe en dos complejos funcional y estructuralmente distintos: el mTORC1 y el mTORC2. Si bien ambos comparten la subunidad catalítica del mTOR, sus estructuras de soporte determinan la especificidad del sustrato y los resultados biológicos. El mTORC1 es el complejo sensible a los nutrientes, definido por RAPTOR, y regula la traducción a través de dianas como S6K1 y 4E-BP1 [2,3]. El mTORC2 está definido por RICTOR y desempeña un papel fundamental en la organización del citoesqueleto y en la señalización de supervivencia mediada por Akt [2].
La hiperactivación de mTORC1 en la mediana edad y la vejez está relacionada, desde el punto de vista mecánico, con patologías asociadas a la edad, entre ellas las señales de crecimiento que favorecen el cáncer y la alteración de proteostasis, disfunción metabólica y enfermedad vascular [2–4]. Al promover la traducción continua y, al mismo tiempo, inhibir la autofagia (incluida mitofagia), la actividad excesiva de mTORC1 puede acelerar la acumulación de orgánulos dañados y proteínas mal plegadas, lo que “obstruye” funcionalmente los sistemas de mantenimiento celular y amplifica los fenotipos asociados a la senescencia [2,4].
Tabla 1. Componentes estructurales y funciones reguladoras de mTORC1
| Componente | Función | Papel en la señalización del envejecimiento |
| mTOR | Quinasa catalítica de Ser/Thr | Integrador principal de las señales de nutrientes y energía [2] |
| RAPTOR | Andamio para el reclutamiento de sustratos | Permite la fosforilación de S6K1 y 4E-BP1 [2,3] |
| mLST8 | Estabilizador del dominio de la quinasa | Contribuye a la integridad estructural y a la transmisión de señales [2] |
| DEPTOR | Inhibidor endógeno | Una expresión o actividad reducida puede desinhibir la señalización de mTOR [2] |
| PRAS40 | Inhibidor regulado por Akt | Enlaces insulina/La señalización de Akt para la activación de mTORC1 [2] |
| Tti1/Tel2 | Factores de montaje y estabilidad | Es necesario para la formación adecuada del complejo [2] |
Intervenciones dirigidas a mTOR. La inhibición farmacológica de mTORC1 con rapamicina y las intervenciones nutricionales, tales como restricción calórica (RC) se encuentran entre las estrategias más reproducibles para prolongar la vida y mantener la salud en diversos sistemas modelo [1–3]. En ratones, la rapamicina puede prolongar la vida útil incluso cuando se comienza a administrar en una etapa tardía de la vida, lo que respalda la idea de que mTOR sigue siendo modificable a lo largo del proceso de envejecimiento [1]. La restricción calórica (RC) reduce de manera constante la señalización del crecimiento, potencia la autofagia y preserva la eficiencia metabólica. Es más preciso describir la inhibición de mTOR y la RC como algunas de las intervenciones más consistentes para promover la longevidad en todos los taxones, en lugar de considerarlas la única intervención de este tipo, ya que múltiples manipulaciones (por ejemplo, cambios genéticos en la señalización de la insulina y el IGF) también prolongan la vida en organismos específicos [1–3].
El continuo de resistencia anabólica y la señalización de la leucina
A medida que las personas pasan de la edad adulta temprana a la etapa tardía del envejecimiento (que a menudo se define como ≥65 años), el músculo esquelético presenta progresivamente resistencia anabólica—una estimulación atenuada de síntesis de proteínas musculares (MPS) en respuesta a las proteínas de la dieta y al ejercicio de resistencia [5,6]. En personas más jóvenes, dosis moderadas de proteína de alta calidad pueden desencadenar una MPS robusta. En los adultos mayores, el “umbral anabólico” aumenta; una mayor disponibilidad de aminoácidos esenciales (EAA), en particular leucina—es necesario para activar el inicio de la traducción y lograr respuestas comparables del MPS [5–7]. Entre los mecanismos que contribuyen a ello se encuentran la alteración de la perfusión y el suministro de aminoácidos, así como la reducción de sensibilidad a la insulina, alteraciones en la señalización intracelular muscular y una inflamación crónica de bajo grado inflamación [5,6].
El mecanismo del sensor de leucina de Sestrin2
La leucina se distingue del resto de los aminoácidos de cadena ramificada porque actúa tanto como sustrato como señal para la activación de mTORC1. Sestrina2 actúa como un sensor de leucina citosólico que regula el mTORC1 a través de la Complejo GATOR2 y las GTPasas Rag [8,9]. En condiciones de baja concentración de leucina, Sestrin2 inhibe a GATOR2, lo que suprime la activación de Rag y limita el reclutamiento lisosomal de mTORC1 [8,9]. Cuando hay abundancia de leucina, esta se une a un bolsillo hidrofóbico conservado en la Sestrin2, lo que desencadena un cambio conformacional que interrumpe la interacción entre la Sestrin2 y la GATOR2 y permite la activación posterior de la mTORC1 [8,9]. Los estudios estructurales revelan los factores de especificidad que favorecen a la leucina frente a la valina y la isoleucina, entre ellos la complementariedad hidrofóbica y el reconocimiento coordinado de los grupos amino y carboxilo de la leucina [8,9].
Umbrales para superar la resistencia anabólica
En lo que respecta a la geronutrición práctica, la cuestión clave no es si la leucina envía señales al mTORC1, sino qué cantidad de leucina se necesita para superar la resistencia anabólica. Los análisis observacionales de puntos de ruptura en adultos mayores han identificado una meseta en la ingesta diaria de leucina asociada con la masa muscular y la fuerza de las extremidades inferiores en aproximadamente 7,6–8,0 g/día, lo que equivale a unos 110–115 mg/kg/día en cohortes típicas de adultos mayores [10]. Al mismo tiempo, tanto las recomendaciones sobre alimentación controlada como el consenso de los expertos suelen destacar que las personas mayores a menudo necesitan entre 2,5 y 3,0 g de leucina por comida (que por lo general se obtienen a partir de entre 25 y 40 g de proteína de alta calidad) para estimular de manera significativa la síntesis proteica muscular [6,7]. Los métodos de oxidación de aminoácidos indicadores sugieren además que las necesidades de leucina en los adultos mayores podrían superar las recomendaciones actuales, lo que respalda la idea de que la leucina puede convertirse en un factor limitante cuando la calidad de las proteínas o la ingesta total son bajas [11].
Tabla 2. Objetivos comparativos de proteínas y leucina a lo largo del espectro del envejecimiento
| Métrica | Edad adulta temprana (20–40) | Etapa tardía del envejecimiento (65–85) | Centenarios (100+) |
| Ingesta diaria recomendada (IDR) de proteínas (mínimo) | 0,8 g/kg/día | 0,8 g/kg/día (a menudo insuficiente) | 0,8 g/kg/día (a menudo insuficiente) |
| Objetivo práctico diario de consumo de proteínas | ~0,8–1,0 g/kg/día | ~1,0–1,2 g/kg/día (más si la persona es frágil) [6] | personalizada; a menudo ≥1,0 g/kg/día, si se tolera y es seguro [6] |
| Proteína por comida | ~20–30 g | ~25–40 g (distribuidos de manera uniforme) [6,7] | una densidad similar o mayor por comida si el apetito es limitado |
| Leucina por comida | ~1,5–2,5 g | ~2,5–3,0 g (rico en leucina) [6,7] | A menudo se requiere una alta densidad; predominan las restricciones de consumo |
| Respuesta anabólica | alta sensibilidad | atenuado (resistente) [5] | Es probable que haya una resistencia severa; la distribución es crítica |
| Estado de la autofagia | relativamente eficiente | a menudo alterado | heterogéneo; puede conservarse de manera selectiva en fenotipos resistentes |
La implicación clínica es que basarse estrictamente en la ingesta diaria recomendada (IDR) estándar de proteínas podría resultar insuficiente para preservar la movilidad y la independencia en muchas personas mayores, especialmente cuando disminuye el apetito y se reduce la ingesta energética [6]. La calidad de las proteínas, la densidad de leucina y su distribución entre las comidas cobran cada vez más importancia para mantener la reserva funcional.
Transiciones cardiovasculares: De Ateroesclerosis a Insuficiencia cardíaca y la demencia
En el contexto de la longevidad, el sistema cardiovascular sigue una trayectoria distintiva de adaptación y deterioro. Aterosclerosis subclínica es común en los años 70 y 80, pero entre las personas de edad muy avanzada, las causas predominantes de discapacidad y muerte suelen ser la insuficiencia cardíaca, la fragilidad y la demencia, lo que refleja la remodelación miocárdica acumulada, el endurecimiento arterial y disfunción microvascular [12–14]. Esto no significa que la enfermedad coronaria desaparezca; más bien, la manifestación clínica de envejecimiento vascular implica cada vez más fenotipos de insuficiencia cerebral y cardíaca.
Aterosclerosis subclínica y riesgo cognitivo
Coronario arteria calcificación (CAC) es un marcador sólido de la carga aterosclerótica acumulada. Varios estudios relacionan un mayor CAC con un deterioro de la estructura y la función cerebral, así como con un mayor riesgo de deterioro cognitivo y demencia en adultos mayores [12,13]. Estudios recientes también sugieren que la progresión del CAC podría presentar señales de riesgo incremental de demencia en cohortes prospectivas [14]. Es plausible que el mecanismo subyacente sea el envejecimiento vascular: disfunción endotelial, la disminución de la perfusión cerebral, la carga de microinfartos y la señalización proinflamatoria que acelera la vulnerabilidad a la neurodegeneración [15].
La rigidez vascular como factor determinante de la senescencia endotelial
Un concepto fundamental en el envejecimiento cardiovascular es que la rigidez vascular no es simplemente la consecuencia de placa acumulación, pero puede actuar como un factor mecánico-biológico que provoca la disfunción endotelial. El endurecimiento provocado por elastina La degradación, la remodelación del colágeno y la formación de enlaces cruzados aumentan el estrés endotelial y alteran mecanotransducción vías. La literatura experimental e integrativa sobre el envejecimiento vascular respalda la idea de que el aumento de la rigidez y la alteración del flujo promueven programas de señalización pro-senescente y la producción de mediadores inflamatorios, lo cual concuerda con los fenotipos del envejecimiento endotelial [16,17]. Esto contribuye a un ciclo de retroalimentación positiva en el que la rigidez amplifica la inflamación y la remodelación, y la inflamación acelera aún más matriz extracelular disfunción [16,17].
Tabla 3. Cardiovascular Biomarcadores y el contexto de riesgo en la longevidad excepcional
| Biomarcador / característica | Envejecimiento estándar (años 80) | Centenarios (100+) | Implicaciones para la supervivencia |
| NT-proBNP | a menudo se eleva con la edad | relativamente más bajo en los subgrupos que sobrevivieron de manera excepcional | Un nivel más bajo de NT-proBNP se asocia con una mejor supervivencia en las personas de mayor edad [18] |
| Carga del CAC | comúnmente presente | variable; una menor carga favorece el cerebro/resiliencia vascular | Un CAC más alto se asocia con peores resultados cerebrales y un mayor riesgo de demencia [12–14] |
| Rigidez vascular | a menudo se incrementaba | elasticidad conservada en fenotipos resilientes | reduce el estrés endotelial y favorece la salud microvascular [16,17] |
| Albúmina | disminuye con la edad o la inflamación | Un nivel más alto de albúmina indica una mejor reserva | Los niveles bajos de albúmina se asocian con una mayor mortalidad en todos los grupos de edad [18] |
Un marcador particularmente sólido y reproducible en los estudios sobre las personas de “edad muy avanzada” es el NT-proBNP. En cohortes longitudinales combinadas que incluyen a centenarios y (semi)supercentenarios, la relación entre el NT-proBNP y la mortalidad sigue siendo sólida incluso después de tomar en cuenta los factores tradicionales factores de riesgo y los indicadores de la reserva orgánica [18]. Estos hallazgos respaldan la idea de que la resistencia al estrés de la pared miocárdica y la fisiología de la insuficiencia cardíaca subclínica son componentes clave de una supervivencia excepcional.
El “cambio” nutricional: el umbral crítico alrededor de los 65 años
Una de las conclusiones traslacionales más importantes en la investigación sobre la longevidad es que la estrategia nutricional óptima no es estática a lo largo de la vida. Alrededor de los 65 años se produce un importante “cambio metabólico”, en el que la relación riesgo-beneficio asociada con la ingesta de proteínas y las señales de crecimiento cambia de manera significativa.
Los beneficios de una dieta baja en proteínas en la mediana edad
Durante la mediana edad, los patrones de menor ingesta de proteínas se han asociado con una menor señalización del IGF-1 y un menor riesgo de cáncer en algunas cohortes, lo cual concuerda con la idea de que la señalización crónica del crecimiento puede ser perjudicial cuando los mecanismos de reparación y vigilancia comienzan a deteriorarse [19]. En esta etapa, el objetivo nutricional suele centrarse en la sensibilidad a la insulina, salud metabólica, y la activación periódica de vías de mantenimiento como la autofagia —lo cual se logra mediante prácticas como una ingesta moderada de proteínas, la alimentación con restricción de horario o la moderación calórica [2,19].
Las necesidades elevadas de proteínas en la tercera edad
Después de los ~65 años, el perfil de riesgo cambia radicalmente. Una ingesta baja de proteínas se asocia estrechamente con resultados adversos provocados por sarcopenia, fragilidad, caídas y disminución de la competencia inmunológica [6,19]. Un mayor consumo de proteínas favorece el mantenimiento de la masa muscular, la reserva funcional y la capacidad de respuesta inmunológica, sistemas que se vuelven cada vez más vulnerables con la edad [6]. En las personas mayores, la distribución de proteínas y la densidad de leucina cobran especial importancia a medida que disminuye el apetito y se reducen las necesidades energéticas, lo que hace que la densidad nutricional (y no solo las calorías) sea un factor decisivo.
En consonancia con esto, un estudio prospectivo realizado en adultos japoneses de entre 85 y 89 años sin discapacidad inicial (Proyecto Kawasaki sobre el Envejecimiento y el Bienestar) reportó menores mortalidad por todas las causas riesgo en los grupos con mayor y menor ingesta de proteínas, tras ajustar por covariables clínicas, lo que respalda la idea de que una mayor ingesta de proteínas puede tener un efecto protector en la vejez avanzada cuando se mantiene la independencia funcional [20]. Es importante destacar que la fuente de proteínas y el contexto alimentario siguen siendo relevantes; la evidencia de cohortes más amplias sugiere que sustituir algunas fuentes de proteínas de origen animal —en particular, la carne roja y la procesada— por proteínas vegetales podría mejorar los resultados a largo plazo en la población general [21].
Marcadores proteómicos y genéticos de la resiliencia de los centenarios
Los centenarios no “escapan” al envejecimiento; a menudo retrasan la aparición de enfermedades y reducen la morbilidad. Los perfiles a nivel sistémico respaldan cada vez más la existencia de constelaciones de biomarcadores protectores en cohortes de longevidad extrema. Los estudios a gran escala sobre biomarcadores en las personas de edad muy avanzada identifican perfiles compatibles con una reserva orgánica preservada y una menor incidencia de insuficiencia cardíaca entre quienes alcanzan las edades más avanzadas, destacando el NT-proBNP como un marcador particularmente informativo [18]. Al mismo tiempo, los patrones proteómicos en los grupos de personas con una longevidad excepcional suelen reflejar cambios en el nivel de inflamación y en la eficiencia metabólica, más que una regulación al alza uniforme de las proteínas clásicas de “defensa”.
La “paradoja” redox y antioxidante”
Un error interpretativo recurrente consiste en equiparar una menor abundancia de ciertas proteínas asociadas a los antioxidantes con defensas más débiles. En los fenotipos de envejecimiento resiliente, una menor expresión de algunas proteínas de respuesta al estrés puede reflejar una menor carga oxidativa en las etapas iniciales, impulsada por mitocondrias más eficientes y una señalización inflamatoria crónica reducida. En otras palabras, la homeostasis redox puede lograrse mediante una menor producción de especies reactivas, en lugar de una producción máxima constante antioxidante implementación. Este enfoque concuerda con la literatura mecanicista y epidemiológica que relaciona estrés oxidativo vías que conducen a los resultados cognitivos y heterogeneidad en las trayectorias de envejecimiento cerebral [13].
Variantes genéticas y retraso en la aparición de la enfermedad
Las contribuciones genéticas a la longevidad excepcional parecen actuar principalmente retrasando la aparición de enfermedades, más que previniendo el envejecimiento en sí mismo. Entre los loci que se han relacionado repetidamente con las poblaciones longevas se encuentran APOE (en particular, el enriquecimiento de APOE2), las variantes de FOXO3A asociadas con la respuesta al estrés y la regulación de la señalización de la insulina, y las vías relacionadas con los lípidos, incluidos los rasgos asociados a la CETP [22]. Es plausible que estas variantes contribuyan a la resiliencia vascular y metabólica, reduciendo la probabilidad de que las alteraciones relacionadas con la edad superen los umbrales clínicos.
Tabla 4. Mecanismos moleculares clave y su influencia en la longevidad
| Mecanismo | Impacto fisiológico | Papel en la longevidad |
| Mitofagia | control selectivo de la calidad mitocondrial | limita las especies reactivas de oxígeno (ROS) procedentes de mitocondrias disfuncionales; favorece la resiliencia energética [23] |
| Proteostasis | síntesis equilibrada, plegamiento y degradación | reduce la acumulación de proteínas agregadas y la disfunción de los orgánulos [2,4] |
| Flexibilidad metabólica | cambio entre fuentes de combustible | favorece unos niveles bajos de insulina basal y una respuesta adaptativa al estrés [2,3] |
| Estabilidad epigenética | mantenimiento de la regulación génica | podría reducir la activación inadecuada de los programas de crecimiento y senescencia [3] |
| Complacencia vascular | elasticidad arterial conservada | reduce la tensión en las paredes y favorece la función microvascular del cerebro y el corazón [15–17] |
Geronutrición de precisión y geroterapéuticos emergentes
A medida que la gerociencia va madurando, la integración de estrategias nutricionales con intervenciones farmacológicas dirigidas a los rasgos característicos del envejecimiento se ha convertido en una de las principales fronteras de investigación.
Intervenciones farmacológicas dirigidas (basadas en la evidencia)
- Rapamicina/rapalógos: Entre las intervenciones más eficaces para prolongar la vida en modelos animales [1–3]. En los seres humanos, los primeros estudios clínicos sugieren que la inhibición de mTOR puede mejorar ciertos parámetros inmunitarios en los adultos mayores, lo que respalda su relevancia en la gerociencia, aunque aún no se ha demostrado que prolongue la vida [24].
- agonistas del receptor de GLP-1: Demostrar beneficios significativos en los resultados cardiometabólicos y cardiovasculares en ensayos aleatorios en diabetes, con una importancia secundaria para la biología del envejecimiento debido a la reducción de la adiposidad, la inflamación y el riesgo cardiometabólico [25].
- inhibidores de SGLT2: En ensayos aleatorios de resultados, se observan reducciones sustanciales en las hospitalizaciones por insuficiencia cardíaca y en la mortalidad cardiovascular, lo que sugiere la preservación de la resiliencia cardiovascular; existen vínculos mecánicos plausibles con la energía mitocondrial y la inflamación, pero las afirmaciones sobre el alargamiento de los telómeros o la geroprotección definitiva deben considerarse como hipótesis en fase de investigación [26].
- Urolitina A: A microbiota intestinal–un postbiótico derivado que activa las vías de la mitofagia; la evidencia de ensayos aleatorios indica mejoras en el rendimiento muscular y en los perfiles de biomarcadores mitocondriales en adultos de mediana edad, lo que respalda un papel plausible en el control de calidad mitocondrial [27].
El papel de la restricción calórica en la salud cerebral
El cerebro presenta vulnerabilidades específicas con la edad, entre ellas la disminución de la integridad de la materia blanca y la mielina, cambios inflamatorios en la microglía y una menor resiliencia metabólica. Los estudios de mapeo de alta resolución en modelos de envejecimiento indican que la restricción calórica puede preservar programas genéticos específicos de cada región relacionados con el mantenimiento de la mielina, reducir la expresión de las vías inflamatorias asociadas al envejecimiento y favorecer estados celulares relacionados con la neuroprotección [28]. Si bien no es sencillo aplicar a los seres humanos la restricción calórica que se ha llevado a cabo durante décadas, estos hallazgos respaldan la idea de que una moderación metabólica sostenida puede preservar la biología neurovascular y de la materia blanca relevante para la resiliencia cognitiva.
Perspectivas regionales e impacto de las políticas en la longevidad
Los resultados en materia de longevidad no dependen únicamente de factores biológicos; los entornos alimentarios y las estructuras de políticas influyen en la exposición a alimentos ultraprocesados, la calidad de la alimentación y los conocimientos sobre nutrición. Por lo tanto, las herramientas de salud pública que reducen las barreras en la toma de decisiones podrían tener efectos desproporcionadamente grandes sobre el envejecimiento cardiometabólico a nivel poblacional.
Etiquetado en la parte frontal del empaque y conocimientos sobre nutrición
La evidencia de estudios aleatorios indica que los sistemas de etiquetado en la parte frontal de los empaques —incluidos los diseños de etiquetas similares al concepto de “Información nutricional” propuesto por la FDA— pueden mejorar la comprensión de los consumidores y fomentar patrones de selección más saludables en tareas de compra simuladas [29,30]. Los efectos pueden variar según el nivel de conocimiento nutricional y los factores sociodemográficos; las etiquetas graduadas, tipo espectro, podrían reducir las disparidades en la comprensión al ofrecer señales comparativas más claras entre los distintos productos [29,30]. Estos hallazgos son relevantes para la longevidad, ya que las mejoras pequeñas pero sostenidas en la calidad de la alimentación pueden acumularse a lo largo de décadas.
La vulnerabilidad al estrés oxidativo como objetivo de medicina de precisión
La vulnerabilidad individual al estrés oxidativo y a las señales inflamatorias varía. Los estudios genéticos y de inferencia causal respaldan la existencia de una relación entre las vías del estrés oxidativo y los resultados cognitivos, lo que sugiere que la biología redox podría contribuir a la heterogeneidad en las trayectorias de envejecimiento cerebral [13]. Esto refuerza la perspectiva de la nutrición de precisión: algunas personas pueden beneficiarse de manera desproporcionada de la optimización temprana del riesgo cardiometabólico, la calidad de la alimentación y las intervenciones que reducen la inflamación crónica y la carga oxidativa.
Conclusión: Una guía para toda la vida hacia la longevidad nutricional
Para alcanzar una longevidad excepcional se requiere una transición estratégica en las prioridades nutricionales, alineada con las realidades biológicas del envejecimiento. La supervivencia hasta la undécima década parece estar respaldada por el mantenimiento del control de calidad mitocondrial, la preservación de la distensibilidad vascular y una nutrición adecuada, suficiente para superar la resistencia anabólica a pesar de la disminución del apetito y de la reserva fisiológica.
Protocolo nutricional recomendado para las transiciones hacia la longevidad
- Edad temprana a media (20–65): Haga hincapié en la salud metabólica y en las reducciones periódicas de las señales de crecimiento (por ejemplo, la moderación calórica o la alimentación con restricción horaria). Mantenga un consumo moderado de proteínas y dé prioridad a los patrones alimentarios que favorezcan la salud cardiometabólica y reduzcan la inflamación crónica.
- Transición en la tercera edad (65–80): Aumente la ingesta de proteínas hasta alcanzar aproximadamente 1,0–1,2 g/kg/día, según la tolerancia y según sea clínicamente adecuado, prestando atención a la distribución por comida. Priorice las porciones de proteínas ricas en leucina, con el objetivo de alcanzar aproximadamente 2,5–3,0 g de leucina por comida, para favorecer la señalización de la síntesis de proteínas musculares (MPS) en casos de resistencia anabólica [6,7].
- Vejez extrema (80–100+): Céntrese en la densidad nutricional y en una distribución viable entre las comidas; el apetito y las limitaciones para masticar y tragar son factores determinantes. Controle los marcadores de estrés cardiovascular (p. ej., NT-proBNP) y mantenga la salud vascular mediante presión arterial control, actividad física siempre que sea posible y hábitos alimenticios que favorezcan función endotelial.
Cómo reducir el riesgo de enfermedades cardiovasculares y demencia
Mantener la salud vascular durante la mediana edad sigue siendo fundamental para reducir el riesgo de insuficiencia cardíaca y la vulnerabilidad cognitiva en la vejez. La carga de calcio en la pared coronaria (CAC) y rigidez arterial reflejar exposición acumulativa y el riesgo, y sus consecuencias a largo plazo se relacionan cada vez más con el envejecimiento cerebral a medida que aumenta la esperanza de vida [12–17]. Mantener un entorno mecánico fisiológico —la elasticidad arterial y la integridad microvascular— podría reducir la disfunción endotelial y la amplificación de la inflamación, lo que favorece tanto la longevidad cardíaca como la cognitiva.
En resumen, la transición hacia la longevidad no consiste en realizar “más” de las mismas intervenciones para siempre; se trata de un cambio estratégico que pasa de la supresión del crecimiento y la priorización del mantenimiento en la mediana edad a la preservación estructural y el apoyo anabólico en la vejez. Al comprender la detección de nutrientes (en particular, los umbrales de leucina y la dinámica de mTOR) y la mecanobiología del envejecimiento vascular, las personas y los médicos pueden sortear mejor los obstáculos biológicos que separan el envejecimiento geriátrico estándar de las trayectorias resilientes de los centenarios.
Referencias
- Johnson SC, Rabinovitch PS, Kaeberlein M. mTOR is a key modulator of ageing and age-related disease. Nature. 2013;493(7432):338-345. doi:10.1038/nature11861
- Kennedy BK, Lamming DW. The Mechanistic Target of Rapamycin: The Grand ConducTOR of Metabolism and Aging. Cell Metab. 2016;23(6):990-1003. doi:10.1016/j.cmet.2016.05.009
- Papadopoli D, Boulay K, Kazak L, et al. mTOR as a central regulator of lifespan and aging. F1000Res. 2019;8:F1000 Faculty Rev-998. Published 2019 Jul 2. doi:10.12688/f1000research.17196.1
- Zarzycka W, Kobak KA, King CJ, Peelor FF 3rd, Miller BF, Chiao YA. Hyperactive mTORC1/4EBP1 signaling dysregulates proteostasis and accelerates cardiac aging. Geroscience. 2025;47(2):1823-1836. doi:10.1007/s11357-024-01368-w
- Breen L, Phillips SM. Skeletal muscle protein metabolism in the elderly: Interventions to counteract the ‘anabolic resistance’ of ageing. Nutr Metab (Lond). 2011;8:68. Published 2011 Oct 5. doi:10.1186/1743-7075-8-68
- Bauer J, Biolo G, Cederholm T, et al. Evidence-based recommendations for optimal dietary protein intake in older people: a position paper from the PROT-AGE Study Group. J Am Med Dir Assoc. 2013;14(8):542-559. doi:10.1016/j.jamda.2013.05.021
- Moore DR, Churchward-Venne TA, Witard O, et al. Protein ingestion to stimulate myofibrillar protein synthesis requires greater relative protein intakes in healthy older versus younger men. J Gerontol A Biol Sci Med Sci. 2015;70(1):57-62. doi:10.1093/gerona/glu103
- Wolfson RL, Chantranupong L, Saxton RA, et al. Sestrin2 is a leucine sensor for the mTORC1 pathway. Science. 2016;351(6268):43-48. doi:10.1126/science.aab2674
- Saxton RA, Knockenhauer KE, Wolfson RL, et al. Structural basis for leucine sensing by the Sestrin2-mTORC1 pathway. Science. 2016;351(6268):53-58. doi:10.1126/science.aad2087
- Lixandrão ME, Longobardi I, Leitão AE, et al. Daily Leucine Intake Is Positively Associated with Lower Limb Skeletal Muscle Mass and Strength in the Elderly. Nutrients. 2021;13(10):3536. Published 2021 Oct 9. doi:10.3390/nu13103536
- Szwiega S, Pencharz PB, Rafii M, et al. Dietary leucine requirement of older men and women is higher than current recommendations. Am J Clin Nutr. 2021;113(2):410-419. doi:10.1093/ajcn/nqaa323
- Bos D, Vernooij MW, Elias-Smale SE, et al. Atherosclerotic calcification relates to cognitive function and to brain changes on magnetic resonance imaging. Alzheimers Dement. 2012;8(5 Suppl):S104-S111. doi:10.1016/j.jalz.2012.01.008
- Fan Z, Yang C, Qu X, et al. Association of Oxidative Stress on Cognitive Function: A Bidirectional Mendelian Randomisation Study. Mol Neurobiol. 2024;61(12):10551-10560. doi:10.1007/s12035-024-04231-3
- Huang GS, Hansen SL, McClelland RL, et al. Relation of Progression of Coronary Artery Calcium to Dementia (from the Multi-Ethnic Study of Atherosclerosis). Am J Cardiol. 2022;171:69-74. doi:10.1016/j.amjcard.2022.01.061
- Iadecola C. The pathobiology of vascular dementia. Neuron. 2013;80(4):844-866. doi:10.1016/j.neuron.2013.10.008
- Li Q, Qian Z, Huang Y, et al. Mechanisms of endothelial senescence and vascular aging. Biogerontology. 2025;26(4):128. Published 2025 Jun 25. doi:10.1007/s10522-025-10279-y
- Lai A, Zhou Y, Chheang C, et al. Decoding vascular aging: Substrate stiffness and shear stress orchestrate endothelial inflammation and remodelling via mechanosensitive pathways. Biomaterials. 2026;329:123932. doi:10.1016/j.biomaterials.2025.123932
- Hirata T, Arai Y, Yuasa S, et al. Associations of cardiovascular biomarkers and plasma albumin with exceptional survival to the highest ages. Nat Commun. 2020;11(1):3820. Published 2020 Jul 30. doi:10.1038/s41467-020-17636-0
- Levine ME, Suarez JA, Brandhorst S, et al. Low protein intake is associated with a major reduction in IGF-1, cancer, and overall mortality in the 65 and younger but not older population. Cell Metab. 2014;19(3):407-417. doi:10.1016/j.cmet.2014.02.006
- Kurata H, Meguro S, Abe Y, et al. Dietary protein intake and all-cause mortality: results from The Kawasaki Aging and Wellbeing Project. BMC Geriatr. 2023;23(1):479. Published 2023 Aug 9. doi:10.1186/s12877-023-04173-w
- Budhathoki S, Sawada N, Iwasaki M, et al. Association of Animal and Plant Protein Intake With All-Cause and Cause-Specific Mortality in a Japanese Cohort. JAMA Intern Med. 2019;179(11):1509-1518. doi:10.1001/jamainternmed.2019.2806
- Brooks-Wilson AR. Genetics of healthy aging and longevity. Hum Genet. 2013;132(12):1323-1338. doi:10.1007/s00439-013-1342-z
- Shirakabe A, Ikeda Y, Sciarretta S, Zablocki DK, Sadoshima J. Aging and Autophagy in the Heart. Circ Res. 2016;118(10):1563-1576. doi:10.1161/CIRCRESAHA.116.307474
- Mannick JB, Del Giudice G, Lattanzi M, et al. mTOR inhibition improves immune function in the elderly. Sci Transl Med. 2014;6(268):268ra179. doi:10.1126/scitranslmed.3009892
- Marso SP, Daniels GH, Brown-Frandsen K, et al. Liraglutide and Cardiovascular Outcomes in Type 2 Diabetes. N Engl J Med. 2016;375(4):311-322. doi:10.1056/NEJMoa1603827
- Zinman B, Wanner C, Lachin JM, et al. Empagliflozin, Cardiovascular Outcomes, and Mortality in Type 2 Diabetes. N Engl J Med. 2015;373(22):2117-2128. doi:10.1056/NEJMoa1504720
- Singh A, D’Amico D, Andreux PA, et al. Urolithin A improves muscle strength, exercise performance, and biomarkers of mitochondrial health in a randomized trial in middle-aged adults. Cell Rep Med. 2022;3(5):100633. doi:10.1016/j.xcrm.2022.100633
- Zhang Z, Epstein A, Schaefer C, et al. Spatiotemporal profiling reveals the impact of caloric restriction in the aging mammalian brain. Cell Rep. 2025;44(9):116165. doi:10.1016/j.celrep.2025.116165
- Grummon AH, O’Sullivan K, Petimar J, et al. Nutrition Info and Other Front-of-Package Labels and Simulated Food and Beverage Purchases: A Randomized Clinical Trial. JAMA Netw Open. 2025;8(10):e2537389. Published 2025 Oct 1. doi:10.1001/jamanetworkopen.2025.37389
- Huang Y, O’Sullivan K, Block JP, Petimar J, Lee CJY, Grummon AH. Impact of the Food and Drug Administration’s Proposed Front-of-Package Label and Alternative Designs on Consumer Understanding: A Randomized Experiment. Am J Prev Med. Published online December 13, 2025. doi:10.1016/j.amepre.2025.108222

