La voie mTOR : un carrefour régulateur clé du vieillissement et de la longévité
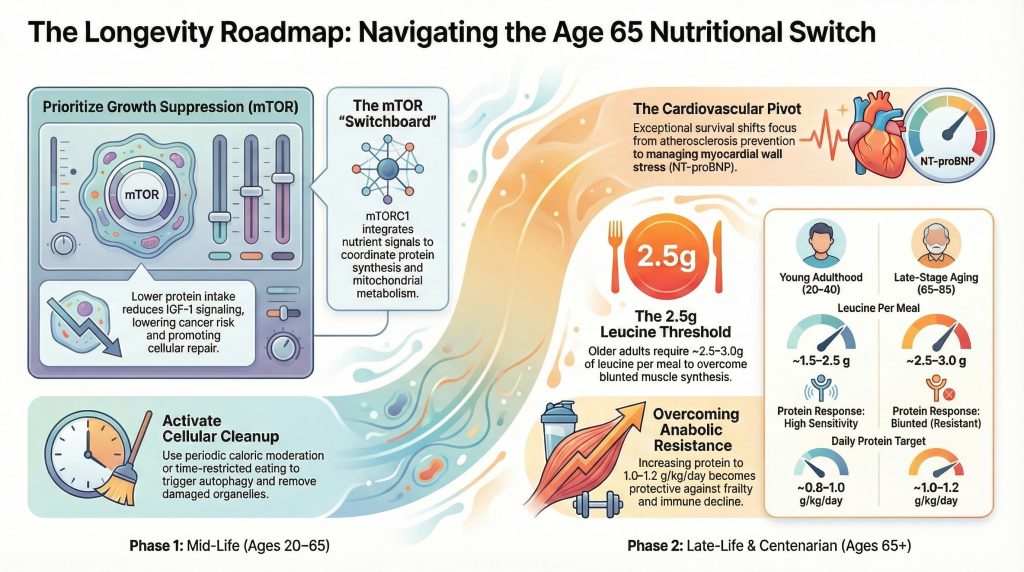
mTOR fonctionne comme un “ standard ” métabolique conservé qui intègre l'état énergétique cellulaire, les facteurs de croissance et la disponibilité en acides aminés pour coordonner protéine synthèse, autophagie, le métabolisme mitochondrial et les réponses au stress [1,2Chez tous les organismes modèles — notamment la levure, la drosophile et la souris —, les augmentations de la signalisation anabolique et la réduction de l'élimination autophagique associées à l'âge sont systématiquement liées au déclin fonctionnel et à la réduction de la durée de vie, ce qui implique qu'une activité excessive de mTORC1 contribue à la biologie du vieillissement plutôt qu'à constituer un simple corrélat neutre [1–3].
Architecture moléculaire des complexes mTOR
mTOR existe sous la forme de deux complexes fonctionnellement et structurellement distincts : mTORC1 et mTORC2. Bien que tous deux partagent la sous-unité catalytique mTOR, leurs échafaudages déterminent la spécificité des substrats et les réponses biologiques. mTORC1 est le complexe sensible aux nutriments, défini par RAPTOR, et régule la traduction par l'intermédiaire de cibles telles que S6K1 et 4E-BP1 [2,3]. Le complexe mTORC2 est défini par RICTOR et joue un rôle majeur dans l'organisation du cytosquelette et la signalisation de survie médiée par Akt [2].
L'hyperactivation de mTORC1 au milieu et à la fin de la vie est mécanistiquement liée à la pathologie associée à l'âge, y compris la signalisation de croissance favorisant le cancer, altérée protéostase, le dysfonctionnement métabolique et la maladie vasculaire [2–4]. En favorisant la traduction continue tout en supprimant l'autophagie (y compris mitophagie), une activité excessive de mTORC1 peut accélérer l'accumulation d'organites endommagés et de protéines mal repliées — “ engorgeant ” fonctionnellement les systèmes de maintenance cellulaire et amplifiant les phénotypes associés à la sénescence [2,4].
Tableau 1. Composants structurels et fonctions régulatrices de mTORC1
| Composant | Fonction | Rôle dans la signalisation du vieillissement |
| mTOR | Kinase à Sér/Thr catalytique | Intégrateur maître des signaux de nutriments et d'énergie2] |
| Raptor | Échafaudage de recrutement de substrats | Active la phosphorylation de S6K1 et 4E-BP12,3] |
| mLST8 | Stabilisateur du domaine kinase | Soutient l'intégrité structurelle et la signalisation cellulaire2] |
| DEPTOR | Inhibiteur endogène | Une expression/activité réduite peut désinhiber la signalisation de mTOR2] |
| PRAS40 | Inhibiteur régulé par Akt | Liens insulineSignalisation d'Akt vers l'activation de mTORC12] |
| Tti1/Tel2 | Facteurs d'assemblage / de stabilité | Requis pour une formation correcte du complexe2] |
Interventions ciblant mTOR. L'inhibition pharmacologique de mTORC1 par rapamycine et des interventions nutritionnelles telles que restriction calorique figurent parmi les stratégies les plus reproductibles d'extension de la durée de vie et de la santé à travers les systèmes modèles1–3Chez la souris, la rapamycine peut prolonger la durée de vie même lorsqu'elle est administrée tardivement, ce qui étaye l'idée que mTOR reste modifiable tout au long de la trajectoire du vieillissement1La restriction calorique réduit systématiquement la signalisation de croissance, stimule l'autophagie et préserve l'efficacité métabolique. Il est plus exact de décrire l'inhibition de mTOR et la restriction calorique comme faisant partie des interventions favorisant la longévité les plus constantes à travers les taxons, plutôt que comme la seule intervention de ce type, dans la mesure où de multiples manipulations (par exemple, des modifications génétiques de la signalisation de l'insuline et de l'IGF) prolongent également la durée de vie chez certains organismes spécifiques1–3].
Le continuum de la résistance anabolisante et la signalisation de la leucine
Alors que les humains passent du jeune âge adulte à un stade avancé du vieillissement (souvent défini comme ≥ 65 ans), le muscle squelettique présente progressivement résistance anabolique—une stimulation émoussée de synthèse des protéines musculaires (SPM) en réponse aux protéines alimentaires et à l'exercice de résistance5,6]. Chez les sujets plus jeunes, des doses modérées de protéines de haute qualité peuvent déclencher une robuste MPS. Chez les adultes plus âgés, le “ seuil anabolisant ” s'élève ; une plus grande disponibilité en acides aminés essentiels (AAE) — en particulier leucine—est nécessaire pour activer l'initiation de la traduction et obtenir des réponses MPS comparables [5–7]. Les mécanismes contributifs comprennent une perfusion altérée et un apport en acides aminés réduit, réduits sensibilité à l'insuline, une signalisation intracellulaire musculaire altérée et une inflammation chronique de bas grade inflammation [5,6].
Le mécanisme du capteur Sestrine2-Leucine
La leucine se distingue parmi les acides aminés à chaîne ramifiée car elle agit à la fois comme substrat et comme signal pour l'activation de mTORC1. Sestrine2 fonctionne comme un capteur de leucine cytosolique qui régule mTORC1 par l'intermédiaire de la complexe GATOR2 et les GTPases Rag8,9Dans des conditions de faible teneur en leucine, la Sestrine2 retient GATOR2, supprimant l'activation de Rag et limitant le recrutement lysosomal de mTORC18,9Lorsque la leucine est abondante, elle se lie à une poche hydrophobe conservée sur la Sestrine2, ce déclenchant un changement conformationnel qui perturbe l'interaction entre la Sestrine2 et GATOR2 et permet l'activation en aval de mTORC18,9]. Le travail structurel démontre des déterminants de spécificité qui favorisent la leucine par rapport à la valine/isoleucine, incluant une complémentarité hydrophobe et une reconnaissance coordonnée des groupes amino et carboxyle de la leucine [8,9].
Seuils pour contourner la résistance anabolique
En géronutrition pratique, la question clé n'est pas de savoir si la leucine active mTORC1, mais quelle quantité d'exposition à la leucine est nécessaire pour surmonter la résistance anabolique. Des analyses de seuil observationnelles chez les personnes âgées ont identifié un plateau pour l'apport quotidien en leucine associé à la masse et à la force musculaire des membres inférieurs à environ 7,6 à 8,0 g/jour, ce qui équivaut à environ 110 à 115 mg/kg/jour dans les cohortes de personnes âgées typiques [10]. En parallèle, l'alimentation contrôlée et les recommandations fondées sur un consensus d'experts soulignent généralement que les adultes plus âgés ont souvent besoin d'environ 2,5 à 3,0 g de leucine par repas (fournie habituellement par environ 25 à 40 g de protéines de haute qualité) pour stimuler vigoureusement la MPS [6,7Les méthodes d'oxydation des acides aminés indicateurs suggèrent en outre que les besoins en leucine chez les personnes âgées pourraient dépasser les recommandations actuelles, ce qui étaye l'idée que la leucine peut devenir un facteur limitant lorsque la qualité des protéines ou l'apport total est faible11].
Tableau 2. Objectifs comparatifs en matière de protéines et de leucine tout au long du spectre du vieillissement
| Métrique | Jeune âge adulte (20-40 ans) | Vieillissement avancé (65–85 ans) | Centenaires (100+) |
| Apports journaliers recommandés en protéines (minimum) | 0,8 g/kg/jour | 0,8 g/kg/jour (souvent insuffisant) | 0,8 g/kg/jour (souvent insuffisant) |
| Objectif protéique quotidien pratique | ~0,8–1,0 g/kg/jour | ~1,0–1,2 g/kg/jour (plus si fragile) [6] | individualisé ; souvent ≥ 1,0 g/kg/jour si toléré et sûr [6] |
| Protéines par repas | ~20–30 g | ~25–40 g (répartis uniformément) [6,7] | densité similaire ou supérieure par repas si l'appétit est limité |
| Leucine par repas | ~1,5–2,5 g | ~2,5–3,0 g (riche en leucine) [6,7] | haute densité souvent requise ; les contraintes d'appétit dominent |
| Réponse anabolique | haute sensibilité | émoussé (résistant) [5] | forte résistance probable ; distribution critique |
| Statut de l'autophagie | relativement efficace | souvent altéré | hétérogène ; peut être sélectivement préservé dans des phénotypes résilients |
L'implication clinique est qu'une dépendance stricte à l'égard des apports nutritionnels conseillés (ANC) standard en protéines peut s'avérer insuffisante pour préserver la mobilité et l'autonomie chez de nombreux adultes âgés, en particulier lorsque l'appétit diminue et que les apports énergétiques chutent [6]. La qualité des protéines, la densité en leucine et la répartition au fil des repas deviennent de plus en plus cruciales pour maintenir la réserve fonctionnelle.
Transitions cardiovasculaires : De Athérosclérose à Insuffisance cardiaque et la démence
Dans le contexte de la longévité, le système cardiovasculaire suit une trajectoire distincte d'adaptation et de déclin. Athérosclérose subclinique est courant dans les années 70 et 80, mais chez les plus âgés, les causes dominantes d'invalidité et de décès se déplacent souvent vers l'insuffisance cardiaque, la fragilité et la démence, reflétant le remodelage myocardique cumulatif, la rigidité artérielle et dysfonctionnement microvasculaire [12–14]. Cela n'implique pas que la coronaropathie disparaît ; c'est plutôt l'expression clinique de vieillissement vasculaire implique de plus en plus des phénotypes d'insuffisance cérébrale et cardiaque.
Athérosclérose subclinique et risque cognitif
Coronarien artère calcification (CAC) est un marqueur robuste de la charge athérosclérotique cumulative. De nombreuses études associent un CAC plus élevé à une altération de la structure et de la fonction cérébrales, ainsi qu'à un risque accru de dégradation cognitive et de démence chez les personnes âgées [12,13Des travaux récents suggèrent également que la progression des CAC pourrait porter des signaux de risque de démence incrémentiels dans cohortes prospectives [14Le pont mécanistique est vraisemblablement le vieillissement vasculaire partagé : dysfonction endothéliale, une perfusion cérébrale altérée, une charge de micro-infarctus et une signalisation pro-inflammatoire qui accélèrent la vulnérabilité neurodégénérative [15].
Rigidité vasculaire comme moteur de la sénescence endothéliale
Un concept essentiel du vieillissement cardiovasculaire est que la rigidité vasculaire n'est pas seulement la conséquence de plaque accumulation, mais peut fonctionner comme un moteur mécanobiologique de la dysfonction endothéliale. Le raidissement entraîné par élastine la dégradation, le remodelage du collagène et la réticulation augmentent le stress endothélial et altèrent mécanotransduction voies. La littérature expérimentale et intégrative sur le vieillissement vasculaire soutient qu'une rigidité accrue et un flux altéré favorisent des programmes de signalisation pro-sénescents et la production de médiateurs inflammatoires cohérents avec les phénotypes du vieillissement endothélial [16,17]. Cela contribue à une boucle de rétroaction positive dans laquelle la rigidité amplifie l'inflammation et le remodelage, et l'inflammation accélère encore matrice extracellulaire dysfonctionnement16,17].
Tableau 3. Cardiovasculaire Biomarqueurs et le contexte de risque dans la longévité exceptionnelle
| Biomarqueur / caractéristique | Vieillissement standard (années 80) | Centenaires (100+) | Implications pour la survie |
| NT-proBNP | souvent élevé avec l'âge | relativement plus faible dans les sous-groupes exceptionnellement survivants | un NT-proBNP plus bas associé à un avantage de survie aux âges les plus avancés18] |
| Charge du CAC | communément présent | charge variable ; un fardeau plus faible soutient le cerveaurésilience vasculaire | CAC plus élevé lié à de moins bons résultats cérébraux et à un risque de démence12–14] |
| Rigidité artérielle | souvent augmenté | élasticité préservée dans les phénotypes résilients | réduit le stress endothélial et soutient la santé microvasculaire16,17] |
| Albumine | diminue avec l'âge/l'inflammation | Une albuminémie élevée indique une meilleure réserve | une faible albuminémie est associée à une mortalité plus élevée dans tous les groupes d'âge18] |
Un marqueur particulièrement fort et reproductible dans les études sur les “ plus âgés des vieux ” est le NT-proBNP. Dans les cohortes longitudinales agrégées comprenant des centenaires et des (semi-)supercentenaires, la relation entre le NT-proBNP et la mortalité reste robuste même après prise en compte des facteurs traditionnels facteurs de risque et des mesures de réserve d'organes [18Ces résultats étayent l'idée que la résistance au stress de la paroi myocardique et la physiologie de l'insuffisance cardiaque subclinique sont des composantes essentielles d'une survie exceptionnelle.
Le “ commutateur ” nutritionnel : le seuil critique autour de 65 ans
L'une des idées translationnelles les plus importantes dans la recherche sur la longévité est que la stratégie nutritionnelle optimale n'est pas statique tout au long de la vie. Un “ interrupteur métabolique ” majeur se produit vers 65 ans, où le rapport bénéfice-risque associé à l'apport en protéines et à la signalisation de la croissance change de manière significative.
Les bienfaits d'un régime pauvre en protéines au milieu de la vie
Au milieu de la vie, de plus faibles apports en protéines ont été associés à une signalisation de l'IGF-1 plus faible et à un risque de cancer réduit dans certaines cohortes, ce qui correspond à l'idée qu'une signalisation chronique de la croissance peut être délétère lorsque les mécanismes de réparation et de surveillance commencent à se dégrader [19Dans cette phase, l'objectif nutritionnel met souvent l'accent sur la sensibilité à l'insuline, santé métabolique, et l'activation périodique de voies de maintenance telles que l'autophagie — obtenue grâce à des schémas tels qu'un apport protéique modeste, une alimentation restreinte dans le temps ou une modération calorique [2,19].
Le besoin élevé en protéines au grand âge
Après ~65 ans, le profil de risque s'inverse. Un faible apport en protéines est fortement lié à des résultats défavorables entraînés par sarcopénie, fragilité, chutes et diminution de l'immunocompétence [6,19Un apport protéique plus élevé favorise le maintien de la masse musculaire, de la réserve fonctionnelle et de la réponse immunitaire, des systèmes qui deviennent de plus en plus vulnérables avec l'âge.6Chez les adultes âgés, la répartition des protéines et la densité en leucine revêtent une importance particulière à mesure que l'appétit diminue et que les besoins énergétiques chutent, rendant la densité nutritionnelle (et pas seulement les calories) déterminante.
Dans la même optique, une étude prospective menée auprès d'adultes japonais âgés de 85 à 95 ans (le projet *Kawasaki Aging and Wellbeing Project*) sans incapacité initiale a signalé une baisse mortalité toutes causes confondues risque dans les groupes ayant l'apport en protéines le plus élevé par rapport au plus faible après ajustement pour les covariables cliniques, ce qui soutient l'idée qu'un apport protéique plus élevé peut être protecteur à un âge très avancé lorsque l'indépendance fonctionnelle est maintenue [20]. Plus important encore, la source des protéines et le contexte alimentaire restent pertinents ; des données probantes issues de cohortes plus larges suggèrent que le remplacement d'une partie des protéines animales par des protéines végétales — en particulier la viande rouge et transformée — pourrait améliorer les résultats à long terme dans les populations générales [21].
Marqueurs protéomiques et génétiques de la résilience des centenaires
Les centenaires n“” échappent » pas au vieillissement ; ils retardent souvent l'apparition des maladies et compressent la morbidité. Le profilage à l'échelle des systèmes étaye de plus en plus l'existence de constellations de biomarqueurs protecteurs dans les cohortes de longévité extrême. Des travaux à grande échelle sur les biomarqueurs chez les plus âgés identifient des profils cohérents avec une réserve d'organe préservée et une physiologie d'insuffisance cardiaque moindre chez ceux qui atteignent les âges les plus avancés, le NT-proBNP s'avérant être un marqueur particulièrement informatif [18En même temps, les profils protéomiques des groupes à longévité exceptionnelle reflètent souvent une modulation du tonus inflammatoire et de l'efficacité métabolique plutôt qu'une régulation à la hausse uniforme des protéines de “ défense ” classiques.
Le “ paradoxe ” redox et antioxydant”
Un écueil d'interprétation récurrent consiste à assimiler une plus faible abondance de certaines protéines associées aux antioxydants à des défenses plus faibles. Dans les phénotypes de vieillissement résilient, une plus faible expression de certaines protéines de réponse au stress peut refléter une charge oxydative en amont plus faible, entraînée par des mitochondries plus efficaces et une signalisation inflammatoire chronique réduite. En d'autres termes, l'homéostasie oxydoréductrice peut être atteinte grâce à une production réduite d'espèces réactives plutôt qu'à un maximum constant antioxydant déploiement. Ce cadre s'aligne sur la littérature mécanistique et épidémiologique reliant stress oxydatif voies vers les résultats cognitifs et hétérogénéité des trajectoires du vieillissement cérébral13].
Variants génétiques et retard des maladies
Les contributions génétiques à la longévité exceptionnelle semblent fonctionner principalement par le retardement des maladies plutôt que par la prévention du vieillissement lui-même. Parmi les loci régulièrement mis en cause dans les populations à longue durée de vie figurent APOE (en particulier l'enrichissement en APOE2), les variants de FOXO3A associés à la réponse au stress et à la régulation de la signalisation de l'insuline, et les voies liées aux lipides, y compris les traits associés à la CETP [22Ces variants favorisent plausiblement la résilience vasculaire et métabolique, réduisant la probabilité que les atteintes liées à l'âge franchissent les seuils cliniques.
Tableau 4. Principaux mécanismes moléculaires et leur influence sur la longévité
| Mécanisme | Impact physiologique | Rôle dans la longévité |
| Mitophagie | contrôle de qualité mitochondrial sélectif | limite les ERO provenant de mitochondries dysfonctionnelles ; soutient la résilience énergétique23] |
| protéostasie | synthèse, repliement et dégradation équilibrés | réduit l'accumulation de protéines agrégées et le dysfonctionnement des organites2,4] |
| Flexibilité métabolique | basculement entre les sources de carburant | prend en charge une faible insulinémie basale et la réponse au stress adaptatif2,3] |
| Stabilité épigénétique | maintien de la régulation génétique | peut réduire l'activation inadaptée des programmes de croissance/sénéscence3] |
| Compliance vasculaire | élasticité artérielle préservée | réduit la tension sur la paroi et soutient la fonction microvasculaire du cerveau et du cœur15–17] |
Géronutrition de précision et gérothérapeutiques émergentes
Alors que la gérosciences mûrit, l'intégration de la stratégie nutritionnelle aux interventions pharmacologiques ciblant les marqueurs du vieillissement est devenue une frontière majeure.
Interventions pharmacologiques ciblées (calibrées sur les données probantes)
- Rapamycine/rapalogues Parmi les interventions prolongeant la durée de vie les plus robustes chez les modèles animaux1–3]. Chez l'humain, les premiers travaux cliniques suggèrent que l'inhibition de mTOR peut améliorer certains paramètres immunitaires chez les personnes âgées, ce qui étaye la pertinence de la géroscience, bien que l'extension de la durée de vie reste à prouver [24].
- agonistes des récepteurs du GLP-1: Démontrer d'importants bénéfices sur les plans cardiométabolique et cardiovasculaire lors d'essais randomisés dans diabète, avec une pertinence secondaire pour la biologie du vieillissement via des réductions de l'adiposité, de l'inflammation et du risque cardiométabolique [25].
- Inhibiteurs du SGLT2: Fournir des réductions substantielles des hospitalisations pour insuffisance cardiaque et de la mortalité cardiovasculaire dans des essais randomisés d'évaluation, suggérant une préservation de la résilience cardiovasculaire ; des liens mécanistiques avec l'énergétique mitochondriale et l'inflammation sont plausibles, mais les affirmations concernant l'allongement des télomères ou une géroprotection définitive doivent être considérées comme expérimentales26].
- Urolithine A A microbiote intestinal– postbiotique dérivé qui active les voies de la mitophagie ; des données d'essais randomisés indiquent des améliorations des performances musculaires et des profils de biomarqueurs mitochondriaux chez les adultes d'âge moyen, ce qui étaye un rôle plausible dans le contrôle de la qualité mitochondriale [27].
Le rôle de la restriction calorique dans la santé cérébrale
Le cerveau présente des vulnérabilités distinctes avec l'âge, notamment une diminution de l'intégrité de la substance blanche et de la myéline, des changements inflammatoires microgliaux et une résistance métabolique réduite. Des études de cartographie à haute résolution chez des modèles vieillissants indiquent que la restriction calorique peut préserver des programmes génétiques spécifiques à une région liés au maintien de la myéline, réduire l'expression des voies inflammatoires associées au vieillissement et soutenir des états cellulaires associés à la neuroprotection [28Bien qu'il ne soit pas simple d'appliquer une restriction calorique de plusieurs décennies à l'humain, ces résultats soutiennent l'idée qu'une modération métabolique soutenue peut préserver la biologie neurovasculaire et de la matière blanche pertinente pour la résilience cognitive.
Perspectives régionales et impacts des politiques sur la longévité
Les résultats en matière de longévité ne sont pas déterminés uniquement par la biologie ; les environnements alimentaires et les structures politiques façonnent l'exposition à aliments ultra-transformés, de la qualité de l'alimentation et des connaissances en matière de nutrition. Les outils de santé publique qui réduisent la friction décisionnelle peuvent donc avoir des effets disproportionnés sur le vieillissement cardiométabolique à l'échelle de la population.
Étiquetage nutritionnel frontal et littératie en santé nutritionnelle
Des données probantes issues d'études randomisées indiquent que les systèmes d'étiquetage sur la face avant des emballages, y compris les conceptions d'étiquettes similaires au concept de “ Nutrition Info ” proposé par la FDA, peuvent améliorer la compréhension des consommateurs et encourager des choix d'achat plus sains lors de tâches d'achat simulées29,30]. Les effets peuvent varier en fonction des connaissances en matière de nutrition et des facteurs sociodémographiques ; les étiquettes graduées de type spectre peuvent réduire les disparités de compréhension en fournissant des signaux comparatifs plus clairs entre les produits [29,30Ces résultats sont pertinents pour la longévité car de petites améliorations durables de la qualité de l'alimentation peuvent se cumuler sur des décennies.
Vulnérabilité au stress oxydatif comme cible de précision
La vulnérabilité individuelle au stress oxydatif et à la signalisation inflammatoire varie. Des études génétiques et d'inférence causale soutiennent une relation entre les voies du stress oxydatif et les résultats cognitifs, ce qui suggère que la biologie redox pourrait contribuer à l'hétérogénéité des trajectoires du vieillissement cérébral [13Cela renforce une perspective de nutrition de précision : certains individus peuvent bénéficier de manière disproportionnée d'une optimisation précoce du risque cardiométabolique, de la qualité de l'alimentation et d'interventions qui réduisent l'inflammation chronique et la charge oxydative.
Conclusion : Une feuille de route pour une longévité nutritionnelle tout au long de la vie
Atteindre une longévité exceptionnelle nécessite une transition stratégique des priorités nutritionnelles alignée sur les réalités biologiques du vieillissement. La survie jusqu'à la onzième décennie semble favorisée par un contrôle de la qualité mitochondriale préservé, une compliance vasculaire maintenue et un apport nutritionnel suffisant pour surmonter la résistance anabolisante malgré la diminution de l'appétit et de la réserve physiologique.
Protocole nutritionnel recommandé pour les transitions de longévité
- Âge adulte (20–65 ans) : Mettez l'accent sur la santé métabolique et les ralentissements périodiques de la signalisation de la croissance (par exemple, la modération calorique ou l'alimentation restreinte dans le temps). Maintenez un apport modéré en protéines et privilégiez les schémas alimentaires qui favorisent la santé cardiométabolique et réduisent l'inflammation chronique.
- Transition de fin de vie (65–80 ans) : Augmenter les protéines à environ 1,0–1,2 g/kg/jour selon la tolérance et la pertinence clinique, en veillant à leur répartition par repas. Prioriser des portions de protéines riches en leucine, en ciblant environ 2,5 à 3,0 g de leucine par repas pour soutenir la signalisation de la synthèse des protéines musculaires (SPM) en cas de résistance anabolique.6,7].
- Grand âge (80-100+ ans) : Mettez l'accent sur la densité nutritionnelle et la répartition réalisable entre les repas ; les contraintes liées à l'appétit et à la mastication/déglutition prédominent. Surveillez les marqueurs de stress cardiovasculaire (par exemple, le NT-proBNP) et préservez la santé vasculaire grâce à tension artérielle contrôle, activité physique dans la mesure du possible, et régimes alimentaires favorables fonction endothéliale.
Atténuer le risque de MCV et de démence
Le maintien de la santé vasculaire tout au long de l'âge mûr reste essentiel pour réduire l'insuffisance cardiaque et la vulnérabilité cognitive au grand âge. La charge de calcium coronaire (CAC) et rigidité artérielle réfléchir exposition cumulative et le risque, et leurs conséquences en aval impliquent de plus en plus le vieillissement cérébral à mesure que la survie se prolonge [12–17La préservation d'un environnement mécanique physiologique (élasticité artérielle et intégrité microvasculaire) peut réduire la dysfonction endothéliale et l'amplification inflammatoire, favorisant ainsi la longévité à la fois cardiaque et cognitive.
En résumé, la transition vers la longévité ne consiste pas à multiplier indéfiniment les mêmes interventions, mais à opérer un pivot calculé, passant de la suppression de la croissance et de la priorisation de la maintenance au milieu de la vie à la préservation structurelle et au soutien anabolique plus tard. En comprenant la détection des nutriments (notamment les seuils de leucine et la dynamique de mTOR) et la mécanobiologie du vieillissement vasculaire, les individus et les cliniciens peuvent mieux surmonter les obstacles biologiques qui séparent le vieillissement gérontologique standard des trajectoires résilientes des centenaires.
Références
- Johnson SC, Rabinovitch PS, Kaeberlein M. mTOR is a key modulator of ageing and age-related disease. Nature. 2013;493(7432):338-345. doi:10.1038/nature11861
- Kennedy BK, Lamming DW. The Mechanistic Target of Rapamycin: The Grand ConducTOR of Metabolism and Aging. Cell Metab. 2016;23(6):990-1003. doi:10.1016/j.cmet.2016.05.009
- Papadopoli D, Boulay K, Kazak L, et al. mTOR as a central regulator of lifespan and aging. F1000Res. 2019;8:F1000 Faculty Rev-998. Published 2019 Jul 2. doi:10.12688/f1000research.17196.1
- Zarzycka W, Kobak KA, King CJ, Peelor FF 3rd, Miller BF, Chiao YA. Hyperactive mTORC1/4EBP1 signaling dysregulates proteostasis and accelerates cardiac aging. Geroscience. 2025;47(2):1823-1836. doi:10.1007/s11357-024-01368-w
- Breen L, Phillips SM. Skeletal muscle protein metabolism in the elderly: Interventions to counteract the ‘anabolic resistance’ of ageing. Nutr Metab (Lond). 2011;8:68. Published 2011 Oct 5. doi:10.1186/1743-7075-8-68
- Bauer J, Biolo G, Cederholm T, et al. Evidence-based recommendations for optimal dietary protein intake in older people: a position paper from the PROT-AGE Study Group. J Am Med Dir Assoc. 2013;14(8):542-559. doi:10.1016/j.jamda.2013.05.021
- Moore DR, Churchward-Venne TA, Witard O, et al. Protein ingestion to stimulate myofibrillar protein synthesis requires greater relative protein intakes in healthy older versus younger men. J Gerontol A Biol Sci Med Sci. 2015;70(1):57-62. doi:10.1093/gerona/glu103
- Wolfson RL, Chantranupong L, Saxton RA, et al. Sestrin2 is a leucine sensor for the mTORC1 pathway. Science. 2016;351(6268):43-48. doi:10.1126/science.aab2674
- Saxton RA, Knockenhauer KE, Wolfson RL, et al. Structural basis for leucine sensing by the Sestrin2-mTORC1 pathway. Science. 2016;351(6268):53-58. doi:10.1126/science.aad2087
- Lixandrão ME, Longobardi I, Leitão AE, et al. Daily Leucine Intake Is Positively Associated with Lower Limb Skeletal Muscle Mass and Strength in the Elderly. Nutrients. 2021;13(10):3536. Published 2021 Oct 9. doi:10.3390/nu13103536
- Szwiega S, Pencharz PB, Rafii M, et al. Dietary leucine requirement of older men and women is higher than current recommendations. Am J Clin Nutr. 2021;113(2):410-419. doi:10.1093/ajcn/nqaa323
- Bos D, Vernooij MW, Elias-Smale SE, et al. Atherosclerotic calcification relates to cognitive function and to brain changes on magnetic resonance imaging. Alzheimers Dement. 2012;8(5 Suppl):S104-S111. doi:10.1016/j.jalz.2012.01.008
- Fan Z, Yang C, Qu X, et al. Association of Oxidative Stress on Cognitive Function: A Bidirectional Mendelian Randomisation Study. Mol Neurobiol. 2024;61(12):10551-10560. doi:10.1007/s12035-024-04231-3
- Huang GS, Hansen SL, McClelland RL, et al. Relation of Progression of Coronary Artery Calcium to Dementia (from the Multi-Ethnic Study of Atherosclerosis). Am J Cardiol. 2022;171:69-74. doi:10.1016/j.amjcard.2022.01.061
- Iadecola C. The pathobiology of vascular dementia. Neuron. 2013;80(4):844-866. doi:10.1016/j.neuron.2013.10.008
- Li Q, Qian Z, Huang Y, et al. Mechanisms of endothelial senescence and vascular aging. Biogerontology. 2025;26(4):128. Published 2025 Jun 25. doi:10.1007/s10522-025-10279-y
- Lai A, Zhou Y, Chheang C, et al. Decoding vascular aging: Substrate stiffness and shear stress orchestrate endothelial inflammation and remodelling via mechanosensitive pathways. Biomaterials. 2026;329:123932. doi:10.1016/j.biomaterials.2025.123932
- Hirata T, Arai Y, Yuasa S, et al. Associations of cardiovascular biomarkers and plasma albumin with exceptional survival to the highest ages. Nat Commun. 2020;11(1):3820. Published 2020 Jul 30. doi:10.1038/s41467-020-17636-0
- Levine ME, Suarez JA, Brandhorst S, et al. Low protein intake is associated with a major reduction in IGF-1, cancer, and overall mortality in the 65 and younger but not older population. Cell Metab. 2014;19(3):407-417. doi:10.1016/j.cmet.2014.02.006
- Kurata H, Meguro S, Abe Y, et al. Dietary protein intake and all-cause mortality: results from The Kawasaki Aging and Wellbeing Project. BMC Geriatr. 2023;23(1):479. Published 2023 Aug 9. doi:10.1186/s12877-023-04173-w
- Budhathoki S, Sawada N, Iwasaki M, et al. Association of Animal and Plant Protein Intake With All-Cause and Cause-Specific Mortality in a Japanese Cohort. JAMA Intern Med. 2019;179(11):1509-1518. doi:10.1001/jamainternmed.2019.2806
- Brooks-Wilson AR. Genetics of healthy aging and longevity. Hum Genet. 2013;132(12):1323-1338. doi:10.1007/s00439-013-1342-z
- Shirakabe A, Ikeda Y, Sciarretta S, Zablocki DK, Sadoshima J. Aging and Autophagy in the Heart. Circ Res. 2016;118(10):1563-1576. doi:10.1161/CIRCRESAHA.116.307474
- Mannick JB, Del Giudice G, Lattanzi M, et al. mTOR inhibition improves immune function in the elderly. Sci Transl Med. 2014;6(268):268ra179. doi:10.1126/scitranslmed.3009892
- Marso SP, Daniels GH, Brown-Frandsen K, et al. Liraglutide and Cardiovascular Outcomes in Type 2 Diabetes. N Engl J Med. 2016;375(4):311-322. doi:10.1056/NEJMoa1603827
- Zinman B, Wanner C, Lachin JM, et al. Empagliflozin, Cardiovascular Outcomes, and Mortality in Type 2 Diabetes. N Engl J Med. 2015;373(22):2117-2128. doi:10.1056/NEJMoa1504720
- Singh A, D’Amico D, Andreux PA, et al. Urolithin A improves muscle strength, exercise performance, and biomarkers of mitochondrial health in a randomized trial in middle-aged adults. Cell Rep Med. 2022;3(5):100633. doi:10.1016/j.xcrm.2022.100633
- Zhang Z, Epstein A, Schaefer C, et al. Spatiotemporal profiling reveals the impact of caloric restriction in the aging mammalian brain. Cell Rep. 2025;44(9):116165. doi:10.1016/j.celrep.2025.116165
- Grummon AH, O’Sullivan K, Petimar J, et al. Nutrition Info and Other Front-of-Package Labels and Simulated Food and Beverage Purchases: A Randomized Clinical Trial. JAMA Netw Open. 2025;8(10):e2537389. Published 2025 Oct 1. doi:10.1001/jamanetworkopen.2025.37389
- Huang Y, O’Sullivan K, Block JP, Petimar J, Lee CJY, Grummon AH. Impact of the Food and Drug Administration’s Proposed Front-of-Package Label and Alternative Designs on Consumer Understanding: A Randomized Experiment. Am J Prev Med. Published online December 13, 2025. doi:10.1016/j.amepre.2025.108222

