ヒトのコレステロールの代謝経済学
分析 デ・ノボ合成, リポタンパク質 フラックスおよび周辺組織の取得
1. 抄録
の生理学的調節 コレステロール 人体におけるコレステロールの代謝は、哺乳類生物学において最も精巧な代謝恒常性の例の一つである。コレステロールは、四環式の ステロール, 、真核生物の生命にとって不可欠であり、細胞膜の構造上の要として機能し、ステロイドホルモンの基質として、また 胆汁酸 合成、および膜貫通シグナル伝達プラットフォームの骨格として機能する。末梢組織ではコレステロールのステロール核を分解することができないため、胆汁酸への肝内変換が胆汁酸の唯一の排泄経路となる一方、中性ステロールの排泄には、胆汁経由および腸管経由の排泄経路も含まれる。.
有核細胞はすべて、アセチルCoAから約30段階の経路を経てコレステロールをデ・ノボ合成するための酵素系を備えている。この合成には多大なエネルギーを要するため、受容体を介した取り込みが優先される。 LDL 循環コレステロールが存在する場合、ほとんどの組織でコレステロールが取り込まれる。本報告では、ヒトの各組織におけるコレステロールの定量的分布を調査し、確定的なフラックス解析データに基づいて組織特異的な生合成経路の利用状況を明らかにするとともに、ステロールの恒常性を維持する調節機構を体系的に整理する。.
2. はじめに
コレステロールは、哺乳類の生化学において特異的な位置を占めています。エネルギーを得るために酸化されるか、高分子複合体へと重合されるのが一般的な代謝産物とは異なり、コレステロールは耐久性のある構造成分として管理されています。ステロール環系は極めて安定しており、ヒトの細胞内には、これを切断して酸化可能な燃料として炭素原子を回収する酵素経路は存在しません。 したがって、その排泄は、胆汁酸への変換(経由して)を伴う、肝臓における間接的なプロセスとなる。 CYP7A1 および副経路)あるいは胆汁への直接排泄 [11].
コレステロールの臨床的意義は広く認められている。LDLコレステロール(LDL-C)濃度の上昇、より正確には上昇した LDL粒子数 血漿による定量結果によると アポリポ蛋白 Bアポリポ蛋白B), は、アテローム性動脈硬化と因果関係がある 心血管疾患 (ASCVD)が、幅広い層において メンデルランダム化, 、疫学的および介入研究によるエビデンス [20]. コレステロール代謝のメカニズムを正確に理解することは、治療面において直接的な意義を持つ。それは、なぜ……かを説明してくれるからだ。 ハイパーシンセサイザー …に対して強固に対応する HMG-CoA還元酵素 阻害剤(スタチン) しかし、食事制限への反応は芳しくなく、一方で 高吸水性素材 逆のパターンを示し、腸の働きによる恩恵を受ける NPC1L1 ~による封鎖 エゼチミブ [28, 29]. また、それがなぜなのかについても説明しています。 PCSK9 阻害――翻訳後修飾を阻害することにより LDL受容体 (LDL受容体) 分解は、~とは無関係に、肝臓におけるLDLのクリアランスを増強する。 メバロン酸経路 [21].
3. 全身コレステロールの定量的枠組み
健康な成人の場合、全身のコレステロール量は体重1キログラムあたり約2,100 mgである [6]. 体重70kgの人では、これは約147グラムのプールに相当する。このプールのうち90%以上は細胞膜内に存在しており、そこでコレステロールは二重層の流動性を調節し、コレステロールが豊富なマイクロドメインを形成している(‘リピッド・ラフト’」)は、受容体チロシンキナーゼやGタンパク質共役受容体のプラットフォームとして機能する[19].
1日あたりのコレステロール純収支は、内因性合成、食事からの摂取、胆汁中コレステロールの再吸収、および中性および酸性ステロールの糞便中への排泄を反映しており、単なる「合成対食事からの吸収」という二分法に還元すべきではない。 ヒトの全身コレステロール代謝回転量は1日あたり約0.7%であり、体重70 kgの成人では1日あたりおよそ0.8~1.2グラムに相当する [5, 6]. これに対し、マウスは1日あたり、体内の総コレステロールの約7~9%を代謝している [5]—これは、げっ歯類を用いた脂質低下研究の結果をヒトの転帰に適用可能かどうかという点において、重要な意味を持つ相違点である。.
表1. 典型的な西洋型の食事条件下における健康な成人の1日あたりのコレステロール収支。.
注:この表は、ヒトのコレステロール代謝における確立されたフラックスを示している。食事からの吸収は、単に「デ・ノボ合成の反対側」というものではなく、胆汁分泌、管腔内混合、NPC1L1を介した取り込み、および胆汁の部分的な再循環を含む、多段階の腸管プロセスを反映している。.
| パラメータ | 代表値/範囲 | 解釈上の注記 | 主な参考文献 |
| 総コレステロール | 体重1kgあたり約2,100 mg;体重70 kgの成人では約147 g | その大部分(>90%)は膜に存在し、残りは循環リポタンパク質に含まれている | Goodman ら 1973 [6] |
| 全身の1日あたりの代謝回転量 | ~0.7%/日(体重70kgの成人で約0.8~1.2g/日) | げっ歯類(約7~9%/日)よりも大幅に低く、ヒトのステロール代謝が非常に節約的であることを示唆している | Dietschy & Turley 2002 [5]; Goodman ら 1973 [6] |
| デ・ノボ合成 | 健康な成人では1日あたり700~900 mg(個人差が大きい) | 単なる食事からの吸収に対する相殺要因ではなく、すべての組織にわたる全身の合成量を反映している | グランディ 1983 [3] |
| – 肝臓由来の割合 | 全合成の~10–25% | 大部分は肝外組織に由来するが、その正確な割合は表現型や測定法によって異なる | Dietschy ら 1993 [4]; Dietschy & Turley 2002 [5] |
| 食事由来のコレステロール 受け入れ | 一般的に1日あたり約200~500 mg(対象集団や時代によって異なる) | 集団平均値には大きなばらつきが見られる。SREBP2の代償的な抑制により、大多数の個人において、これは血漿LDL-Cの主要な決定要因ではない。 | Wang 2007 [9] |
| 腸管由来のコレステロールは、 ルーメン | ~1,400~1,700 mg/日(食事+胆汁+脱落した上皮細胞) | 胆汁由来の分画が大部分を占め、食事由来の分画は管腔内負荷のごく一部にすぎない | Wang 2007 [9]; ラッセル 2003 [11] |
| 腸管での部分的吸収 | 変動幅が大きい:健常者において29.0~81.1%、平均56.2% | 個人間のばらつきは大きく、NPC1L1の遺伝子型が主要な決定要因となっている | Bosner ら 1999 [10] |
| 胆汁中へのコレステロール分泌 | ~800~1,200 mg/日 | 管腔内のコレステロールの主な供給源。その大部分は再吸収され、再吸収されなかった部分は中性ステロールとして排泄される。 | ラッセル 2003 [11] |
| 胆汁酸の合成 | ~400 mg/日(従来の概算値) | 胆汁酸の排泄経路のみ。胆汁経路および腸管通過経路の両方が、中性ステロールの全体的な排泄に寄与している。 | ラッセル 2003 [11] |
| 糞便中のステロール総排出量 | ~0.7~1.0 g/日(幅が広い) | 中性ステロールと酸性ステロールは区別すべきである;; 腸管外コレステロール排泄(TICE) 胆汁の喪失に加えて寄与する | ラッセル 2003 [11] |
| ステロイドホルモンの合成 | 1日あたり約50 mg(過去の概算値) | 情報源が不確実であるため、あくまで桁レベルの概算として報告されている | Miller & Auchus 2011 [12] |
すべての値は、正常な代謝状態における生理的範囲を表しています。脂質異常症、肝疾患、または薬物療法の下では、これらの値は大幅に変化します。肝臓での合成が占める正確な割合は測定法によって異なりますが、10~25%の範囲はヒトのトレーサーデータを反映しています。.
4. エネルギー的必然性:コストのかかる資産としてのデ・ノボ合成
アセチルCoAからコレステロールに至る一連の反応経路は、およそ30の酵素反応段階から構成されている [1]. これは主に2つの段階に分かれています:
- プレラノステロール段階(約11段階):メバロン酸経路そのもの(アセチルCoAからイソペンテニルピロリン酸[IPP]に至る6つの特異的な酵素反応)から、スクアレンの合成、そしてラノステロールへの酸化環化に至るまでを含む[1].
- ラノステロール後の段階(約19段階):Bloch(1965)によって特徴づけられた分岐した生合成経路を介した、ラノステロールからコレステロールへの変換 [1] および Kandutsch & Russell (1960) [17].
4.1 生体エネルギーコスト:微妙な差異を考慮した算定
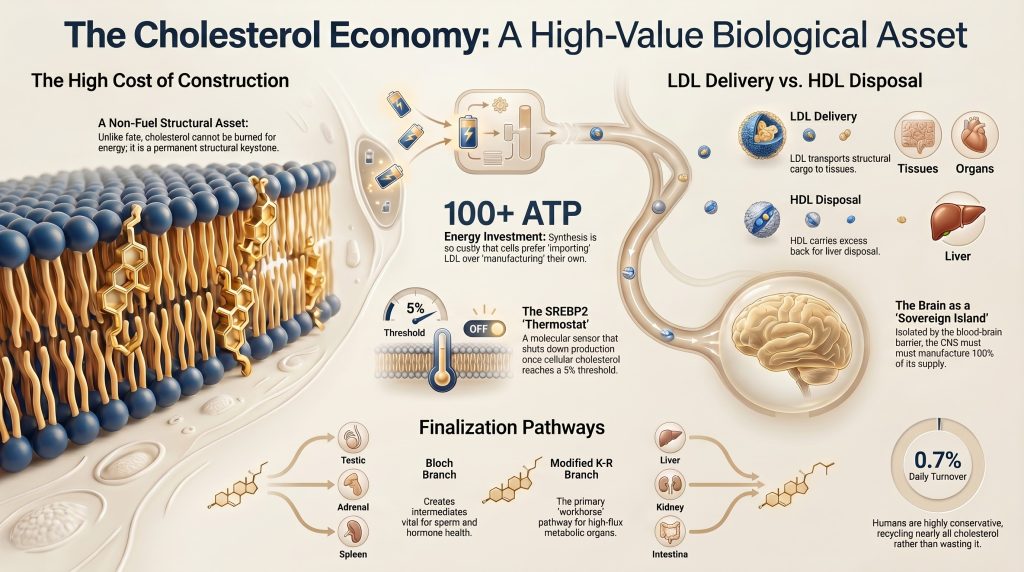
コレステロールの生合成は、エネルギー消費が大きい。一般的に引用される推定値によると、アセチルCoAから1分子あたり約18 ATPおよび16 NADPHを消費するが、これは中核経路の補因子(メバロン酸キナーゼ反応およびHMG-CoA還元酵素反応)のみを考慮したものである。これらは、ほとんどの生化学の教科書で認められている値である [1]. より広範な計算手法(これには、3つの酸化脱メチル化反応の過程で消費されるラノステロール由来のNADPHに加え、ラノステロールからコレステロールへの環還元反応で消費されるNADPHも含まれる)を用いると、より高い値が得られる(経路全体で合計約26 NADPH [2]) 普遍的に受け入れられている唯一の答えは存在しない [2]. 18分子のアセチルCoA(失われたβ酸化エネルギー)およびすべての還元当量の機会費用をATP相当単位に換算すると、コレステロール1分子あたりの総エネルギー消費量は100 ATP相当を大幅に上回る。 これは、循環コレステロールが利用可能な場合、細胞がデ・ノボ合成よりも受容体を介したLDL取り込みを強く好む理由を説明している [13].
4.2 PCSK9とLDL受容体のサイクル
LDLRは、ApoB-100を含むLDL粒子の受容体媒介性エンドサイトーシスを仲介する。脂質負荷物をリソソームに送り出した後、この受容体は肝細胞表面へとリサイクルされ、その後のLDL結合を繰り返す。. プロプロテインコンバーターゼ サブティリシン/ケキシン型9(PCSK9)は、エンドソーム内のLDLRに結合し、それを細胞表面への再帰ではなくリソソームでの分解へと誘導することで、このリサイクルを阻害する [21].
PCSK9の機能喪失型変異は、生涯にわたるLDL-Cの低下および冠動脈疾患リスクの著しい低減と関連しているが、その保護効果の程度は変異の種類や対象集団によって異なる [21]. PCSK9を阻害するモノクローナル抗体(エボロクマブ, アリロクマブ) スタチン療法に加えてLDL-Cを50~65%低下させ、さらに有意に低下させる 主要心血管イベント 高リスク患者において [22, 23]. このメカニズムは、スタチンによるHMG-CoA還元酵素の阻害とは相加的に作用し、メバロン酸経路には依存しない。.
5. 経路のバリエーション:ブロッホ分岐とカンドゥッチ・ラッセル分岐
ラノステロール後のコレステロール生合成は、標準的なブロッホ経路と標準的なK-R経路の間の厳密な二者択一としてではなく、ブロッホが優勢な経路および修飾されたカンドゥッチ・ラッセル経路を通る組織特異的なフラックスのスペクトルとして捉える方が適切である。.
これらの経路の組織分布については、ミッチェ、マクドナルド、ホッブス、およびコーエンによって明確に解明されている [16] 生体内の15種類のマウス組織における安定同位体フラックス解析を用いて。彼らの主な知見は、どの組織においても、標準的なK-R経路が主要な無変化経路として観察されなかったという点である。その代わりに、彼らは修正されたK-Rモデルを提唱し、肝臓と腎臓では主に修正されたK-Rフラックスが認められた一方で、精巣と副腎ではブロッホ型が優勢であったと報告した。 肝臓・腎臓・腸管を、定型的なK-Rが優勢である部位として、哺乳類における確立された法則であるかのように提示する要約は、著者らの結論および特定の組織の分類の両方を誤って伝えていることになる。.
5.1 ブロッホ経路(デスモステロールを経由)
その ブロッホ経路 この経路はデスモステロールを経由する(ラノステロール → … → デスモステロール → DHCR24を介してコレステロール)。デスモステロールという中間体自体が生物学的機能を果たす組織において、この経路が主流となる。 精巣はその最も顕著な例である。デスモステロールは成熟した精子の頭部に蓄積し、そこでコレステロールとは異なるその独特な生物物理的特性が、受精能に必要な膜のリモデリングを促進する [16, 18].
Mitscheらによる分析において、ブロッホ型が優勢な組織は、精巣、副腎、および脾臓である。これとは別に、脳における細胞型特異的な研究では、以下のことが示されている。 アストロサイト また、発達中のニューロンは、Bloch/デスモステロール合成経路を優先的に利用する。しかし、Mitscheらによる同じ解析において、成体の全脳組織は主に修飾K-Rフラックスにマッピングされた。これら2つの知見を混同してはならない。成体の全脳に関する知見と、特定の神経細胞タイプに関する知見は、別々に記述すべきである。.
5.2 修飾カンデュッチ・ラッセル経路(7-DHC/ラトステロールを介する)
修飾型K-R経路は、7-デヒドロコレステロール(7-DHC)およびラトステロール(ラノステロール → … → 7-DHC → DHCR7を介してコレステロール)を経由して進行する。 Mitscheらによる解析では、成体マウスの肝臓において、主に修飾K-R経路のフラックスが認められた。これは臨床的に重要である。DHCR7欠損は、 スミス・レムリ・オピッツ症候群, そこでは、有毒な7-DHCの蓄積が、K-R優位のすべての改変組織に影響を及ぼしている [18]. 皮膚において、7-DHCはUVB照射を受けた際のビタミンD₃の直接の前駆体であり、これにより修飾されたK-R経路には独特な光生物学的役割が与えられている [18].
DHCR24およびDHCR7は、重要な分岐反応を規定する末端還元酵素であるが、組織内の代謝流は、厳密な二分岐経路図が示唆するよりも柔軟で分岐している [16].
表2. 組織別のラノステロール後生合成経路の分布(Mitsche et al. 2015 [16]).
| パスウェイ支店 | この系統が優勢な組織(Mitsche et al. 2015 [16]) | 生物学的根拠と留意点 |
| ブロッホ(デスモステロール経由) | 精巣、副腎、脾臓;アストロサイトおよび発達中のニューロン(細胞タイプ別研究) | デスモステロール(ブロッホ経路の最後から2番目の中間体)は、精子形成において重要な、独特な生物物理学的特性を有している。アストロサイト特異的および発達中のニューロンを対象とした研究では、ブロッホ/デスモステロールのフラックスが優先的に生じることが示されている。しかし、Mitscheらによるマウスの解析では、成体の脳全体組織において、主に修飾K-Rフラックスが検出された。 |
| 修飾カンデュッチ・ラッセル法(7-DHC/ラトステロールを介して) | 肝臓、腎臓、包皮腺、腸;成体の脳全体組織(Mitsche らによる) | 高フラックス代謝器官において優勢である。Mitscheらはこれを「修飾型K-R」経路と表現した。どの組織においても、標準的なK-R経路が優勢な無傷の経路として観察されなかった。肝臓では、ブロッホ経路ではなく、主に修飾型K-Rフラックスが利用されている。 DHCR7欠損症(スミス・レムリ・オピッツ症候群)は、この分岐経路の臨床的重要性を示している。. |
| 混合型/文脈依存型 | 皮膚、骨格筋、心臓、肺 | その比率は、発達段階、酸素化状態、およびホルモン環境によって変化する。皮膚においては、K-R中間体である7-DHCがビタミンD₃の直接的な光化学的前駆体である。組織内での代謝流は、厳密な二者択一というよりは、可塑的なスペクトルとして捉える方が適切である。. |
このデータは、15種類のマウス組織における安定同位体フラックス解析に基づいている [16]. ヒト組織における分布は酵素の相同性から推測される。「修飾型K-R」とは、Mitscheら独自の用語を指す。どの組織においても、標準的なK-Rが主要な無変化経路として観察されなかった。.
6. リポタンパク質の動態:全身的な物流システム
細胞は自らコレステロールを合成できることを踏まえると、血中リポタンパク質には主に3つの機能がある:(1) 合成過剰な組織から合成不足な組織への資源の再分配; (2) 高エネルギー需要状態において、細胞内のATPおよびNADPHを節約するための代謝的緩衝作用;および (3) 末梢の過剰なステロールの逆輸送と排出により、その蓄積を防ぐこと。 マクロファージ そして アテローム発生 [25]. コレステロールは親油性が非常に高く、血漿中では水に溶けないため、受容体への結合特異性を付与するリン脂質やアポリポタンパク質とともに、両性リポタンパク質粒子に封入されなければならない [30].
6.1 VLDL–IDL–LDL カスケード
VLDL これらの粒子は肝細胞内で合成され、肝静脈(全身)循環へと分泌され、そこで リポ蛋白リパーゼ (LPL)は内皮細胞表面に結合すると、トリグリセリドのコアを徐々に加水分解し、中間密度リポタンパク質(IDL) の残留物が、トリグリセリドが除去され、コレステロールエステルが豊富なLDL粒子だけが残るまで [30]. 各LDL粒子は1つの アポB-100 分子である。したがって、血漿中のApoB濃度は、より正確な指標となる。 動脈硬化惹起性粒子 LDLコレステロール質量よりも大きな負担であり、これは粒子サイズの不均一性を混同している [20]. 血中コレステロール総量の約60~70%がLDL画分に含まれている [30].
6.2 HDLとコレステロールの逆輸送
高密度リポタンパク質(HDL)粒子は、以下を通じて、末梢の過剰なコレステロールを肝臓へ戻す働きを促進する。 コレステロール引き抜き転送 (RCT)。. ABCA1 細胞内のコレステロールおよびリン脂質の初期の転送を媒介し、脂質含有量の少ないアポA-Iへと移し、初期の円盤状構造を形成する HDL 粒子。ABCG1は、主に成熟度が高く脂質が豊富なHDL粒子へのコレステロールのさらなる流出を促進する。これらは、機能的な役割が重複しない、それぞれ異なる初期の受容体プールである [26]. その後、ApoA-Iによって活性化されたレシチン・コレステロールアシルトランスフェラーゼ(LCAT)が、取り込まれたコレステロールをエステル化し、熱力学的に正味流出を促進するとともに、形成途上の円盤状構造を成熟した球状のHDLへと変換する [26].
コレステロールは、SR-BIを介した選択的取り込み、あるいはCETPを介した交換を通じて、肝臓に戻されます。 アポB含有リポ蛋白 その後、LDLRによって除去される。肝臓は、戻ってきたコレステロールをCYP7A1を介して胆汁酸(一次胆汁酸:コール酸、ケノデオキシコール酸)に変換するか、あるいは中性ステロールの排泄のために胆汁へ直接排泄する [11]. 腸管経由のコレステロール排泄(TICE)は、胆汁分泌に依存しない、もう一つの糞便を介した排出経路である。.
6.3 SR-BIとステロイド生成組織における選択的取り込み
SR-BI(スカベンジャー受容体B型I)は、の選択的取り込みを媒介する。 コレステリルエステル リポタンパク質粒子の分解を伴わずに、HDLおよびLDLの両方から取り込む。SR-BIは副腎皮質および生殖腺で高発現しており、副腎ではACTHによって発現が誘導される。これにより、ホルモンの需要と循環中のステロール供給とを結びつけるフィードフォワード機構が形成される [24]. しかし、ステロイド生成の取り込み経路としてSR-BIが優勢であることは、ヒトの副腎よりもげっ歯類の副腎においてより確立されている。ヒトでは、LDLRを介したLDLの取り込みが依然として特に重要であり、HDL–SR-BI経路はげっ歯類ほど支配的ではないようである。 両方の経路が寄与しており、げっ歯類のSR-BIデータからヒトへの過度な一般化は避けるべきである。.
7. 組織特異的なコレステロール獲得プロファイル
組織が循環コレステロールにどの程度依存し、内部合成にどの程度依存しているかは、その組織の代謝上の役割、血管へのアクセス、および生合成能力を反映している。 以下の表3は、組織の定性的なプロファイルを示している。ほとんどの末梢組織(筋肉、脂肪、皮膚)における具体的な「取り込み対合成」の割合は、ヒトを対象とした直接的なトレーサーによる証拠によって確立されていないため、確定した数値として述べるべきではない。.
表3. 組織におけるコレステロール取り込みの定性的プロファイル。.
| ティッシュ | コレステロールの獲得経路と機能的役割 |
| 脳(中枢神経系) | 通常の成人状態では、コレステロールに関しては本質的に自給自足であり、血漿リポタンパク質コレステロールの流入は 血液脳関門 は無視できる程度である。コレステロールはすべて、主にアストロサイトによって局所的に合成され、ApoEを含む脳脊髄液リポタンパク質を介してニューロンに分配される。ヒトにおいて、組織分画の割合から合成と取り込みの正確な割合を信頼性をもって定量化することはできない。. |
| 副腎皮質 | 血漿リポタンパク質由来のコレステロールへの依存度が高い。ヒトにおいては、LDLRを介したLDLの取り込みが特に重要であり、SR-BIも関連している(ただし、SR-BIの優位性は、ヒトの副腎よりもげっ歯類の副腎においてより確立されている)。急性ACTH刺激下では、ステロイド前駆体となるコレステロールの80%以上が循環リポタンパク質に由来する。 細胞内のコレステロールエステル貯蔵(ACAT/HSLによって調節される)が緩衝作用を果たす。. |
| 肝臓 | 中枢:受容体を介したLDL取り込み、デ・ノボ合成、VLDL分泌、胆汁酸合成、および胆汁排泄を行う。 全身のデ・ノボ合成に対する正確な寄与率は、出典や測定法によって異なる(ヒトの定常状態データでは約10~25%)。主に修正K-R生合成フラックスを用いる。取り込みと合成の正確な割合は、測定法に依存する。. |
| 腸 | コレステロールの吸収(NPC1L1を介した管腔からの吸収)およびデ・ノボ合成の両方において主要な役割を果たす臓器である。また、経腸コレステロール排泄(TICE)を介したコレステロール排泄にも関与しており、これは胆汁分泌とは独立して、糞便中のステロール損失に寄与している。主にK-R経路の生合成フラックスを調節している。. |
| 生殖腺 | デ・ノボ合成、細胞内コレステロールエステル貯蔵(HSLによって動員される)、および血漿リポタンパク質(LDLRおよびSR-BIの両経路)を組み合わせて利用される。正確な割合は状況に依存し、性腺刺激ホルモン(LH/FSH)によって動的に調節される。精巣ではブロッホ経路が主要な役割を果たす。. |
| 骨格筋、脂肪組織、皮膚 | その質量の大きさから、全身のコレステロール代謝において重要な役割を果たしているが、直接的なトレーサーによる証拠がなければ、ヒトにおける摂取と合成の正確な比率は確立されていない。大まかな推定では、正常な状態では主に局所での合成に依存していることが示唆されているが、ヒトを対象としたこれを裏付ける一次のトレーサー研究を引用しない限り、具体的な割合を割り当てるべきではない。. |
定性的な記述は、ヒトおよび動物を用いた研究から得られたコンセンサスを反映している。末梢組織(骨格筋、脂肪組織、皮膚)への正確な割合については、ヒトを対象としたトレーサーを用いた直接的な証拠によって確立されていない。Dietschy ら 1993 を参照 [4] および Goodman ら 1973 [6] 利用可能な一次動態データについては。組織フラックスは、以下の条件下で大きく変動する 炎症, 、代謝性疾患、低酸素症、および薬理学的介入。.
7.1 脳:自立性
中枢神経系(CNS)は、体重のわずか約2%を占めるに過ぎないにもかかわらず、全身のコレステロールのうち約20~25%を含んでいる [7]. 脳内の細胞間のタイトジャンクションによって形成される血液脳関門(BBB) 内皮細胞 リポタンパク質に結合したコレステロールは全身循環から除外される。成人の血液脳関門(BBB)を通じた血漿コレステロールの正味流入量はごくわずかである [7, 8]. したがって、脳は必要なコレステロールをすべて自ら合成しなければならず、この役割は主にアストロサイトが担っている。アストロサイトは、脳脊髄液中のアポEを含むリポタンパク質を介して、コレステロールをニューロンへと輸送する [8].
脳内のコレステロールは、主に以下への変換によって排出されます。 オキシステロール, 、特に24(S)-ヒドロキシコレステロールは、神経細胞のCYP46A1(コレステロール24-ヒドロキシラーゼ)を介して排出される。 頸静脈における動脈血と静脈血の濃度差を直接測定した結果、脳からの排出量は1日あたり約2~3 mgであることが示唆されている。以前の間接的な推定値では、1日あたり4~7 mgとされていた。これは測定法に依存する推定値の範囲であり、固定された単一の値ではない [8]. ミエリン鞘は、哺乳類の生物学において最もコレステロールを豊富に含む膜構造であり、ミエリン脂質総量の約25~40%がコレステロールで構成されている(正確な割合は種、部位、測定方法によって異なる)[7].
7.2 ステロイド生成組織:輸入に依存する高フラックス消費組織
副腎皮質および生殖腺では、StARタンパク質を介したミトコンドリアへの取り込み経路を通じて、ステロイドホルモン合成の唯一の基質としてコレステロールが必要とされる [12]. 急性ACTH刺激下では、ステロイド生合成で消費されるコレステロールの80%以上が、循環リポタンパク質に由来する [24]. 細胞内のコレステロールエステル貯蔵(ACATによるエステル化、HSLによる動員)は、即座に利用可能な緩衝源となる。.
7.3 骨格筋、脂肪組織、および皮膚
これらの組織は、体内で最大の質量を占めており、したがってコレステロールプール全体の絶対的な割合も大きいものの、その1日あたりの代謝回転率は低く、コレステロールの大部分は局所的に合成されている。 動物を用いたトレーサー研究による大まかな推定では、正常な条件下ではデ・ノボ合成への依存度が高いことが示唆されていますが、これらの組織におけるヒトの生体内での取り込みと合成の割合は、具体的な数値の表が示唆するような精度では確立されていません。 また、全身の脂質代謝に対するこれらの組織の寄与は間接的なものである。すなわち、骨格筋量が多いほど、LPL活性の上昇や改善などを通じて、血中LDL-C濃度が低くなるという疫学的な関連性が示されている。 インスリン感受性 (これにより肝臓におけるLDLRの発現が上昇する)、あるいはミオカインを介した肝リポタンパク質代謝への影響 [33, 34].
8. 機能的なパラドックス:なぜコレステロールはエネルギー源ではないのか
脂質代謝における重要な概念上の区別は、一方で……であるのに対し、 中性脂肪 脂質は主要なエネルギー貯蔵源であり、β-酸化を経てATP生成のために分解されるが、コレステロールは断じてエネルギー源とはならない。四環式ステロール環系は極めて安定しており、脂肪酸鎖に見られるような高エネルギーのC–H結合を欠いている。 ヒトの細胞にはステロール環を切断する酵素経路が存在せず、コレステロールの炭素原子はTCA回路用のアセチルCoA単位として回収することはできない[1].
したがって、血中を循環するリポタンパク質には、以下の3つの非カロリー機能が備わっている:
- 構造的維持:循環しているコレステロールの主な行き先は細胞膜である。コレステロールはリン脂質の脂肪酸鎖の間に挿入され、二重層を凝縮させ、シグナル伝達受容体のプラットフォームとして機能する液体秩序(Lo)マイクロドメイン(「リポイドラフト」)を形成する [19]. この機能は膜密度に依存しており、トリグリセリドではこの機能を果たすことはできない。.
- 前駆体の分布:血中LDLは、副腎皮質におけるステロイド生成のための即時のステロール基質を供給する。全身のLDLプールを維持することで、体は、デ・ノボ合成を待つことなく、ACTH刺激から数分以内にコルチゾールおよびアルドステロンの産生を開始できるようにしている [12, 24].
- 恒常性維持のための緩衝作用:組織の損傷や急速な増殖の際、細胞は循環しているコレステロールを動員して緊急の膜生合成を行い、代謝需要が最大となる局面においてATPおよびNADPHを節約することができる [13].
8.1 ミトコンドリアにおけるコレステロールの蓄積:病理学的影響
コレステロールは細胞膜に不可欠ですが、ミトコンドリア内膜(IMM)に生理的濃度を超えて蓄積することは病理学的です。通常、IMMは細胞内で最もコレステロール濃度が低い膜であり、これは呼吸鎖が最適に機能するために必要な流動性とカルディオリピン含有量を維持するために不可欠な条件です [27]. IMM内のコレステロールが過剰になると、複合体Iおよび複合体IIIの活性が損なわれ、ミトコンドリア膜電位が低下し、ミトコンドリアへのグルタチオンの取り込みが減少するため、~に対する感受性が高まる。 活性酸素種 呼吸鎖の活動が部分的に結合していることによって生じる [27]. このメカニズムは、非アルコール性脂肪性肝炎から肝硬変への移行に関与していると考えられている。 脂肪肝 病気や、その脆弱性において 泡沫細胞 動脈硬化性の プラーク [27].
精度に関する2つの注意点:(a) IMMにおけるコレステロール蓄積の正確な病理学的閾値は、ヒトについて決定的な数値的記述を行うには十分に確立されていない。特定のmol%閾値を確定事実として引用するよりも、定性的な記述の方がより妥当である; また(b)関与するミトコンドリアのグルタチオン輸送体の正体については議論があり、直接的な再構成研究によってOGC/DICを介したGSH輸送説に異議が唱えられており、現時点では不確定である。.
9. 調節フィードバック:SREBP2ハブ
細胞内のコレステロール感知は、ステロール調節要素結合(SREB)を中心に起こっている。 プロテイン 2(SREBP2)は、小胞体(ER)に存在する膜結合型転写因子である [14]. 通常、ER内のコレステロール濃度は、細胞膜に比べて低いレベルに維持されている;; SREBP-2 ERのコレステロールがER膜脂質の約5 mol%に近づくと、処理速度は急激に低下する [15].
ER内のコレステロールがこの閾値を下回ると、SCAP–SREBP2複合体は、INSIG-1/INSIG-2保持タンパク質から解離し、これによりSCAPがSREBP2をゴルジ体へ輸送する。そこで、サイト1およびサイト2プロテアーゼが順次SREBP2を切断し、N末端の転写因子ドメインが放出されて核内への取り込みが可能となる[14]. 細胞核内では、SREBP2が以下の遺伝子の協調的な発現上昇を促進する:
- HMGCR (メバロン酸経路の律速酵素であるHMG-CoA還元酵素):体内での合成を促進する。.
- LDLR(LDL受容体):血液からの受容体を介したLDLの取り込みを促進する。.
- PCSK9:SREBP2によって逆説的に発現が誘導され、LDLRのリサイクルに対する負のフィードバックによる制限因子として機能する――そのメカニズムの基礎 PCSK9阻害薬 薬理学 [21].
ERコレステロールが約5 mol%まで上昇すると――これはRadhakrishnanらによって確立されたスイッチのような閾値である[15] 定量的膜生化学法を用いた解析によると、SCAPはINSIGによって小胞体(ER)内に保持され、SREBP2は不活性な状態を維持し、HMG-CoAレダクターゼは、INSIGを介したgp78 E3ユビキチンリガーゼの動員により、プロテアソームによる分解の対象となる [14, 15]. この双安定スイッチにより、細胞は必要不可欠な場合にのみ循環プールを利用できるようになります。.
10. 個人間の変動性と臨床的意義
10.1 ハイパー・シンセサイザー対ハイパー・アブソーバー
循環コレステロールプールに対する合成と吸収の相対的な寄与度は個人によって大きく異なり、これは臨床的に有用な区別である [28]. 「ハイパーシンセサイザー」は、一般集団の中央値と比較して、血漿中のラトステロール(合成マーカー)値が高く、カンペステロール/シトステロール(吸収マーカー)値が低い。 スタチンは、これらの患者においてLDL-Cを著明に低下させる。逆に、「ハイパー吸収型」は正反対の血漿ステロールプロファイルを示し、その腸管のNPC1L1トランスポーターが、食事由来および胆汁由来のコレステロールの両方を不釣り合いな割合で取り込む。 ハイパー吸収型患者では、代償的なNPC1L1の発現亢進が合成抑制を部分的に相殺するため、スタチンによるLDL-Cの低下効果が弱まる可能性がある。エゼチミブとの併用療法により、より完全な反応が回復する [28, 29].
「ハイパーシンセサイザー/ハイパーアブソーバー」の枠組みは生物学的に有用であり、非コレステロールステロールによって裏付けられている。 バイオマーカー データはあるものの、これはまだ普遍的に標準化され、ガイドラインで義務付けられた臨床分類法とはなっていない。すなわち、吸収マーカーの値が高いからといって、必ずしもLDL-Cの反応に差異が生じるとは限らない。特に家族性高コレステロール血症(FH)のコホートにおいては、その傾向が顕著である。この枠組みは、参考にはなるが、決定的なものではないとして提示すべきである。.
10.2 家族性高コレステロール血症とLDLR経路
家族性高コレステロール血症 (FH)は、ヒトにおいて最も一般的な重篤な単一遺伝子疾患であり、有病率はおよそ250~300人に1人である(最近のNLAのコンセンサス推定値によると、集団や診断基準によって異なるが、世界的な有病率は311人に1人程度とされている)[21]. FHは、LDLRの機能喪失型変異、PCSK9の機能獲得型変異、あるいは 病原性変異 APOBにおいては、これらすべてが受容体を介したLDLのクリアランスを阻害する [21]. 肝臓におけるLDLの取り込みが減少しているため、SREBP2は恒常的に活性状態を維持し、HMGCRの発現亢進を促すことで、外因性取り込みが障害されている状況下において、逆説的に肝臓での合成を増加させる [14]—この悪循環は、治療を行わないと、早期のASCVDを引き起こす。.
11. オキシステロール:コレステロール代謝における調節の層
オキシステロールは、組織や血漿中に存在する酸化コレステロール誘導体であり、その濃度はコレステロール自体よりも3~4桁低いにもかかわらず、ステロールの恒常性や免疫機能に対して、その濃度に見合わないほど大きな調節作用を及ぼしている [31, 32].
いくつかのオキシステロールは、内因性のINSIGリガンドとして、また、コレステロール逆輸送の機構であるABCA1、ABCG1、およびApoEの転写を誘導する核内受容体である肝X受容体(LXR)の活性化因子として機能する [31, 32]. したがって、オキシステロール(24(S),25-エポキシコレステロールや27-ヒドロキシコレステロールなど)によるLXRの活性化は、細胞内のステロール過剰状態とその除去との間にフィードフォワード結合を生み出す。 脳内では、ニューロンのCYP46A1によって生成される24(S)-ヒドロキシコレステロールは、第7.1節で述べたコレステロール排出機能を果たすだけでなく、NMDA型グルタミン酸受容体の正のアロステリックモジュレーターとしても作用し、コレステロールの代謝回転とシナプス可塑性を結びつけている [8].
12. 制限事項
ヒトのコレステロール代謝に関するいくつかの根本的な疑問は、依然として完全には解明されておらず、この点を念頭に置いてデータを解釈するよう注意を払う必要がある。.
- 全身のデ・ノボ合成量のうち、肝臓に由来する正確な割合は コレステロール合成. 現在入手可能なヒトのトレーサーデータによると、その値は約10~25%と示唆されているが、これは表現型に依存しており、生体内での測定は技術的に困難である。.
- ヒトの生涯にわたる組織特異的なブロッホフラックスと修正K-Rフラックスの比率。Mitscheら(2015)の研究はマウスを用いて行われたものであり、ヒトに関する直接的なデータは限られている。.
- コレステロールに関連するプロセスに関与するミトコンドリアのグルタチオン輸送体の正確な同定は、 酸化ストレス; 現在の証拠については議論が分かれています。.
- ヒトにおける病理学的IMMコレステロール閾値。モデル系で確立された正確なmol%閾値は、臨床現場に直接適用できない可能性がある。.
- 骨格筋量と血中LDL-Cとを結びつけるメカニズム――それがLPL活性、ミオカインシグナル伝達、あるいは インスリン 感受性によるLDLRの発現亢進 [33, 34].
- 定量的に重要な糞中ステロール排泄経路としての経腸性コレステロール排泄(TICE);さまざまな生理的および薬理学的条件下における胆汁排泄に対するその寄与については、ヒトを対象としたさらなる詳細な解明が必要である。.
13. 結論
ヒトのコレステロール代謝は、局所的な自給自足と全身的な相互依存という二重のシステムである。 ほとんどの細胞は、約30段階の経路を経てコレステロールをデ・ノボ合成しており、その代謝コストは相当なものである(主要な補因子による計算では約18 ATPおよび約16 NADPH。より広範な計算基準ではこれより高くなる)。このコストにより、循環コレステロールが利用可能な場合、ほとんどの末梢組織では受容体を介したLDLの優先的な取り込みが促進される。.
血中を循環するリポタンパク質は、コレステロールをエネルギー源として運搬するわけではない。LDLは、構造成分およびステロイド生成の前駆物質を蓄える可動性の貯蔵庫としての役割を果たす。一方、HDLは、逆コレステロール輸送を介して末梢のステロールを肝臓へ必然的に戻す役割を果たしており、これがステロール核を最終的に体外へ排出しうる唯一の経路である。.
ラノステロール生合成のその後の過程は、厳密な「ブロッホ対K-R」という二分法よりも、組織特異的なフラックススペクトルとして記述する方がより正確である。 肝臓では主に修飾されたカンドゥッチ・ラッセル型フラックスが、精巣と副腎では主にブロッホ型フラックスが利用されている。成体の脳全体については、フラックス解析において主に修飾されたK-R型に対応するが、アストロサイトや発達中のニューロンでは、ブロッホ型およびデスモステロール型の特徴がより強く現れており、これらは臓器全体像と混同すべきではない。 ヒトにおける組織ごとの取り込み対合成比の正確な数値は、ほとんどの末梢組織について完全には解明されていない。.
SREBP2スイッチ、過剰合成・過剰吸収スペクトル、PCSK9/LDLR軸、およびオキシステロール調節層を網羅するこのメカニズムに関する、臨床的に活用可能な理解こそが、スタチン、エゼチミブ、 PCSK9阻害薬、さらにはデ・ノボ合成や逆輸送を標的とする新規薬剤の中から、合理的な選択を行うための基盤となっている。.
参考文献
- Bloch K. The biological synthesis of cholesterol. Science. 1965;150(3692):19-28. doi:10.1126/science.150.3692.19
- Gaylor JL. Membrane-bound enzymes of cholesterol synthesis from lanosterol. Biochem Biophys Res Commun. 2002;292(5):1139-1146. doi:10.1006/bbrc.2001.2008
- Grundy SM. Absorption and metabolism of dietary cholesterol. Annu Rev Nutr. 1983;3:71-96. doi:10.1146/annurev.nu.03.070183.000443
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Dietschy JM, Turley SD. Control of cholesterol turnover in the mouse. J Biol Chem. 2002;277(6):3801-3804. doi:10.1074/jbc.R100057200
- Goodman DS, Noble RP, Dell RB. The effects of colestipol resin and of colestipol plus clofibrate on the turnover of plasma cholesterol in man. J Clin Invest. 1973;52(10):2646-2655. doi:10.1172/JCI107457
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Wang DQ. Regulation of intestinal cholesterol absorption. Annu Rev Physiol. 2007;69:221-248. doi:10.1146/annurev.physiol.69.031905.160725
- Bosner MS, Lange LG, Stenson WF, Ostlund RE Jr. Percent cholesterol absorption in normal women and men quantified with dual stable isotopic tracers and negative ion mass spectrometry. J Lipid Res. 1999;40(2):302-308.
- Russell DW. The enzymes, regulation, and genetics of bile acid synthesis. Annu Rev Biochem. 2003;72:137-174. doi:10.1146/annurev.biochem.72.121801.161712
- Miller WL, Auchus RJ. The molecular biology, biochemistry, and physiology of human steroidogenesis and its disorders. Endocr Rev. 2011;32(1):81-151. doi:10.1210/er.2010-0013
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Brown MS, Goldstein JL. The SREBP pathway: regulation of cholesterol metabolism by proteolysis of a membrane-bound transcription factor. Cell. 1997;89(3):331-340. doi:10.1016/s0092-8674(00)80213-5
- Radhakrishnan A, Goldstein JL, McDonald JG, Brown MS. Switch-like control of SREBP-2 transport triggered by small changes in ER cholesterol: a delicate balance. Cell Metab. 2008;8(6):512-521. doi:10.1016/j.cmet.2008.10.008
- Mitsche MA, McDonald JG, Hobbs HH, Cohen JC. Flux analysis of cholesterol biosynthesis in vivo reveals multiple tissue and cell-type specific pathways. Elife. 2015;4:e07999. Published 2015 Jun 26. doi:10.7554/eLife.07999
- KANDUTSCH AA, RUSSELL AE. Preputial gland tumor sterols. 3. A metabolic pathway from lanosterol to cholesterol. J Biol Chem. 1960;235:2256-2261.
- Porter FD, Herman GE. Malformation syndromes caused by disorders of cholesterol synthesis. J Lipid Res. 2011;52(1):6-34. doi:10.1194/jlr.R009548
- Simons K, Vaz WL. Model systems, lipid rafts, and cell membranes. Annu Rev Biophys Biomol Struct. 2004;33:269-295. doi:10.1146/annurev.biophys.32.110601.141803
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Abifadel M, Varret M, Rabès JP, et al. Mutations in PCSK9 cause autosomal dominant hypercholesterolemia. Nat Genet. 2003;34(2):154-156. doi:10.1038/ng1161
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- Glass C, Pittman RC, Weinstein DB, Steinberg D. Dissociation of tissue uptake of cholesterol ester from that of apoprotein A-I of rat plasma high density lipoprotein: selective delivery of cholesterol ester to liver, adrenal, and gonad. Proc Natl Acad Sci U S A. 1983;80(17):5435-5439. doi:10.1073/pnas.80.17.5435
- Tall AR. Cholesterol efflux pathways and other potential mechanisms involved in the athero-protective effect of high density lipoproteins. J Intern Med. 2008;263(3):256-273. doi:10.1111/j.1365-2796.2007.01898.x
- Rye KA, Barter PJ. Formation and metabolism of prebeta-migrating, lipid-poor apolipoprotein A-I. Arterioscler Thromb Vasc Biol. 2004;24(3):421-428. doi:10.1161/01.ATV.0000104029.74961.f5
- Garcia-Ruiz C, Mari M, Colell A, et al. Mitochondrial cholesterol in health and disease. Histol Histopathol. 2009;24(1):117-132. doi:10.14670/HH-24.117
- Miettinen TA, Gylling H. Cholesterol absorption efficiency and sterol metabolism in obesity. Atherosclerosis. 2000;153(1):241-248. doi:10.1016/s0021-9150(00)00404-4
- Sudhop T, Lütjohann D, Kodal A, et al. Inhibition of intestinal cholesterol absorption by ezetimibe in humans. Circulation. 2002;106(15):1943-1948. doi:10.1161/01.cir.0000034044.95911.dc
- Goldstein JL, Brown MS. A century of cholesterol and coronaries: from plaques to genes to statins. Cell. 2015;161(1):161-172. doi:10.1016/j.cell.2015.01.036
- Janowski BA, Willy PJ, Devi TR, Falck JR, Mangelsdorf DJ. An oxysterol signalling pathway mediated by the nuclear receptor LXR alpha. Nature. 1996;383(6602):728-731. doi:10.1038/383728a0
- Kalaany NY, Mangelsdorf DJ. LXRS and FXR: the yin and yang of cholesterol and fat metabolism. Annu Rev Physiol. 2006;68:159-191. doi:10.1146/annurev.physiol.68.033104.152158
- Vella CA, Nelson MC, Unkart JT, Miljkovic I, Allison MA. Skeletal muscle area and density are associated with lipid and lipoprotein cholesterol levels: The Multi-Ethnic Study of Atherosclerosis. J Clin Lipidol. 2020;14(1):143-153. doi:10.1016/j.jacl.2020.01.002
- Hong S, Chang Y, Jung HS, Yun KE, Shin H, Ryu S. Relative muscle mass and the risk of incident type 2 diabetes: A cohort study. PLoS One. 2017;12(11):e0188650. Published 2017 Nov 30. doi:10.1371/journal.pone.0188650

