A economia metabólica do colesterol humano
Análise de Síntese de novo, Lipoproteína Fluxo e aquisição de tecido periférico
1. Resumo
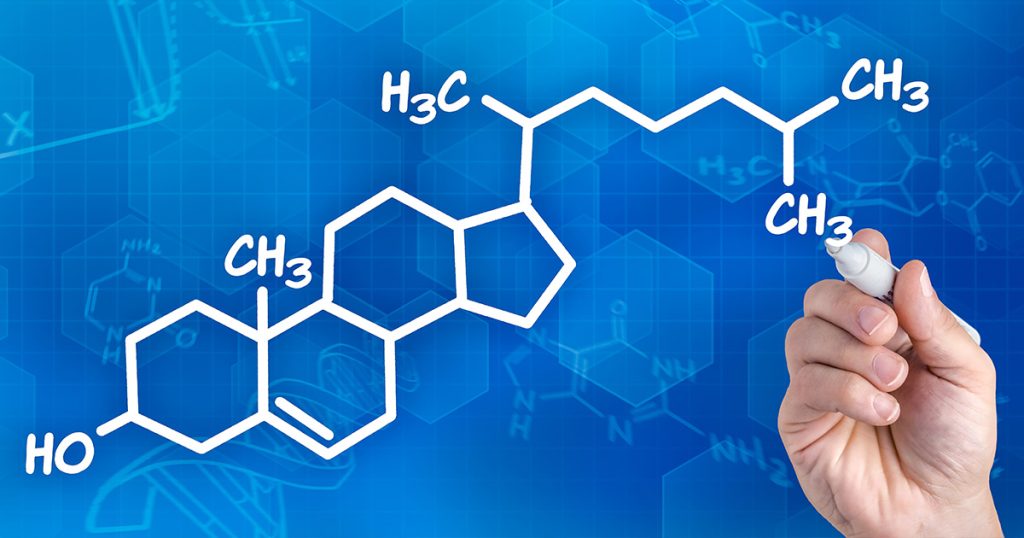
A regulação fisiológica de colesterol no corpo humano está entre os exemplos mais sofisticados de homeostase metabólica na biologia dos mamíferos. O colesterol, um composto tetracíclico esterol, é indispensável para a vida eucariótica — atuando como pedra angular da estrutura das membranas celulares, substrato para os hormônios esteróides e ácido biliar síntese e uma estrutura para plataformas de sinalização transmembranar. Os tecidos periféricos não conseguem clivar o núcleo esteróide do colesterol; a conversão hepática em ácidos biliares é, portanto, a única via de eliminação desses ácidos, enquanto a eliminação de esteróis neutros também inclui as vias de excreção biliar e transintestinal.
Toda célula nucleada possui o aparato enzimático necessário para sintetizar o colesterol de novo a partir do acetil-CoA, por meio de uma via de aproximadamente 30 etapas. O alto custo energético dessa síntese leva a uma síntese preferencial mediada por receptores LDL absorção na maioria dos tecidos quando há colesterol circulante disponível. Este relatório examina a distribuição quantitativa do colesterol nos tecidos humanos, caracteriza a utilização das vias biossintéticas específicas de cada tecido à luz de dados definitivos de análise de fluxo e contextualiza a arquitetura regulatória que mantém a homeostase dos esteróis.
2. Introdução
O colesterol ocupa uma posição singular na bioquímica dos mamíferos. Ao contrário da maioria dos metabólitos, que são oxidados para gerar energia ou polimerizados em complexos macromoleculares, o colesterol é tratado como um recurso estrutural duradouro. O sistema de anéis esteróis é extraordinariamente estável; nenhuma via enzimática nas células humanas é capaz de clivá-lo para recuperar os átomos de carbono como combustível oxidável. A eliminação é, portanto, um processo indireto, realizado no fígado, que envolve a conversão em ácidos biliares (por meio de CYP7A1 e vias secundárias) ou excreção direta na bile [11].
A importância clínica do colesterol é amplamente reconhecida. Concentrações elevadas de colesterol LDL (LDL-C) e, mais precisamente, elevadas número de partículas de LDL conforme quantificado no plasma apolipoproteína B (ApoB), estão causalmente associados à aterosclerose doença cardiovascular (ASCVD) em uma ampla base de Randomização mendeliana, evidências epidemiológicas e de intervenção [20]. Uma compreensão precisa do mecanismo subjacente do metabolismo do colesterol tem implicações terapêuticas diretas: ela explica por que hiper-sintetizadores responder com firmeza a Redutase de HMG-CoA inibidores (estatinas) mas reage mal à restrição alimentar, enquanto hiperabsorventes apresentam o padrão inverso e se beneficiam da flora intestinal NPC1L1 bloqueio com ezetimiba [28, 29]. Isso também explica por que PCSK9 inibição — ao impedir a modificação pós-traducional Receptor de LDL (LDLR) a degradação amplifica a depuração hepática do LDL independentemente do via do mevalonato [21].
3. O Enquadramento Quantitativo do Colesterol Total no Organismo
Em um adulto saudável, o colesterol total no organismo é de aproximadamente 2.100 mg por quilograma de peso corporal [6]. Para um indivíduo de 70 kg, isso corresponde a um estoque de aproximadamente 147 gramas. Mais de 90% desse estoque está presente nas membranas celulares, onde o colesterol modula a fluidez da bicamada e organiza microdomínios enriquecidos em colesterol (‘jangadas lipídicas’) que atuam como plataformas para receptores de tirosina quinase e receptores acoplados a proteínas G [19].
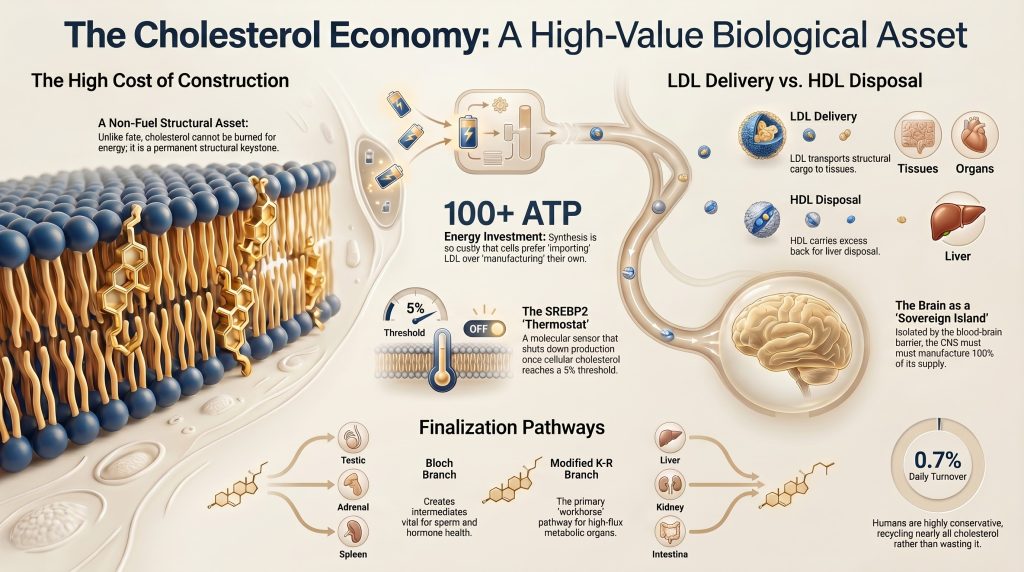
O balanço líquido diário de colesterol reflete a síntese endógena, a ingestão alimentar, a reabsorção do colesterol biliar e a perda fecal de esteróis neutros e ácidos; ele não deve ser reduzido a uma simples dicotomia entre síntese e absorção alimentar. A renovação do colesterol em todo o corpo humano é de aproximadamente 0,71 TP9T por dia — o que equivale a cerca de 0,8–1,2 gramas por dia em um adulto de 70 kg [5, 6]. Em contrapartida, os camundongos renovam diariamente cerca de 7–9% do colesterol total do corpo [5] — uma diferença com implicações importantes para a transferibilidade dos resultados de estudos sobre a redução de lipídios em roedores para os resultados em seres humanos.
Tabela 1. Balanço diário de colesterol em um adulto saudável sob condições alimentares típicas do Ocidente.
Nota: Esta tabela apresenta os fluxos estabelecidos no ciclo do colesterol humano. A absorção alimentar não é simplesmente o ‘outro lado’ da síntese de novo; ela reflete um processo intestinal de várias etapas que envolve a secreção biliar, a mistura luminal, a captação mediada pelo NPC1L1 e a recirculação biliar parcial.
| Parâmetro | Valor típico / Intervalo | Nota interpretativa | Referência principal |
| Colesterol total | ~2.100 mg/kg de peso corporal; ~147 g em um adulto de 70 kg | Grande maioria (>90%) nas membranas; o restante nas lipoproteínas circulantes | Goodman et al., 1973 [6] |
| Renovação diária de todo o corpo | ~0,71 TP9T/dia (~0,8–1,2 g/dia em um adulto de 70 kg) | Significativamente menor do que a dos roedores (~7–91 TP9T/dia); o que sugere uma economia de esteróis muito conservadora em humanos | Dietschy & Turley 2002 [5]; Goodman et al., 1973 [6] |
| Síntese de novo | 700–900 mg/dia em adultos saudáveis (variabilidade interindividual significativa) | Não se trata de um simples contrapeso à absorção alimentar; reflete a síntese em todo o corpo, em todos os tecidos | Grundy 1983 [3] |
| – Contribuição hepática | ~10–25% de síntese total | A maior parte tem origem em tecidos extra-hepáticos; a proporção exata varia de acordo com o fenótipo e o método | Dietschy et al., 1993 [4]; Dietschy & Turley 2002 [5] |
| Colesterol alimentar admissão | Geralmente, cerca de 200–500 mg/dia (dependendo da população e da época) | A média populacional varia amplamente; não é um fator determinante do LDL-C plasmático na maioria dos indivíduos devido à supressão compensatória do SREBP2 | Wang 2007 [9] |
| O colesterol intestinal apresentou-se como lúmen | ~1.400–1.700 mg/dia (alimentação + bile + células epiteliais descamadas) | A contribuição biliar é predominante; a fração alimentar representa uma parcela menor da carga luminal | Wang 2007 [9]; Russell 2003 [11] |
| Absorção intestinal fracionária | Altamente variável: 29,0–81,11 TP9T, média de 56,21 TP9T em indivíduos saudáveis | A variação interindividual é grande; o genótipo do NPC1L1 é um dos principais fatores determinantes | Bosner et al., 1999 [10] |
| Secreção biliar de colesterol | ~800–1.200 mg/dia | Fonte primária de colesterol luminal; a maior parte é reabsorvida; a fração não reabsorvida é excretada na forma de esteróis neutros | Russell 2003 [11] |
| Síntese de ácidos biliares | ~400 mg/dia (estimativa clássica aproximada) | Única via de eliminação dos ácidos biliares; as vias biliar e transintestinal contribuem para a eliminação total dos esteróis neutros | Russell 2003 [11] |
| Perda total de esteróis fecais | ~0,7–1,0 g/dia (variação ampla) | É preciso distinguir entre esteróis neutros e esteróis ácidos; excreção transintestinal de colesterol (TICE) contribui, além da perda biliar | Russell 2003 [11] |
| Síntese de hormônios esteróides | ~50 mg/dia (estimativa histórica aproximada) | Fonte pouco confiável; apresentado apenas como uma aproximação de ordem de grandeza | Miller & Auchus 2011 [12] |
Todos os valores representam intervalos fisiológicos em condições metabólicas normais. Esses valores sofrem alterações substanciais em casos de dislipidemia, doença hepática ou intervenção farmacológica. A proporção exata da síntese hepática depende do método utilizado; o intervalo 10–25% reflete dados obtidos com traçadores em seres humanos.
4. O imperativo energético: a síntese de novo como um ativo oneroso
A via completa do acetil-CoA ao colesterol compreende aproximadamente 30 etapas enzimáticas [1]. Ele se divide em duas fases principais:
- A fase pré-lanosterol (~11 etapas): abrange a via do mevalonato propriamente dita (6 etapas enzimáticas específicas, desde o acetil-CoA até o isopentenil pirofosfato [IPP]), passando pela síntese do esqualeno e pela ciclização oxidativa até o lanosterol [1].
- A fase pós-lanosterol (~19 etapas): a conversão do lanosterol em colesterol por meio de ramos biossintéticos divergentes, caracterizados por Bloch (1965) [1] e Kandutsch & Russell (1960) [17].
4.1 Custo bioenergético: uma análise detalhada
A biossíntese do colesterol consome muita energia. As estimativas mais citadas apontam para aproximadamente 18 ATP e 16 NADPH por molécula a partir do acetil-CoA, levando em conta apenas os cofatores da via principal (etapas da mevalonato quinase e da HMG-CoA redutase). Esses são os valores reconhecidos na maioria dos livros didáticos de bioquímica [1]. Convenções contábeis mais amplas — que incluem, além disso, o NADPH pós-lanosterol consumido durante as três etapas de desmetilação oxidativa e as reduções do anel do lanosterol para o colesterol — resultam em valores mais elevados (aproximadamente 26 NADPH no total ao longo de toda a via [2]) não há uma resposta única universalmente aceita [2]. Quando o custo de oportunidade de 18 moléculas de acetil-CoA (energia perdida na β-oxidação) e de todos os equivalentes redutores é convertido em unidades equivalentes a ATP, o investimento total por molécula de colesterol ultrapassa substancialmente 100 equivalentes de ATP. Isso explica por que as células preferem fortemente a captação de LDL mediada por receptores em vez da síntese de novo quando há colesterol circulante disponível [13].
4.2 A PCSK9 e o ciclo do receptor de LDL
O LDLR medeia a endocitose mediada por receptor de partículas de LDL contendo ApoB-100. Após entregar sua carga lipídica aos lisossomos, o receptor é reciclado para a superfície do hepatócito, a fim de realizar novas rodadas de ligação ao LDL. Convertase de proproteína A subtilisina/kexina tipo 9 (PCSK9) interrompe essa reciclagem ao se ligar ao LDLR no endossomo e direcioná-lo para a degradação lisossômica, em vez de levá-lo de volta à superfície [21].
As variantes de perda de função no gene PCSK9 estão associadas a níveis mais baixos de LDL-C ao longo da vida e a reduções substanciais no risco coronariano, mas a magnitude da proteção varia de acordo com o tipo de variante e a população [21]. Inibidores da PCSK9 à base de anticorpos monoclonais (evolocumabe, alirocumabe) reduzem o LDL-C em 50–65%, além da terapia com estatinas, e reduzem significativamente eventos cardiovasculares adversos maiores em pacientes de alto risco [22, 23]. Esse mecanismo é aditivo à inibição da HMG-CoA redutase mediada pelas estatinas e não depende da via do mevalonato.
5. Variações nas vias metabólicas: ramos de Bloch e de Kandutsch–Russell
A biossíntese do colesterol pós-lanosterol é melhor descrita como um espectro de fluxos específicos de cada tecido, que ocorrem pelas vias de Bloch dominante e pelas vias modificadas de Kandutsch–Russell, em vez de uma escolha binária estrita entre as vias canônicas de Bloch e as vias canônicas de K-R.
A distribuição tecidual dessas vias foi caracterizada de forma definitiva por Mitsche, McDonald, Hobbs e Cohen [16] por meio da análise do fluxo de isótopos estáveis em 15 tecidos murinos in vivo. Sua principal constatação é que a via K-R canônica não foi observada como a via intacta dominante em nenhum tecido; em vez disso, eles descreveram um modelo K-R modificado, no qual o fígado e o rim apresentavam predominantemente fluxo K-R modificado, enquanto os testículos e as glândulas supra-renais apresentavam predominância da via de Bloch. Qualquer resumo que apresente o fígado, o rim e o intestino como locais de predominância da via K-R canônica como uma regra estabelecida para mamíferos deturpa tanto as conclusões dos autores quanto algumas atribuições específicas aos tecidos.
5.1 Via de Bloch (por meio do desmosterol)
O Via de Bloch ocorre por meio do desmosterol (lanosterol → … → desmosterol → colesterol via DHCR24). Predomina em tecidos nos quais o próprio intermediário desmosterol desempenha uma função biológica. Os testículos são o exemplo mais claro: o desmosterol se acumula nas cabeças dos espermatozoides maduros, onde suas propriedades biofísicas distintas em relação ao colesterol facilitam a remodelação da membrana necessária para a capacidade de fertilização [16, 18].
Tecidos com predominância de células de Bloch na análise de Mitsche et al.: testículos, glândulas adrenais e baço. Por outro lado, estudos específicos por tipo de célula no cérebro demonstram que astrócitos e os neurônios em desenvolvimento utilizam preferencialmente a síntese de Bloch/desmosterol. No entanto, o tecido cerebral total de adultos, na mesma análise de Mitsche et al., apresentou predominantemente o fluxo K-R modificado. Essas duas constatações não devem ser confundidas: as evidências relativas ao tecido cerebral total de adultos e às células neurais de tipos específicos devem ser apresentadas separadamente.
5.2 Via de Kandutsch–Russell modificada (por meio do 7-DHC / lathosterol)
A via K-R modificada ocorre por meio do 7-dehidrocolesterol (7-DHC) e do lathosterol (lanosterol → … → 7-DHC → colesterol via DHCR7). O fígado de camundongos adultos, na análise de Mitsche et al., apresentou predominantemente um fluxo da via K-R modificada. Isso é clinicamente importante: a deficiência de DHCR7 causa Síndrome de Smith–Lemli–Opitz, em que o acúmulo tóxico de 7-DHC afeta todos os tecidos modificados com predominância de K-R [18]. Na pele, o 7-DHC é o precursor imediato da vitamina D₃ após a irradiação com raios UVB, conferindo ao ramo K-R modificado um papel fotobiológico distinto [18].
A DHCR24 e a DHCR7 são as redutases terminais que definem um importante ramo da química, mas o fluxo nos tecidos é mais flexível e ramificado do que sugere um diagrama binário estrito da via metabólica [16].
Tabela 2. Distribuição da via biossintética pós-lanosterol por tecido (corrigida de acordo com Mitsche et al., 2015 [16]).
| Ramo do Caminho | Tecidos nos quais esse ramo é predominante (em Mitsche et al. 2015 [16]) | Fundamentos biológicos e ressalvas |
| Bloch (por meio do desmosterol) | Testículos, glândulas supra-renais, baço; astrócitos e neurônios em desenvolvimento (estudos de tipos celulares) | O desmosterol (o penúltimo intermediário da via de Bloch) possui propriedades biofísicas distintas, importantes na espermatogênese. Estudos em astrócitos e neurônios em desenvolvimento indicam um fluxo preferencial de Bloch/desmosterol. O tecido cerebral adulto, no entanto, apresentou predominantemente um fluxo K-R modificado na análise em camundongos realizada por Mitsche et al. |
| Kandutsch–Russell modificado (via 7-DHC/lathosterol) | Fígado, rim, glândula prepucial, intestino; tecido cerebral completo de adultos (em Mitsche et al.) | Predominante em órgãos metabólicos de alto fluxo. Mitsche et al. descreveram isso como uma via ‘K-R modificada’ — a via K-R canônica não foi observada como a via intacta dominante em nenhum tecido. O fígado utiliza predominantemente o fluxo K-R modificado, e não a via de Bloch. A deficiência de DHCR7 (síndrome de Smith–Lemli–Opitz) demonstra a importância clínica desse ramo. |
| Misto / depende do contexto | Pele, músculo esquelético, coração, pulmão | Essa proporção varia de acordo com o estágio de desenvolvimento, a oxigenação e o contexto hormonal. Na pele, o 7-DHC intermediário da via K-R é o precursor fotoquímico direto da vitamina D₃. O fluxo nos tecidos é melhor descrito como um espectro flexível do que como uma escolha binária rígida. |
Os dados provêm da análise do fluxo de isótopos estáveis em 15 tecidos murinos [16]. A distribuição nos tecidos humanos é inferida com base na homologia enzimática; ‘K-R modificado’ refere-se à terminologia própria de Mitsche et al. — o K-R canônico não foi observado como a via intacta predominante em nenhum tecido.
6. Dinâmica das lipoproteínas: o sistema de logística sistêmica
Como as células são capazes de sintetizar seu próprio colesterol, as lipoproteínas circulantes desempenham três funções principais: (1) redistribuição de recursos de tecidos com excesso de síntese para tecidos com déficit de síntese; (2) amortecimento metabólico para poupar ATP e NADPH celulares durante estados de alta demanda energética; e (3) transporte reverso e eliminação do excesso de esteróis periféricos, evitando o acúmulo em macrófagos e aterogênese [25]. O colesterol é altamente lipofílico e insolúvel no plasma aquoso; ele precisa ser incorporado a partículas de lipoproteínas anfipáticas, juntamente com fosfolipídios e apolipoproteínas, que conferem especificidade à ligação aos receptores [30].
6.1 A cascata VLDL–IDL–LDL
VLDL as partículas são sintetizadas nos hepatócitos e secretadas para a circulação venosa hepática (sistêmica), onde lipase lipoproteica (LPL), quando ligada às superfícies endoteliais, hidrolisa progressivamente o núcleo de triglicerídeos, remodelando a VLDL por meio da lipoproteína de densidade intermediária (IDL) até que reste apenas a partícula de LDL empobrecida em triglicerídeos e enriquecida em ésteres de colesterol [30]. Cada partícula de LDL transporta um único ApoB-100 molécula; portanto, a concentração plasmática de ApoB é um índice mais preciso de partícula aterogênica carga do que a massa de colesterol LDL, que não leva em conta a heterogeneidade do tamanho das partículas [20]. Aproximadamente 60–70% da massa de colesterol circulante é transportada pela fração LDL [30].
6.2 HDL e transporte reverso de colesterol
As partículas de lipoproteína de alta densidade facilitam o retorno do excesso de colesterol periférico ao fígado por meio de transporte reverso de colesterol (RCT). ABCA1 media a transferência inicial de colesterol e fosfolipídios celulares para a apoA-I, pobre em lipídios, formando uma estrutura discoidal nascente HDL partículas. A ABCG1 promove uma maior eliminação do colesterol, principalmente para partículas de HDL mais maduras e ricas em lipídios; trata-se de grupos de aceitadores iniciais distintos, com funções que não se sobrepõem [26]. A lecitina-colesterol aciltransferase (LCAT), ativada pela ApoA-I, esterifica então o colesterol adquirido, promovendo um efluxo líquido em termos termodinâmicos e convertendo os discos nascentes em HDL esféricas maduras [26].
O colesterol é devolvido ao fígado por meio da captação seletiva mediada pelo SR-BI ou por meio da troca mediada pela CETP para partículas contendo ApoB posteriormente eliminado pela LDLR. O fígado converte o colesterol devolvido em ácidos biliares (primários: ácido cólico, ácido quenodeoxicólico) por meio da CYP7A1, ou o excreta diretamente na bile para a eliminação do esterol neutro [11]. A excreção transintestinal de colesterol (TICE) constitui uma via adicional de eliminação fecal que não depende da secreção biliar.
6.3 SR-BI e captação seletiva em tecidos esteroidogênicos
O SR-BI (receptor scavenger da classe B, tipo I) medeia a captação seletiva de ésteres de colesterila tanto do HDL quanto do LDL, sem degradação concomitante da partícula de lipoproteína. O SR-BI é altamente expresso no córtex adrenal e nas gônadas e é regulado positivamente pelo ACTH na glândula adrenal, criando um mecanismo de retroalimentação positiva que acopla a demanda hormonal ao suprimento de esteróis circulantes [24]. No entanto, a predominância do SR-BI como via de captação esteroidogênica está mais bem estabelecida na glândula adrenal de roedores do que na glândula adrenal humana; em humanos, a captação de LDL mediada pelo LDLR continua sendo especialmente importante, e a via HDL–SR-BI parece menos dominante do que em roedores. Ambas as vias contribuem, e deve-se evitar a generalização excessiva dos dados sobre o SR-BI em roedores para os seres humanos.
7. Perfis de aquisição de colesterol específicos por tecido
O grau em que um tecido depende do colesterol circulante em comparação com a síntese interna reflete seu papel metabólico, acesso vascular e capacidade biossintética. A Tabela 3 abaixo apresenta perfis qualitativos dos tecidos; as porcentagens específicas de importação versus síntese para a maioria dos tecidos periféricos (músculo, tecido adiposo, pele) não foram estabelecidas por evidências diretas de traçadores em humanos e não devem ser consideradas valores definitivos.
Tabela 3. Perfis qualitativos de aquisição de colesterol nos tecidos.
| Tecido | Perfil de aquisição do colesterol e papel funcional |
| Cérebro (SNC) | Essencialmente autossuficiente em relação ao colesterol em condições normais de adultos; o influxo de colesterol de lipoproteínas no plasma através da barreira hematoencefálica é insignificante. Todo o colesterol é sintetizado localmente, principalmente pelos astrócitos, e distribuído aos neurônios por meio de lipoproteínas do líquido cefalorraquidiano que contêm ApoE. A divisão exata entre síntese e captação não pode ser quantificada de forma confiável por meio das porcentagens das frações teciduais em seres humanos. |
| Córtex adrenal | Grande dependência do colesterol derivado de lipoproteínas plasmáticas; em humanos, a captação de LDL mediada pelo LDLR é especialmente importante, sendo o SR-BI também relevante (mas a predominância do SR-BI está mais bem estabelecida na glândula adrenal de roedores do que na glândula adrenal humana). Sob estimulação aguda com ACTH, >80% do colesterol precursor de esteróides é derivado de lipoproteínas circulantes. As reservas intracelulares de ésteres de colesterol (reguladas por ACAT/HSL) atuam como um amortecedor. |
| Fígado | Centro nevrálgico: realiza a captação de LDL mediada por receptores, a síntese de novo, a secreção de VLDL, a síntese de ácidos biliares e a excreção biliar. A contribuição fracionária exata para a síntese de novo em todo o corpo varia de acordo com a fonte e o método (~10–25% em dados de estado estacionário em humanos). Utiliza predominantemente o fluxo biossintético K-R modificado. As porcentagens precisas de importação versus síntese dependem do método. |
| Intestino | Órgão principal tanto para a absorção de colesterol (mediada pela NPC1L1 a partir do lúmen) quanto para a síntese de novo. Também participa da excreção de colesterol por meio da excreção transintestinal de colesterol (TICE), que contribui para a perda de esteróis nas fezes independentemente da secreção biliar. Modifica predominantemente o fluxo biossintético K-R. |
| Gônadas | Utiliza-se uma mistura de síntese de novo, reservas intracelulares de ésteres de colesterol (mobilizadas pela HSL) e lipoproteínas plasmáticas (tanto pela via da LDLR quanto pela via da SR-BI). As porcentagens exatas dependem do contexto e são reguladas de forma aguda pelas gonadotrofinas (LH/FSH). A via de Bloch é predominante nos testículos. |
| Músculo esquelético, tecido adiposo, pele | É importante para o equilíbrio do colesterol em todo o corpo devido à sua grande massa, mas as proporções exatas entre importação e síntese em humanos não estão estabelecidas sem evidências diretas obtidas por meio de traçadores. Estimativas gerais sugerem uma dependência predominante da síntese local em condições normais, mas não se deve atribuir porcentagens específicas a elas sem citar o estudo primário com traçadores que as comprove em humanos. |
As descrições qualitativas refletem o consenso obtido em estudos com seres humanos e animais. Não há dados precisos sobre as porcentagens atribuídas aos tecidos periféricos (músculo esquelético, tecido adiposo, pele) com base em evidências diretas de marcadores em seres humanos; ver Dietschy et al. 1993 [4] e Goodman et al., 1973 [6] para dados cinéticos primários disponíveis. O fluxo tecidual varia substancialmente sob inflamação, doenças metabólicas, hipóxia e intervenção farmacológica.
7.1 Cérebro: Autossuficiência
O SNC contém aproximadamente 20–25% do colesterol total do corpo, apesar de representar apenas cerca de 2% da massa corporal [7]. A barreira hematoencefálica (BHE), formada por junções apertadas entre as células cerebrais células endoteliais exclui o colesterol ligado às lipoproteínas da circulação sistêmica; o influxo líquido de colesterol plasmático através da barreira hematoencefálica (BHE) em adultos é insignificante [7, 8]. O cérebro precisa, portanto, sintetizar todo o seu próprio colesterol, tarefa realizada principalmente pelos astrócitos, que transferem o colesterol para os neurônios por meio de lipoproteínas contendo ApoE no líquido cefalorraquidiano [8].
O colesterol do cérebro é eliminado principalmente por meio da conversão em oxiesteróis, especialmente o 24(S)-hidroxicolesterol, por meio do CYP46A1 neuronal (colesterol 24-hidroxilase). Medições diretas da diferença arteriovenosa na veia jugular sugerem uma exportação cerebral de aproximadamente 2–3 mg/dia; estimativas indiretas mais antigas sugeriam 4–7 mg/dia. Trata-se de uma faixa de estimativa que depende do método utilizado — não de um único valor fixo [8]. As bainhas de mielina são as estruturas de membrana mais ricas em colesterol na biologia dos mamíferos; o colesterol constitui aproximadamente 25–40% do total de lipídios da mielina (a fração exata depende da espécie, da região e do método de medição) [7].
7.2 Tecidos esteroidogênicos: consumidores de alto fluxo dependentes de importação
O córtex adrenal e as gônadas necessitam de colesterol como substrato exclusivo para a síntese de hormônios esteróides por meio da via de importação mitocondrial mediada pela proteína StAR [12]. Sob estimulação aguda com ACTH, mais de 80% do colesterol consumido na esteroidogênese é derivado das lipoproteínas circulantes [24]. As reservas intracelulares de ésteres de colesterol (esterificação mediada pela ACAT, mobilização mediada pela HSL) constituem um reservatório de rápida disponibilidade.
7.3 Músculo esquelético, tecido adiposo e pele
Esses tecidos, em conjunto, representam a maior massa do corpo e, portanto, uma grande fração absoluta do estoque de colesterol; no entanto, sua taxa de renovação diária é baixa, e a maior parte do colesterol é sintetizada localmente. Estimativas gerais provenientes de estudos com traçadores em animais sugerem alta dependência da síntese de novo em condições normais; no entanto, as porcentagens in vivo de importação versus síntese para esses tecidos em humanos não estão estabelecidas com a precisão que uma tabela de números específicos implica. Sua contribuição para o metabolismo lipídico sistêmico também é indireta: uma maior massa muscular esquelética está epidemiologicamente associada a níveis mais baixos de LDL-C circulante, possivelmente por meio de atividade elevada da LPL e melhora sensibilidade à insulina (que aumenta a expressão do LDLR no fígado) ou efeitos mediados por miocinas no metabolismo das lipoproteínas hepáticas [33, 34].
8. O paradoxo funcional: por que o colesterol não é um combustível
Uma distinção conceitual fundamental no metabolismo lipídico é que, embora triglicerídeos são a principal reserva energética lipídica e são catabolizados por meio da β-oxidação para a geração de ATP; o colesterol, por sua vez, categoricamente não serve como combustível. O sistema de anéis tetracíclicos do esteróide é extraordinariamente estável e não possui as ligações C–H de alta energia características das cadeias acílicas graxas. As células humanas não possuem nenhuma via enzimática para a clivagem do anel de esteróide; os átomos de carbono do colesterol não podem ser recuperados como unidades de acetil-CoA para o ciclo de Krebs [1].
As lipoproteínas circulantes, portanto, desempenham três funções não calóricas:
- Manutenção estrutural: O principal destino do colesterol circulante é a membrana plasmática. O colesterol se intercala entre as cadeias acílicas dos fosfolipídios, condensando a bicamada e organizando microdomínios de ordem líquida (Lo) (‘jangadas lipídicas’) que servem como plataformas para receptores de sinalização [19]. Essa função depende da densidade da membrana e não pode ser desempenhada pelos triglicerídeos.
- Distribuição dos precursores: O LDL circulante fornece o substrato de esteróis imediato para a esteróideogênese adrenocortical. Ao manter um estoque sistêmico de LDL, o organismo garante que a produção de cortisol e aldosterona possa ser iniciada poucos minutos após a estimulação com ACTH, sem precisar aguardar a síntese de novo [12, 24].
- Amortecimento homeostático: Durante uma lesão tecidual ou proliferação rápida, as células podem recrutar o colesterol circulante para a biogênese de membrana de emergência, conservando o ATP e o NADPH em um momento de demanda metabólica máxima [13].
8.1 Acúmulo de colesterol mitocondrial: consequências patológicas
Embora o colesterol seja indispensável na membrana plasmática, seu acúmulo na membrana mitocondrial interna (MMI) acima das concentrações fisiológicas é patológico. A MMI é normalmente a membrana com menor teor de colesterol da célula — condição necessária para manter a fluidez e o teor de cardiolipina necessários para o funcionamento ideal da cadeia respiratória [27]. O excesso de colesterol IMM prejudica a atividade dos complexos I e III, reduz o potencial de membrana mitocondrial e diminui a importação de glutationa para as mitocôndrias, aumentando a vulnerabilidade a espécies reativas de oxigênio gerada pela atividade parcialmente acoplada da cadeia respiratória [27]. Esse mecanismo tem sido associado à transição da esteatohepatite para a cirrose na doença não alcoólica fígado gorduroso da doença e na vulnerabilidade de células espumosas em aterosclerótico placas [27].
Duas ressalvas sobre a precisão: (a) o limiar patológico exato para o acúmulo de colesterol no IMM não está estabelecido com clareza suficiente para uma afirmação numérica decisiva em humanos — uma descrição qualitativa é mais defensável do que citar limiares específicos de mol% como fato estabelecido; e (b) a identidade do transportador mitocondrial de glutationa envolvido é objeto de debate — um estudo de reconstituição direta contestou o transporte de GSH mediado por OGC/DIC — e isso permanece incerto até o momento.
9. Retroalimentação regulatória: o centro de regulação do SREBP2
A detecção do colesterol celular está centrada na ligação ao Elemento Regulador de Esteróis-B (SREB) Proteína 2 (SREBP2), um fator de transcrição ligado à membrana no retículo endoplasmático (RE) [14]. O colesterol do retículo endoplasmático é mantido em níveis baixos em relação à membrana plasmática em condições normais; SREBP-2 o processamento cai abruptamente quando o colesterol do ER se aproxima de aproximadamente 5 mol% dos lipídios da membrana do ER [15].
Quando o colesterol no retículo endoplasmático (ER) fica abaixo desse limiar, o complexo SCAP–SREBP2 se dissocia das proteínas de retenção INSIG-1/INSIG-2, permitindo que o SCAP conduza o SREBP2 até o Golgi, onde as proteases do sítio 1 e do sítio 2 clivam sequencialmente o SREBP2, liberando o domínio N-terminal do fator de transcrição para importação nuclear [14]. No núcleo, o SREBP2 promove a regulação positiva coordenada de:
- HMGCR (HMG-CoA redutase, a enzima limitante da velocidade da via do mevalonato): para aumentar a síntese interna.
- LDLR (receptor de LDL): para aumentar a captação de LDL mediada pelo receptor a partir do sangue.
- PCSK9: paradoxalmente regulada positivamente pelo SREBP2 como um limitador de retroalimentação negativa na reciclagem do LDLR — a base mecânica para Inibidor da PCSK9 farmacologia [21].
Quando o colesterol ER atinge aproximadamente 5 mol% — um limiar do tipo “interruptor” estabelecido por Radhakrishnan et al. [15] por meio de bioquímica quantitativa de membrana — o SCAP é retido no RE pela INSIG, o SREBP2 permanece inativo e a HMG-CoA redutase é direcionada para a degradação proteossômica por meio do recrutamento da ligase de ubiquitina E3 gp78, mediado pela INSIG [14, 15]. Esse interruptor biestável garante que as células utilizem o estoque circulante apenas quando necessário.
10. Variabilidade interindividual e implicações clínicas
10.1 Hiper-sintetizadores versus hiper-absorvedores
Os indivíduos apresentam diferenças substanciais na contribuição relativa da síntese e da absorção para o seu estoque de colesterol circulante — uma distinção clinicamente relevante [28]. Os ‘hipersintetizadores’ apresentam níveis elevados de lathosterol plasmático (um marcador de síntese) e níveis reduzidos de campesterol/sitosterol (marcadores de absorção) em relação às medianas da população. As estatinas produzem reduções robustas do LDL-C nesses pacientes. Por outro lado, os ‘hiperabsorvedores’ apresentam o perfil plasmático de esteróis oposto; seu transportador intestinal NPC1L1 captura uma fração desproporcional tanto do colesterol alimentar quanto do biliar. Nos hiperabsorventes, as estatinas podem produzir reduções atenuadas do LDL-C porque a regulação compensatória do NPC1L1 para cima contrabalança parcialmente a inibição da síntese; a terapia combinada com ezetimiba restaura uma resposta mais completa [28, 29].
A estrutura do hipersintetizador/hiperabsorvedor é biologicamente útil e é sustentada por um esterol não colesterol biomarcador dados, mas ainda não se trata de uma taxonomia clínica universalmente padronizada e exigida por diretrizes: marcadores de absorção mais elevados nem sempre predizem respostas diferenciadas do LDL-C, especialmente em coortes de HF. A estrutura deve ser apresentada como útil, mas não determinística.
10.2 Hipercolesterolemia familiar e a via do LDLR
Hipercolesterolemia familiar (FH) é a doença monogênica grave mais comum em seres humanos; a prevalência é de aproximadamente 1 em 250–300 (uma estimativa recente do consenso da NLA aponta para uma prevalência global próxima a 1 em 311, dependendo da população e da definição diagnóstica) [21]. A FH é causada por mutações com perda de função no gene LDLR, mutações com ganho de função no gene PCSK9 ou variantes patogênicas na APOB, fatores que prejudicam a eliminação do LDL mediada por receptores [21]. Como a captação hepática de LDL está reduzida, o SREBP2 permanece constitutivamente ativo, promovendo a regulação positiva do HMGCR e, paradoxalmente, aumentando a síntese hepática no contexto de uma captação exógena prejudicada [14] — um ciclo vicioso que, se não for tratado, leva à ASCVD prematura.
11. Oxisteróis: a camada reguladora no sistema do colesterol
Os oxisteróis são derivados oxidados do colesterol presentes nos tecidos e no plasma em concentrações 3 a 4 ordens de magnitude inferiores às do próprio colesterol; no entanto, exercem uma influência regulatória desproporcional sobre a homeostase dos esteróis e a função imunológica [31, 32].
Vários oxisteróis atuam como ligantes endógenos do INSIG e como ativadores dos receptores X do fígado (LXRs), receptores nucleares que regulam positivamente, por meio da transcrição, os genes ABCA1, ABCG1 e ApoE — o mecanismo de transporte reverso do colesterol [31, 32]. A ativação do LXR pelos oxisteróis (incluindo o 24(S),25-epoxicolesterol e o 27-hidroxicolesterol) cria, assim, um acoplamento antecipado entre o excesso de esteróis celulares e sua remoção. No cérebro, o 24(S)-hidroxicolesterol produzido pelo CYP46A1 neuronal não apenas desempenha a função de exportação de colesterol descrita na Seção 7.1, mas também atua como um modulador alostérico positivo dos receptores de glutamato do tipo NMDA, ligando a renovação do colesterol à plasticidade sináptica [8].
12. Limitações
Várias questões fundamentais relacionadas ao metabolismo do colesterol humano ainda não foram totalmente esclarecidas, e é preciso ter cuidado ao interpretar os dados, levando isso em consideração.
- A fração hepática exata da síntese de novo total do corpo inteiro síntese de colesterol. Os dados disponíveis de traçadores em humanos sugerem ~10–25%, mas isso depende do fenótipo e é tecnicamente difícil de medir in vivo.
- A relação específica por tecido entre o fluxo de Bloch e o fluxo de K-R modificado em seres humanos ao longo da vida. O estudo de Mitsche et al. (2015) foi realizado em camundongos; os dados diretos em seres humanos são limitados.
- A identidade exata do transportador mitocondrial de glutationa envolvido no processo relacionado ao colesterol estresse oxidativo; as evidências atuais são contestadas.
- O limiar patológico do colesterol IMM em seres humanos; os limiares precisos de mol% estabelecidos em sistemas-modelo podem não ser diretamente aplicáveis ao contexto clínico.
- O mecanismo que relaciona a massa muscular esquelética ao LDL-C circulante — seja por meio da atividade da LPL, da sinalização das miocinas ou insulina regulação positiva do LDLR mediada pela sensibilidade [33, 34].
- A excreção transintestinal de colesterol (TICE) como via quantitativamente significativa de eliminação de esteróis fecais; sua contribuição em relação à excreção biliar sob diversas condições fisiológicas e farmacológicas requer uma caracterização mais aprofundada em humanos.
13. Conclusão
A economia do colesterol humano é um sistema duplo de autossuficiência local e interdependência sistêmica. A maioria das células sintetiza o colesterol de novo por meio de uma via de aproximadamente 30 etapas, com um custo metabólico substancial (~18 ATP e ~16 NADPH, segundo a contabilidade do cofator central; valores mais elevados quando se utilizam convenções de contabilidade mais amplas). Esse custo leva à captação preferencial de LDL mediada por receptores na maioria dos tecidos periféricos quando há colesterol circulante disponível.
As lipoproteínas circulantes não transportam o colesterol como fonte de energia. O LDL atua como um reservatório móvel de material precursor estrutural e esteroidogênico; o HDL facilita o retorno obrigatório dos esteróis periféricos ao fígado por meio do transporte reverso de colesterol — a única via pela qual o núcleo do esterol pode, em última instância, ser eliminado do organismo.
A biossíntese pós-lanosterol é descrita com maior precisão como um espectro de fluxo específico do tecido do que como uma oposição binária estrita entre Bloch e K-R. O fígado utiliza predominantemente o fluxo de Kandutsch–Russell modificado; os testículos e as glândulas supra-renais utilizam predominantemente o fluxo de Bloch; o cérebro adulto, em sua totalidade, se enquadra predominantemente no modelo K-R modificado na análise de fluxo, enquanto os astrócitos e os neurônios em desenvolvimento apresentam características mais marcantes do modelo de Bloch/desmosterol, que não devem ser confundidas com o quadro geral do órgão. As porcentagens numéricas precisas para as relações entre importação e síntese nos tecidos humanos ainda não são totalmente compreendidas para a maioria dos tecidos periféricos.
Uma compreensão clinicamente aplicável desse mecanismo — que abrange o interruptor SREBP2, o espectro de hipersíntese/hiperabsorção, o eixo PCSK9/LDLR e a camada reguladora dos oxisteróis — sustenta a seleção racional entre estatinas, ezetimiba, inibidores de PCSK9 e agentes emergentes direcionados à síntese de novo e ao transporte reverso.
Referências
- Bloch K. The biological synthesis of cholesterol. Science. 1965;150(3692):19-28. doi:10.1126/science.150.3692.19
- Gaylor JL. Membrane-bound enzymes of cholesterol synthesis from lanosterol. Biochem Biophys Res Commun. 2002;292(5):1139-1146. doi:10.1006/bbrc.2001.2008
- Grundy SM. Absorption and metabolism of dietary cholesterol. Annu Rev Nutr. 1983;3:71-96. doi:10.1146/annurev.nu.03.070183.000443
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Dietschy JM, Turley SD. Control of cholesterol turnover in the mouse. J Biol Chem. 2002;277(6):3801-3804. doi:10.1074/jbc.R100057200
- Goodman DS, Noble RP, Dell RB. The effects of colestipol resin and of colestipol plus clofibrate on the turnover of plasma cholesterol in man. J Clin Invest. 1973;52(10):2646-2655. doi:10.1172/JCI107457
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Wang DQ. Regulation of intestinal cholesterol absorption. Annu Rev Physiol. 2007;69:221-248. doi:10.1146/annurev.physiol.69.031905.160725
- Bosner MS, Lange LG, Stenson WF, Ostlund RE Jr. Percent cholesterol absorption in normal women and men quantified with dual stable isotopic tracers and negative ion mass spectrometry. J Lipid Res. 1999;40(2):302-308.
- Russell DW. The enzymes, regulation, and genetics of bile acid synthesis. Annu Rev Biochem. 2003;72:137-174. doi:10.1146/annurev.biochem.72.121801.161712
- Miller WL, Auchus RJ. The molecular biology, biochemistry, and physiology of human steroidogenesis and its disorders. Endocr Rev. 2011;32(1):81-151. doi:10.1210/er.2010-0013
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Brown MS, Goldstein JL. The SREBP pathway: regulation of cholesterol metabolism by proteolysis of a membrane-bound transcription factor. Cell. 1997;89(3):331-340. doi:10.1016/s0092-8674(00)80213-5
- Radhakrishnan A, Goldstein JL, McDonald JG, Brown MS. Switch-like control of SREBP-2 transport triggered by small changes in ER cholesterol: a delicate balance. Cell Metab. 2008;8(6):512-521. doi:10.1016/j.cmet.2008.10.008
- Mitsche MA, McDonald JG, Hobbs HH, Cohen JC. Flux analysis of cholesterol biosynthesis in vivo reveals multiple tissue and cell-type specific pathways. Elife. 2015;4:e07999. Published 2015 Jun 26. doi:10.7554/eLife.07999
- KANDUTSCH AA, RUSSELL AE. Preputial gland tumor sterols. 3. A metabolic pathway from lanosterol to cholesterol. J Biol Chem. 1960;235:2256-2261.
- Porter FD, Herman GE. Malformation syndromes caused by disorders of cholesterol synthesis. J Lipid Res. 2011;52(1):6-34. doi:10.1194/jlr.R009548
- Simons K, Vaz WL. Model systems, lipid rafts, and cell membranes. Annu Rev Biophys Biomol Struct. 2004;33:269-295. doi:10.1146/annurev.biophys.32.110601.141803
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Abifadel M, Varret M, Rabès JP, et al. Mutations in PCSK9 cause autosomal dominant hypercholesterolemia. Nat Genet. 2003;34(2):154-156. doi:10.1038/ng1161
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- Glass C, Pittman RC, Weinstein DB, Steinberg D. Dissociation of tissue uptake of cholesterol ester from that of apoprotein A-I of rat plasma high density lipoprotein: selective delivery of cholesterol ester to liver, adrenal, and gonad. Proc Natl Acad Sci U S A. 1983;80(17):5435-5439. doi:10.1073/pnas.80.17.5435
- Tall AR. Cholesterol efflux pathways and other potential mechanisms involved in the athero-protective effect of high density lipoproteins. J Intern Med. 2008;263(3):256-273. doi:10.1111/j.1365-2796.2007.01898.x
- Rye KA, Barter PJ. Formation and metabolism of prebeta-migrating, lipid-poor apolipoprotein A-I. Arterioscler Thromb Vasc Biol. 2004;24(3):421-428. doi:10.1161/01.ATV.0000104029.74961.f5
- Garcia-Ruiz C, Mari M, Colell A, et al. Mitochondrial cholesterol in health and disease. Histol Histopathol. 2009;24(1):117-132. doi:10.14670/HH-24.117
- Miettinen TA, Gylling H. Cholesterol absorption efficiency and sterol metabolism in obesity. Atherosclerosis. 2000;153(1):241-248. doi:10.1016/s0021-9150(00)00404-4
- Sudhop T, Lütjohann D, Kodal A, et al. Inhibition of intestinal cholesterol absorption by ezetimibe in humans. Circulation. 2002;106(15):1943-1948. doi:10.1161/01.cir.0000034044.95911.dc
- Goldstein JL, Brown MS. A century of cholesterol and coronaries: from plaques to genes to statins. Cell. 2015;161(1):161-172. doi:10.1016/j.cell.2015.01.036
- Janowski BA, Willy PJ, Devi TR, Falck JR, Mangelsdorf DJ. An oxysterol signalling pathway mediated by the nuclear receptor LXR alpha. Nature. 1996;383(6602):728-731. doi:10.1038/383728a0
- Kalaany NY, Mangelsdorf DJ. LXRS and FXR: the yin and yang of cholesterol and fat metabolism. Annu Rev Physiol. 2006;68:159-191. doi:10.1146/annurev.physiol.68.033104.152158
- Vella CA, Nelson MC, Unkart JT, Miljkovic I, Allison MA. Skeletal muscle area and density are associated with lipid and lipoprotein cholesterol levels: The Multi-Ethnic Study of Atherosclerosis. J Clin Lipidol. 2020;14(1):143-153. doi:10.1016/j.jacl.2020.01.002
- Hong S, Chang Y, Jung HS, Yun KE, Shin H, Ryu S. Relative muscle mass and the risk of incident type 2 diabetes: A cohort study. PLoS One. 2017;12(11):e0188650. Published 2017 Nov 30. doi:10.1371/journal.pone.0188650

