L'economia metabolica del colesterolo umano
Analisi di Sintesi de novo, Lipoproteina Flusso e Acquisizione di Tessuto Periferico
1. Sintesi
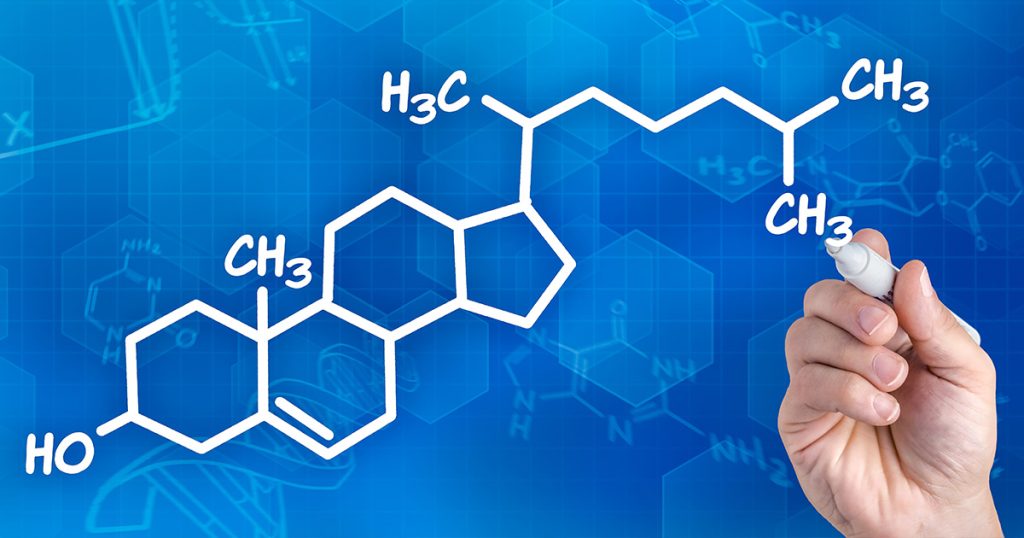
La regolazione fisiologica della colesterolo nel corpo umano è tra gli esempi più sofisticati di omeostasi metabolica nella biologia dei mammiferi. Il colesterolo, tetraciclico sterolo, è indispensabile per la vita eucariotica, fungendo da chiave di volta architettonica delle membrane cellulari, da substrato per gli ormoni steroidei e acido biliare sintesi e un'impalcatura per le piattaforme di segnalazione transmembrana. I tessuti periferici non possono scindere il nucleo sterolico del colesterolo; la conversione epatica in acidi biliari è quindi l'unica via di eliminazione degli acidi biliari, mentre l'eliminazione degli steroli neutri comprende anche le vie di escrezione biliare e transintestinale.
Ogni cellula nucleata possiede il corredo enzimatico per sintetizzare il colesterolo ex novo dall'acetil-CoA attraverso un percorso di circa 30 passaggi. L'elevato costo energetico di questa sintesi guida il meccanismo preferenziale mediato da recettori LDL captazione nella maggior parte dei tessuti quando il colesterolo circolante è disponibile. Questo rapporto esamina la distribuzione quantitativa del colesterolo nei tessuti umani, caratterizza l'utilizzazione della via biosintetica specifica per tessuto alla luce di dati definitivi di analisi del flusso e contestualizza l'architettura regolatoria che mantiene l'omeostasi degli steroli.
2. Introduzione
Il colesterolo occupa una posizione unica nella biochimica dei mammiferi. A differenza della maggior parte dei metaboliti che vengono ossidati per produrre energia o polimerizzati in assemblaggi macromolecolari, il colesterolo è gestito come una risorsa strutturale durevole. Il sistema dell'anello sterolico è straordinariamente stabile; nessuna via enzimatica nelle cellule umane può scinderlo per recuperare gli atomi di carbonio come carburante ossidabile. Lo smaltimento è quindi un processo epatico indiretto che prevede la conversione in acidi biliari (tramite CYP7A1 e vie secondarie) o escrezione diretta nella bile [11].
L'importanza clinica del colesterolo è ben stabilita. Concentrazioni elevate di colesterolo LDL (LDL-C), e più precisamente elevate numero di particelle LDL quantificato dal plasma apolipoproteina B (ApoB), sono causalmente associati all'aterosclerotica malattia cardiovascolare (ASCVD) in un'ampia base di Randomizzazione mendeliana, epidemiologica e interventistica prove20]. Una comprensione precisa della dinamica del colesterolo sottostante ha implicazioni terapeutiche dirette: spiega perché iper-sintetizzatori rispondere con decisione a Idrossi-metilglutaril-CoA reduttasi inibitori (statine) ma male alla restrizione dietetica, mentre iper-assorbenti mostrare il modello inverso e trarre beneficio dall'intestino NPC1L1 blocco con ezetimibe [28, 29]. Spiega anche perché PCSK9 inibizione prevenendo la post-traduzione Recettore delle LDL (LDLR) la degradazione amplifica la clearance epatica delle LDL indipendentemente dal via del mevalonato [21].
3. Il quadro quantitativo del colesterolo corporeo totale
In un adulto sano e in buona salute, il colesterolo corporeo totale è di circa 2.100 mg per chilogrammo di peso corporeo6]. Per una persona di 70 kg, ciò corrisponde a una riserva di circa 147 grammi. Oltre il 90% di questa riserva si trova all’interno delle membrane cellulari, dove il colesterolo modula la fluidità del doppio strato e organizza i microdomini arricchiti di colesterolo (‘zattere lipidiche’) che fungono da piattaforme per i recettori tirosin chinasici e i recettori accoppiati a proteine G [19].
Il bilancio giornaliero netto del colesterolo riflette la sintesi endogena, l’apporto alimentare, il riassorbimento del colesterolo biliare e la perdita fecale di steroli neutri e acidi; non dovrebbe essere ridotto a una semplice dicotomia tra sintesi e assorbimento alimentare. Il ricambio di colesterolo nell’intero organismo umano è di circa 0,71 TP9T al giorno, pari a circa 0,8–1,2 grammi al giorno in un adulto di 70 kg [5, 6]. Al contrario, i topi rinnovano quotidianamente circa il 7–91 TP9T del colesterolo totale presente nel loro organismo [5]-una differenza con implicazioni importanti per la traducibilità degli studi sui roditori per la riduzione dei lipidi rispetto ai risultati umani.
Tabella 1. Bilancio giornaliero del colesterolo in un adulto sano in condizioni di dieta tipica occidentale.
Nota: Questa tabella presenta i flussi stabiliti nell'economia del colesterolo umano. L'assorbimento dietetico non è semplicemente il ‘rovescio della medaglia’ della sintesi de novo; esso riflette un processo intestinale a più fasi che comprende secrezione biliare, miscelazione luminale, captazione mediata da NPC1L1 e parziale ricircolazione biliare.
| Parametro | Valore Tipico / Intervallo | Nota interpretativa | Riferimento chiave |
| Colesterolo totale corporeo | ~2.100 mg/kg di peso corporeo; ~147 g in un adulto di 70 kg | La stragrande maggioranza (>90%) è presente nelle membrane; il resto nelle lipoproteine circolanti | Goodman et al. 1973 [6] |
| Ricambio giornaliero corporeo totale | ~0,71 TP9T/giorno (~0,8–1,2 g/giorno in un adulto di 70 kg) | Sostanzialmente inferiore rispetto ai roditori (~7–91 TP9T/giorno); ciò indica un metabolismo degli steroli molto parsimonioso nell’uomo | Dietschy & Turley 2002 [5]; Goodman et al. 1973 [6] |
| Sintesi de novo | 700–900 mg/giorno negli adulti sani (notevole variabilità interindividuale) | Non un semplice contrappeso all'assorbimento dietetico; riflette la sintesi dell'intero organismo in tutti i tessuti | Grundy 1983 [3] |
| – Contributo epatico | ~10–25% di sintesi totale | La maggioranza origina da tessuti extraepatici; la frazione esatta varia a seconda del fenotipo e del metodo | Dietschy et al. 1993 [4]; Dietschy & Turley 2002 [5] |
| Colesterolo alimentare assunzione | Generalmente ~200–500 mg/giorno (dipendente dalla popolazione e dall'epoca) | La media della popolazione varia ampiamente; non è un fattore determinante primario del C-LDL plasmatico nella maggior parte degli individui a causa della soppressione compensatoria di SREBP2 | Wang 2007 [9] |
| Colesterolo intestinale presentato a lumen | ~1.400–1.700 mg/giorno (dieta + bile + cellule epiteliali desquamate) | Il contributo biliare predomina; la frazione alimentare rappresenta una minoranza del carico luminale | Wang 2007 [9]; Russell 2003 [11] |
| Assorbimento intestinale frazionato | Altamente variabile: 29,0–81,11 TP9T, media 56,21 TP9T nei soggetti sani | La variazione interindividuale è ampia; il genotipo di NPC1L1 è un determinante importante | Bosner et al. 1999 [10] |
| Secrezione biliare di colesterolo | ~800–1.200 mg/giorno | Principale fonte di colesterolo luminale; la maggior parte viene riassorbita; la frazione non riassorbita viene escreta come sterolo neutro | Russell 2003 [11] |
| Sintesi degli acidi biliari | ~400 mg/giorno (stima classica approssimativa) | Via di smaltimento dei soli acidi biliari; le vie biliare e transintestinale contribuiscono all'eliminazione complessiva degli steroli neutrali | Russell 2003 [11] |
| Perdita totale di steroli fecali | ~0,7–1,0 g/giorno (ampio intervallo) | Gli steroli neutri e gli steroli acidi devono essere distinti; escrezione transintestinale del colesterolo contribuisce in aggiunta alla perdita biliare | Russell 2003 [11] |
| Sintesi degli ormoni steroidei | ~50 mg/giorno (stima storica approssimativa) | Fonti deboli; riportato solo come approssimazione per ordine di grandezza | Miller & Auchus 2011 [12] |
Tutti i valori rappresentano gli intervalli fisiologici in condizioni metaboliche normali. Tali valori subiscono variazioni significative in caso di dislipidemia, patologie epatiche o interventi farmacologici. La percentuale esatta di sintesi epatica dipende dal metodo utilizzato; l’intervallo 10–25% riflette i dati ottenuti con traccianti umani.
4. L'imperativo energetico: la sintesi *de novo* come risorsa costosa
Il percorso completo dall'acetil-CoA al colesterolo comprende circa 30 passaggi enzimatici1]. È diviso in due fasi principali:
- La fase pre-lanosterolo (~11 passaggi): comprende la via del mevalonato propriamente detta (6 passaggi enzimatici dedicati dall'acetil-CoA all'isopentenil pirofosfato [IPP]) attraverso la sintesi dello squalene e la ciclizzazione ossidativa a lanosterolo1].
- La fase post-lanosterolo (~19 passaggi): la conversione del lanosterolo in colesterolo attraverso rami biosintetici divergenti caratterizzati da Bloch (1965) [1] e Kandutsch & Russell (1960) [17].
4.1 Costo Bioenergetico: Una Contabilità Sfumata
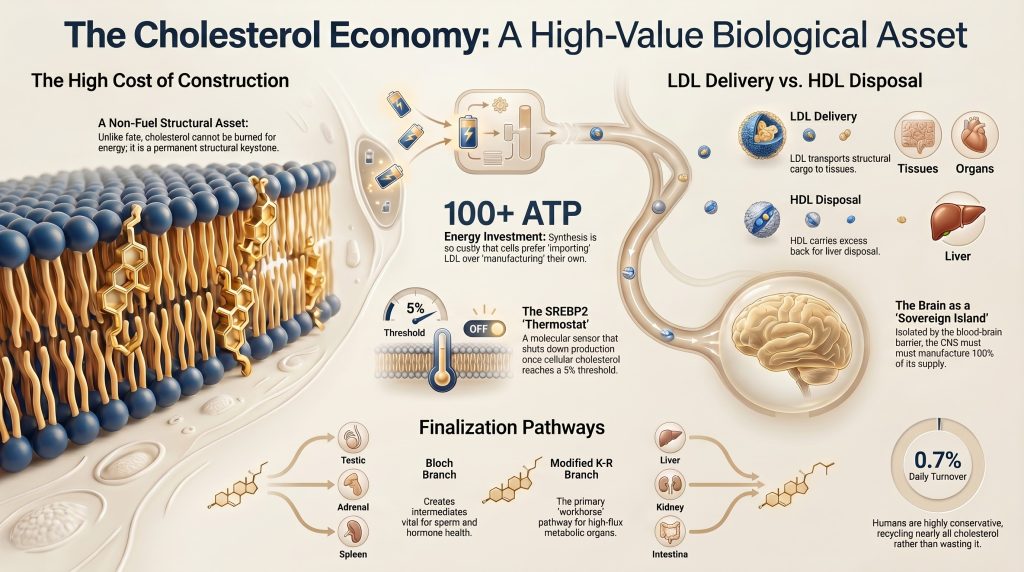
La biosintesi del colesterolo è metabolicamente costosa. Le stime comunemente citate sono di circa 18 ATP e 16 NADPH per molecola a partire dall'acetil-CoA, considerando solo i cofattori della via centrale (passaggi della mevalonato chinasi e HMG-CoA reduttasi). Questi sono i valori riconosciuti nella maggior parte dei testi di biochimica [1Convenzioni contabili più ampie – che includono inoltre il NADPH post-lanosterolo consumato durante le tre fasi di demetilazione ossidativa e le riduzioni dell'anello dal lanosterolo al colesterolo – producono valori più elevati (circa 26 NADPH in totale lungo l'intera via [2]) non esiste un'unica risposta universalmente accettata [2Quando il costo opportunità di 18 molecole di acetil-CoA (energia della β-ossidazione rinunciata) e tutti gli equivalenti riducenti vengono convertiti in unità equivalenti di ATP, l'investimento totale per molecola di colesterolo supera sostanzialmente i 100 equivalenti di ATP. Ciò spiega perché le cellule preferiscono fortemente l'assorbimento di LDL mediato da recettori rispetto alla sintesi de novo quando il colesterolo circolante è disponibile13].
4.2 PCSK9 e il ciclo del recettore delle LDL
L'LDLR media l'endocitosi mediata da recettore delle particelle LDL contenenti ApoB-100. Dopo aver consegnato il suo carico lipidico ai lisosomi, il recettore viene riciclato sulla superficie dell'epatocita per successivi cicli di legame delle LDL. Convertasi della proproteina la subtilisina/kexina di tipo 9 (PCSK9) interrompe questo riciclo legandosi all'LDLR nell'endosoma e indirizzandolo verso la degradazione lisosomiale anziché al ritorno sulla superficie [21].
Le varianti di perdita di funzione di PCSK9 sono associate a livelli di c-LDL cronicamente più bassi e a riduzioni sostanziali del rischio coronarico, ma l'entità della protezione varia a seconda del tipo di variante e della popolazione [21]. Inibitori degli anticorpi monoclonali di PCSK9 (evolocumab, alirocumab) riducono il colesterolo LDL del 50–65% in aggiunta alla terapia con statine e riducono significativamente eventi avversi cardiovascolari maggiori nei pazienti ad alto rischio22, 23Questo meccanismo è additivo rispetto all'inibizione della HMG-CoA reduttasi mediata dalle statine e non dipende dalla via del mevalonato.
5. Variazioni della via: Rami di Bloch e Kandutsch-Russell
La biosintesi del colesterolo post-lanosterolo è meglio descritta come uno spettro di flussi tissuto-specifici attraverso i rami dominanti di Bloch e i rami modificati di Kandutsch–Russell, piuttosto che come una rigida scelta binaria tra le vie canoniche di Bloch e K-R.
La distribuzione tissutale di questi pathway è stata caratterizzata in modo definitivo da Mitsche, McDonald, Hobbs e Cohen [16] utilizzando l'analisi del flusso di isotopi stabili in 15 tessuti murini in vivo. La loro scoperta chiave è che la via canonica di Kandutsch-Russell non è stata osservata come la via intatta dominante in alcun tessuto; hanno invece descritto un modello modificato di Kandutsch-Russell in cui fegato e rene mostravano prevalentemente un flusso modificato di Kandutsch-Russell, mentre testicoli e surrene erano caratterizzati da una forte presenza della via di Bloch. Qualsiasi riassunto che presenti fegato/rene/intestino come siti di prevalenza della via canonica di Kandutsch-Russell come una regola mammaliana risolta travisa sia le conclusioni degli autori sia alcune specifiche assegnazioni tissutali.
5.1 Via di Bloch (tramite desmosterolo)
Il via di Bloch procede attraverso il desmosterolo (lanosterolo → … → desmosterolo → colesterolo tramite DHCR24). Predomina nei tessuti in cui l'intermediario desmosterolo svolge di per sé una funzione biologica. I testicoli ne sono l'esempio più evidente: il desmosterolo si accumula nelle teste degli spermatozoi maturi, dove le sue proprietà biofisiche distinte rispetto al colesterolo facilitano il rimodellamento della membrana richiesto per la competenza alla fecondazione [16, 18].
Tessuti a prevalenza di Bloch nell'analisi di Mitsche et al.: testicoli, ghiandole surrenali e milza. Separatamente, studi specifici per tipo cellulare nel cervello dimostrano che astrociti e i neuroni in via di sviluppo usano preferenzialmente la sintesi di Bloch/desmosterolo. Tuttavia, nella stessa analisi di Mitsche et al., il tessuto dell'intero cervello adulto è mappato prevalentemente sul flusso K-R modificato. Questi due risultati non dovrebbero essere confusi: le prove relative all'intero cervello adulto e a specifici tipi di cellule neurali dovrebbero essere presentate separatamente.
5.2 Via di Kandutsch-Russell modificata (tramite 7-DHC / Latosterolo)
La via K-R modificata procede attraverso il 7-deidrocolesterolo (7-DHC) e il latosterolo (lanosterolo → … → 7-DHC → colesterolo tramite DHCR7). Il fegato di topo adulto nell'analisi di Mitsche et al. ha mostrato prevalentemente un flusso K-R modificato. Questo è clinicamente importante: la carenza di DHCR7 causa Sindrome di Smith-Lemli-Opitz, in cui l'accumulo tossico di 7-DHC interessa tutti i tessuti modificati dominati da K-R [18Nella pelle, il 7-DHC è il precursore immediato della vitamina D₃ in seguito a irradiazione UVB, conferendo al ramo K-R modificato un ruolo fotobiologico distintivo18].
DHCR24 e DHCR7 sono le reduttasi terminali che definiscono un'importante chimica di ramificazione, ma il flusso tissutale è più plastico e ramificato di quanto suggerisca un rigido diagramma di percorso binario [16].
Tabella 2. Distribuzione della via biosintetica post-lanosterolo per tessuto (corretta secondo Mitsche et al. 2015 [16]).
| Ramo del percorso | Tessuti in cui questo ramo predomina (in Mitsche et al. 2015 [16]) | Razionale Biologico e Avvertenze |
| Bloch (via desmosterolo) | Testicoli, ghiandole surrenali, milza; astrociti e neuroni in sviluppo (studi sui tipi cellulari) | Il desmosterolo (il penultimo intermediario della via di Bloch) possiede proprietà biofisiche distinte, importanti nella spermatogenesi. Studi specifici sugli astrociti e sui neuroni in via di sviluppo indicano un flusso preferenziale di Bloch/desmosterolo. Tuttavia, nell'analisi sui topi condotta da Mitsche e colleghi, il tessuto cerebrale intero adulto è risultato associato prevalentemente a un flusso K-R modificato. |
| Kandutsch-Russell modificato (via 7-DHC/latosterolo) | Fegato, rene, ghiandola prepuziale, intestino; tessuto cerebrale intero adulto (in Mitsche et al.) | Dominante negli organi metabolici ad alto flusso. Mitsche e colleghi hanno descritto questa via come una via di K-R ‘modificata’; la via di K-R canonica non è stata osservata come la via integra dominante in alcun tessuto. Il fegato utilizza prevalentemente il flusso di K-R modificato, non quello di Bloch. La carenza di DHCR7 (sindrome di Smith-Lemli-Opitz) dimostra l'importanza clinica di questo ramo. |
| Misto / dipendente dal contesto | Pelle, muscolo scheletrico, cuore, polmone | Il rapporto varia con lo stadio di sviluppo, l'ossigenazione e il contesto ormonale. Nella pelle, il 7-DHC intermedio della via di Kandutsch-Russell (K-R) è il precursore fotochimico diretto della vitamina D₃. Il flusso tissutale è descritto meglio come uno spettro plastico piuttosto che come una rigida scelta binaria. |
I dati derivano dall'analisi del flusso con isotopi stabili in 15 tessuti murini [16]. La distribuzione nei tessuti umani è dedotta dall'omologia enzimatica; ‘K-R modificato’ si riferisce alla terminologia propria di Mitsche et al. - il K-R canonico non è stato osservato come la via intatta predominante in alcun tessuto.
6. Dinamica delle lipoproteine: il sistema logistico sistemico
Dato che le cellule possono sintetizzare il proprio colesterolo, le lipoproteine circolanti svolgono tre funzioni principali: (1) ridistribuzione delle risorse dai tessuti con surplus di sintesi a quelli carenti; (2) ammortizzamento metabolico per risparmiare ATP e NADPH cellulari durante gli stati ad alta richiesta energetica; e (3) trasporto inverso e smaltimento degli steroli periferici in eccesso, prevenendo l'accumulo in macrofagi e aterogenesi [25Il colesterolo è altamente lipofilo e insolubile nel plasma acquoso; deve essere impacchettato in particelle lipoproteiche anfifiliche insieme a fosfolipidi e apolipoproteine che conferiscono specificità di legame al recettore30].
6.1 La cascata VLDL–IDL–LDL
VLDL le particelle vengono assemblate negli epatociti e secrete nella circolazione venosa epatica (sistemica), dove lipoproteina lipasi (LPL) ancorata alle superfici endoteliali idrolizza progressivamente il nucleo dei trigliceridi, rimodellando le VLDL attraverso le lipoproteine a densità intermedia (IDL) residui fino a quando rimane la particella LDL impoverita di trigliceridi e arricchita di esteri del colesterolo [30Ogni particella LDL trasporta una singola ApoB-100 molecola; pertanto, la concentrazione plasmatica di ApoB è un indice più preciso di particella aterogenica carico rispetto alla massa del colesterolo LDL, che confonde l'eterogeneità delle dimensioni delle particelle [20]. Circa il 60–70% della massa di colesterolo circolante è trasportato nella frazione LDL [30].
6.2 HDL e trasporto inverso del colesterolo
Le particelle di lipoproteine ad alta densità facilitano il ritorno del colesterolo periferico in eccesso al fegato tramite trasporto inverso del colesterolo (RCT). ABCA1 media il trasferimento iniziale di colesterolo cellulare e fosfolipidi ad apoA-I povera di lipidi, formando nascenti discoidi HDL particelle. L'ABCG1 promuove un ulteriore efflusso di colesterolo principalmente verso particelle di HDL più mature e ricche di lipidi; questi sono pool accettori iniziali distinti con ruoli funzionali non sovrapponibili [26La lecitina-colesterolo aciltransferasi (LCAT), attivata dall'ApoA-I, esterifica quindi il colesterolo acquisito, guidando termodinamicamente l'efflusso netto e convertendo i dischi nascenti in HDL sferiche mature26].
Il colesterolo viene riportato al fegato tramite captazione selettiva mediata da SR-BI o tramite scambio mediato da CETP in particelle contenenti ApoB successivamente rimosso dal LDLR. Il fegato converte il colesterolo restituito in acidi biliari (primari: acido colico, acido chenodesossicolico) tramite il CYP7A1, o lo escreta direttamente nella bile per l'eliminazione degli steroli neutri11L'escrezione di colesterolo transintestinale (TICE) fornisce un'ulteriore via di smaltimento fecale che non dipende dalla secrezione biliare.
6.3 SR-BI e captazione selettiva nei tessuti steroidogenici
SR-BI (recettore scavenger di classe B tipo I) media l'assorbimento selettivo di esteri del colesterolo sia da HDL che da LDL senza concomitante degradazione della particella lipoproteica. SR-BI è altamente espresso nella corteccia surandrenale e nelle gonadi ed è sovraregolato dall'ACTH nel surrene, creando un meccanismo a feed-forward che accoppia la richiesta ormonale all'apporto di steroli circolanti [24Tuttavia, la prevalenza di SR-BI come via di captazione steroidogenica è meglio stabilita nel surrene dei roditori rispetto a quello umano; nell'uomo, la captazione di LDL mediata da LDLR rimane particolarmente importante e la via HDL–SR-BI appare meno dominante rispetto ai roditori. Entrambe le vie contribuiscono, e si dovrebbe evitare di generalizzare eccessivamente dai dati su SR-BI dei roditori agli esseri umani.
7. Profili di acquisizione del colesterolo specifici per tessuto
Il grado in cui un tessuto dipende dal colesterolo circolante rispetto alla sintesi interna riflette il suo ruolo metabolico, l'accesso vascolare e la capacità biosintetica. La Tabella 3 sottostante fornisce profili tissutali qualitativi; le percentuali specifiche di importazione rispetto alla sintesi per la maggior parte dei tessuti periferici (muscolo, tessuto adiposo, cute) non sono stabilite da prove dirette con traccianti sull'uomo e non dovrebbero essere presentate come dati definitivi.
Tabella 3. Profili di acquisizione qualitativa del colesterolo tissutale.
| Tessuto | Profilo di acquisizione del colesterolo e ruolo funzionale |
| Cervello (SNC) | Essenzialmente autosufficiente per il colesterolo in normali condizioni adulte; l'afflusso di colesterolo lipoproteico plasmatico attraverso il barriera emato-encefalica è trascurabile. Tutto il colesterolo è sintetizzato localmente, principalmente dagli astrociti, e distribuito ai neuron via lipoproteine del liquor contenenti ApoE. La suddivisione precisa tra sintesi e captazione non può essere quantificata in modo affidabile tramite le percentuali di frazione tissutale negli esseri umani. |
| Corteccia surrenale | Forte dipendenza dal colesterolo derivato dalle lipoproteine plasmatiche; nell’uomo, l’assorbimento delle LDL mediato dall’LDLR è particolarmente importante, sebbene anche l’SR-BI abbia un ruolo rilevante (ma la predominanza dell’SR-BI è meglio documentata nella ghiandola surrenale dei roditori rispetto a quella umana). In seguito a stimolazione acuta con ACTH, oltre l’80% del colesterolo precursore degli steroidi deriva dalle lipoproteine circolanti. Le riserve intracellulari di esteri del colesterolo (regolate da ACAT/HSL) fungono da riserva tampone. |
| Fegato | Centro nevralgico: svolge l’assorbimento delle LDL mediato dai recettori, la sintesi de novo, la secrezione delle VLDL, la sintesi degli acidi biliari e l’escrezione biliare. Il contributo frazionario esatto alla sintesi de novo a livello dell’intero organismo varia a seconda della fonte e del metodo (~10–25% nei dati relativi allo stato stazionario nell’uomo). Utilizza prevalentemente il flusso biosintetico K-R modificato. Le percentuali precise relative all’importazione rispetto alla sintesi dipendono dal metodo utilizzato. |
| Intestino | Organo principale sia per l'assorbimento del colesterolo (mediato da NPC1L1 dal lume) sia per la sintesi *de novo*. Partecipa inoltre all'escrezione del colesterolo tramite l'escrezione di colesterolo transintestinale (TICE), che contribuisce alla perdita di steroli fecali indipendentemente dalla secrezione biliare. Flusso biosintetico K-R prevalentemente modificato. |
| Gonadi | Utilizza una miscela di sintesi de novo, riserve intracellulari di estere del colesterolo (mobilizzate dall'HSL) e lipoproteine plasmatiche (tramite i percorsi sia di LDLR che di SR-BI). Le percentuali esatte dipendono dal contesto e sono regolate acutamente dalle gonadotropine (LH/FSH). Il percorso di Bloch predomina nel testicolo. |
| Muscolo scheletrico, tessuto adiposo, pelle | Importante per l’equilibrio del colesterolo nell’organismo nel suo complesso in termini di massa totale, ma i rapporti precisi tra apporto e sintesi nell’uomo non sono stati stabiliti in assenza di prove dirette ottenute tramite traccianti. Stime generali suggeriscono che, in condizioni normali, si faccia prevalentemente affidamento sulla sintesi locale, ma a tali stime non dovrebbero essere attribuite percentuali specifiche senza citare lo studio primario con traccianti che le confermi nell’uomo. |
Le descrizioni qualitative riflettono il consenso emerso dagli studi condotti sull’uomo e sugli animali. Non sono state stabilite percentuali precise relative ai tessuti periferici (muscoli scheletrici, tessuto adiposo, pelle) sulla base di prove dirette ottenute con traccianti sull’uomo; cfr. Dietschy et al. 1993 [4] e Goodman et al. 1973 [6] per i dati cinetici primari disponibili. Il flusso tissutale varia in modo sostanziale in presenza di infiammazione, malattie metaboliche, ipossia e interventi farmacologici.
7.1 Cervello: autosufficienza
Il sistema nervoso centrale contiene circa 20–25% di colesterolo totale dell'organismo, nonostante rappresenti solo circa 2% della massa corporea [7]. La barriera emato-encefalica (BBB), costituita da giunzioni strette tra le cellule cerebrali cellule endoteliali esclude il colesterolo legato alle lipoproteine dalla circolazione sistemica; l’afflusso netto di colesterolo plasmatico attraverso la barriera emato-encefalica (BBB) negli adulti è trascurabile [7, 8]. Il cervello deve quindi sintetizzare autonomamente tutto il proprio colesterolo, compito svolto principalmente dagli astrociti, che trasferiscono il colesterolo ai neuroni tramite lipoproteine contenenti ApoE presenti nel liquido cerebrospinale [8].
Il colesterolo nel cervello viene eliminato principalmente attraverso la conversione in ossisteroli, in particolare il 24(S)-idrossicolesterolo, tramite il CYP46A1 neuronale (colesterolo 24-idrossilasi). Le misurazioni dirette della differenza artero-venosa nella vena giugulare suggeriscono un’esportazione cerebrale di circa 2–3 mg/giorno; stime indirette precedenti suggerivano 4–7 mg/giorno. Si tratta di un intervallo stimato che dipende dal metodo utilizzato, non di un singolo valore fisso [8]. Le guaine mieliniche sono le strutture membranarie più ricche di colesterolo presenti nei mammiferi; il colesterolo costituisce circa il 25–40% dei lipidi totali della mielina (la frazione esatta dipende dalla specie, dalla regione e dal metodo di misurazione) [7].
7.2 Tessuti steroidogenici: consumatori ad alto flusso dipendenti dall’apporto esterno
La corteccia surrenale e le gonadi necessitano del colesterolo come substrato esclusivo per la sintesi degli ormoni steroidei attraverso la via di importazione mitocondriale mediata dalla proteina StAR [12]. In seguito a una stimolazione acuta con ACTH, oltre l’80% del colesterolo utilizzato nella steroidogenesi proviene dalle lipoproteine circolanti [24]. Le riserve intracellulari di esteri di colesterolo (esterificazione mediata dall’ACAT, mobilizzazione mediata dall’HSL) costituiscono una riserva rapidamente accessibile.
7.3 Muscolatura scheletrica, tessuto adiposo e pelle
Questi tessuti rappresentano complessivamente la massa più consistente dell'organismo e, di conseguenza, una quota assoluta rilevante del pool di colesterolo; tuttavia, il loro ricambio frazionario giornaliero è basso e la maggior parte del colesterolo viene sintetizzata localmente. Stime generali derivanti da studi con tracciante su animali suggeriscono un elevato ricorso alla sintesi de novo in condizioni normali, ma le percentuali relative all’importazione rispetto alla sintesi in vivo nell’uomo per questi tessuti non sono stabilite con la precisione che una tabella di numeri specifici implicherebbe. Il loro contributo al metabolismo lipidico sistemico è inoltre indiretto: una maggiore massa muscolare scheletrica è epidemiologicamente associata a livelli più bassi di LDL-C circolante, potenzialmente attraverso un’elevata attività della LPL, un miglioramento sensibilità all'insulina (che aumenta l'espressione dell'LDLR epatico), oppure effetti mediati dalle miocine sul metabolismo delle lipoproteine epatiche [33, 34].
8. Il paradosso funzionale: perché il colesterolo non è un combustibile
Una distinzione concettuale fondamentale nel metabolismo dei lipidi è che, mentre trigliceridi costituiscono la principale riserva energetica lipidica e vengono catabolizzati tramite β-ossidazione per la produzione di ATP, mentre il colesterolo non è in alcun modo una fonte di energia. Il sistema ad anello tetraciclico dello sterolo è straordinariamente stabile e non presenta i legami C–H ad alta energia delle catene aciliche grasse. Le cellule umane non dispongono di alcuna via enzimatica per la scissione dell’anello sterolico; gli atomi di carbonio del colesterolo non possono essere recuperati come unità di acetil-CoA per il ciclo di Krebs [1].
Le lipoproteine circolanti svolgono quindi tre funzioni non caloriche:
- Mantenimento strutturale: la destinazione principale del colesterolo circolante è la membrana plasmatica. Il colesterolo si inserisce tra le catene aciliche dei fosfolipidi, condensando il doppio strato e organizzando microdomini a ordine liquido (Lo) (‘lipid rafts’) che fungono da piattaforme per i recettori di segnalazione [19]. Questa funzione dipende dalla densità della membrana e non può essere svolta dai trigliceridi.
- Distribuzione dei precursori: le LDL circolanti forniscono il substrato sterolico immediato per la steroidogenesi surrenale. Mantenendo una riserva sistemica di LDL, l'organismo garantisce che la produzione di cortisolo e aldosterone possa essere avviata entro pochi minuti dalla stimolazione con ACTH, senza dover attendere la sintesi de novo [12, 24].
- Effetto tampone omeostatico: in caso di lesione tissutale o di rapida proliferazione, le cellule possono attingere al colesterolo circolante per la biogenesi di emergenza delle membrane, conservando così l’ATP e il NADPH in un momento di massima richiesta metabolica [13].
8.1 Accumulo di colesterolo nei mitocondri: conseguenze patologiche
Sebbene il colesterolo sia indispensabile nella membrana plasmatica, il suo accumulo nella membrana mitocondriale interna (IMM) al di sopra delle concentrazioni fisiologiche è patologico. L’IMM è normalmente la membrana con il minor contenuto di colesterolo all’interno della cellula, una condizione necessaria per mantenere la fluidità e il contenuto di cardiolipina indispensabili per il funzionamento ottimale della catena respiratoria [27]. Un eccesso di colesterolo IMM compromette l'attività del complesso I e del complesso III, riduce il potenziale di membrana mitocondriale e diminuisce l'importazione di glutatione nei mitocondri, aumentando la vulnerabilità a specie reattive dell'ossigeno generata dall’attività parzialmente accoppiata della catena respiratoria [27]. Questo meccanismo è stato associato alla transizione dalla steatoepatite alla cirrosi nella steatoepatite non alcolica fegato grasso malattia e nella vulnerabilità di cellule schiumose nell'aterosclerosi targhe [27].
Due precisazioni sulla precisione: (a) la soglia patologica esatta per l’accumulo di colesterolo nell’IMM non è stata stabilita con sufficiente chiarezza per poter formulare un’affermazione numerica definitiva nell’ambito umano; una descrizione qualitativa è più sostenibile rispetto alla citazione di soglie specifiche di mol% come fatti accertati; e (b) l’identità del trasportatore mitocondriale del glutatione coinvolto è oggetto di dibattito — uno studio di ricostituzione diretta ha messo in discussione il trasporto di GSH mediato da OGC/DIC — e ciò rimane ad oggi incerto.
9. Feedback regolatorio: l’hub SREBP2
Il rilevamento del colesterolo nelle cellule ruota attorno al legame con l’elemento regolatore degli steroli (SRE) Proteina 2 (SREBP2), un fattore di trascrizione legato alla membrana presente nel reticolo endoplasmatico (ER) [14]. In condizioni normali, il colesterolo nel reticolo endoplasmatico è mantenuto a livelli bassi rispetto a quelli della membrana plasmatica; SREBP-2 l'elaborazione diminuisce bruscamente quando il colesterolo dell'ER si avvicina a circa 5 mol% dei lipidi della membrana dell'ER [15].
Quando il colesterolo ER scende al di sotto di questa soglia, il complesso SCAPsi dissocia dalle proteine di ritenzione INSIG-1/INSIG-2, consentendo a SCAP di accompagnare SREBP2 al Golgi, dove le proteasi del sito 1 e del sito 2 scindono in sequenza SREBP2, liberando il dominio N-terminale del fattore di trascrizione per l’importazione nel nucleo [14]. Nel nucleo, l’SREBP2 induce una sovraregolazione coordinata di:
- HMGCR (HMG-CoA reduttasi, l'enzima limitante della velocità della via del mevalonato): per aumentare la sintesi interna.
- LDLR (recettore delle LDL): per aumentare l'assorbimento delle LDL dal sangue mediato dal recettore.
- PCSK9: paradossalmente sovraregolata da SREBP2 come fattore di regolazione a retroazione negativa sul riciclaggio dell’LDLR – la base meccanicistica per Inibitore di PCSK9 farmacologia [21].
Quando il colesterolo ER raggiunge circa 5 mol% — una soglia di tipo “switch” stabilita da Radhakrishnan et al. [15] secondo un approccio di biochimica quantitativa delle membrane: la SCAP viene trattenuta nel reticolo endoplasmatico (ER) dall’INSIG, l’SREBP2 rimane inattivo e l’HMG-CoA reduttasi viene destinata alla degradazione proteasomica tramite il reclutamento, mediato dall’INSIG, della ligasi dell’ubiquitina E3 gp78 [14, 15]. Questo interruttore bistabile garantisce che le cellule attingano alla riserva circolante solo quando necessario.
10. Variabilità interindividuale e implicazioni cliniche
10.1 Iper-sintetizzatori contro iper-assorbitori
Esistono notevoli differenze tra gli individui per quanto riguarda il contributo relativo della sintesi rispetto all’assorbimento al loro pool di colesterolo circolante: una distinzione clinicamente rilevante [28]. Gli ‘iper-sintetizzatori’ presentano livelli plasmatici elevati di lathosterolo (un marcatore di sintesi) e livelli ridotti di campesterolo/sitosterolo (marcatori di assorbimento) rispetto alle mediane della popolazione. Le statine producono una marcata riduzione del colesterolo LDL in questi pazienti. Al contrario, gli ‘iper-assorbitori’ presentano un profilo plasmatico degli steroli opposto; il loro trasportatore intestinale NPC1L1 cattura una frazione sproporzionata sia del colesterolo alimentare che di quello biliare. Negli iper-assorbitori, le statine possono determinare riduzioni attenuate del colesterolo LDL poiché la sovraregolazione compensatoria di NPC1L1 controbilancia parzialmente l’inibizione della sintesi; la terapia combinata con ezetimibe ripristina una risposta più completa [28, 29].
Il modello dell'iper-sintetizzatore/iper-assorbitore è utile dal punto di vista biologico ed è supportato da uno sterolo non colesterolo biomarcatore dati, ma non si tratta ancora di una tassonomia clinica universalmente standardizzata e prevista dalle linee guida: livelli più elevati dei marcatori di assorbimento non sempre predicono risposte differenziali del colesterolo LDL, specialmente nelle coorti affette da FH. Il quadro di riferimento dovrebbe essere presentato come utile ma non deterministico.
10.2 Ipercolesterolemia familiare e la via dell'LDLR
Ipercolesterolemia familiare (FH) è la malattia monogenica grave più comune nell’uomo; la prevalenza è di circa 1 su 250–300 (una recente stima consensuale della NLA colloca la prevalenza globale intorno a 1 su 311, a seconda della popolazione e della definizione diagnostica) [21]. L’FH è causata da mutazioni con perdita di funzione nel gene LDLR, da mutazioni con guadagno di funzione nel gene PCSK9 o varianti patogene nell’APOB, che compromettono tutte la clearance dell’LDL mediata dai recettori [21]. Poiché l'assorbimento epatico delle LDL è ridotto, l'SREBP2 rimane costitutivamente attivo, determinando una sovraregolazione dell'HMGCR e aumentando paradossalmente la sintesi epatica in un contesto di ridotta assimilazione esogena [14] – un circolo vizioso che, se non trattato, porta a una ASCVD precoce.
11. Ossisteroli: il livello di regolazione all’interno del sistema del colesterolo
Gli ossisteroli sono derivati ossidati del colesterolo presenti nei tessuti e nel plasma a concentrazioni inferiori di 3–4 ordini di grandezza rispetto al colesterolo stesso, eppure esercitano un’influenza regolatoria sproporzionata sull’omeostasi degli steroli e sulla funzione immunitaria [31, 32].
Diversi ossisteroli agiscono come ligandi endogeni dell’INSIG e come attivatori dei recettori X epatici (LXR), recettori nucleari che regolano positivamente a livello trascrizionale i geni ABCA1, ABCG1 e ApoE — il meccanismo responsabile del trasporto inverso del colesterolo [31, 32]. L’attivazione dell’LXR da parte degli ossisteroli (tra cui il 24(S),25-epossicolesterolo e il 27-idrossicolesterolo) crea quindi un accoppiamento di tipo feedforward tra l’eccesso di steroli cellulari e la loro rimozione. Nel cervello, il 24(S)-idrossicolesterolo prodotto dal CYP46A1 neuronale non solo svolge la funzione di esportazione del colesterolo descritta nella Sezione 7.1, ma agisce anche come modulatore allosterico positivo dei recettori del glutammato di tipo NMDA, collegando il ricambio del colesterolo alla plasticità sinaptica [8].
12. Limitazioni
Diverse questioni fondamentali relative al metabolismo del colesterolo nell’uomo rimangono ancora in parte irrisolte ed è necessario prestare attenzione nell’interpretare i dati tenendo conto di questo aspetto.
- La frazione epatica esatta del de novo totale dell'intero organismo sintesi del colesterolo. I dati disponibili relativi ai tracer umani indicano un valore compreso tra ~10 e 25%, ma tale valore dipende dal fenotipo ed è tecnicamente difficile da misurare in vivo.
- Il rapporto, specifico per tessuto, tra il flusso di Bloch e quello di K-R modificato nell'uomo nel corso dell'intero arco di vita. Lo studio di Mitsche et al. del 2015 è stato condotto sui topi; i dati diretti relativi all'uomo sono limitati.
- L'identità esatta del trasportatore mitocondriale del glutatione coinvolto nei processi legati al colesterolo stress ossidativo; le prove attualmente disponibili sono oggetto di controversia.
- La soglia patologica del colesterolo IMM nell’uomo; le soglie precise di mol% stabilite nei sistemi modello potrebbero non essere direttamente applicabili al contesto clinico.
- Il meccanismo che collega la massa muscolare scheletrica al colesterolo LDL circolante — sia attraverso l'attività della LPL, la segnalazione delle miochine, sia insulina sovraregolazione dell’LDLR mediata dalla sensibilità [33, 34].
- L'escrezione transintestinale del colesterolo (TICE) rappresenta una via di eliminazione degli steroli fecali quantitativamente significativa; il suo contributo rispetto all'escrezione biliare in varie condizioni fisiologiche e farmacologiche richiede ulteriori studi di caratterizzazione sull'uomo.
13. Conclusione
Il ciclo del colesterolo nell’organismo umano è un sistema duale caratterizzato da autosufficienza locale e interdipendenza sistemica. La maggior parte delle cellule sintetizza il colesterolo de novo attraverso un percorso di circa 30 fasi, con un costo metabolico sostanziale (~18 ATP e ~16 NADPH secondo il calcolo basato sui cofattori principali; valori più elevati se si adottano convenzioni di calcolo più ampie). Questo costo determina un assorbimento preferenziale dell’LDL mediato dai recettori nella maggior parte dei tessuti periferici quando è disponibile colesterolo circolante.
Le lipoproteine circolanti non trasportano il colesterolo come fonte di energia. L'LDL funge da serbatoio mobile di precursori strutturali e steroidogenici; l'HDL facilita il ritorno obbligatorio degli steroli periferici al fegato attraverso il trasporto inverso del colesterolo, l'unica via attraverso la quale il nucleo dello sterolo può essere infine eliminato dall'organismo.
La biosintesi post-lanosterolo può essere descritta in modo più accurato come uno spettro di flussi specifico per tessuto piuttosto che come una rigida dicotomia tra il modello di Bloch e quello di K-R. Il fegato utilizza prevalentemente il flusso di Kandutsch–Russell modificato; i testicoli e le ghiandole surrenali utilizzano prevalentemente il flusso di Bloch; il cervello intero dell’adulto si colloca prevalentemente nel modello K-R modificato nell’analisi dei flussi, mentre gli astrociti e i neuroni in via di sviluppo mostrano caratteristiche più marcate del modello di Bloch/desmosterolo che non dovrebbero essere confuse con il quadro complessivo dell’organo. Le percentuali numeriche precise relative ai rapporti tra importazione e sintesi nei tessuti umani non sono ancora pienamente comprese per la maggior parte dei tessuti periferici.
Una comprensione clinicamente applicabile di questo meccanismo – che comprende l’interruttore SREBP2, lo spettro ipersintetizzatore/iperassorbitore, l’asse PCSK9/LDLR e il livello di regolazione degli ossisteroli – è alla base della scelta razionale tra statine, ezetimibe, inibitori della PCSK9 e agenti emergenti mirati alla sintesi de novo e al trasporto inverso.
Riferimenti
- Bloch K. The biological synthesis of cholesterol. Science. 1965;150(3692):19-28. doi:10.1126/science.150.3692.19
- Gaylor JL. Membrane-bound enzymes of cholesterol synthesis from lanosterol. Biochem Biophys Res Commun. 2002;292(5):1139-1146. doi:10.1006/bbrc.2001.2008
- Grundy SM. Absorption and metabolism of dietary cholesterol. Annu Rev Nutr. 1983;3:71-96. doi:10.1146/annurev.nu.03.070183.000443
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Dietschy JM, Turley SD. Control of cholesterol turnover in the mouse. J Biol Chem. 2002;277(6):3801-3804. doi:10.1074/jbc.R100057200
- Goodman DS, Noble RP, Dell RB. The effects of colestipol resin and of colestipol plus clofibrate on the turnover of plasma cholesterol in man. J Clin Invest. 1973;52(10):2646-2655. doi:10.1172/JCI107457
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Wang DQ. Regulation of intestinal cholesterol absorption. Annu Rev Physiol. 2007;69:221-248. doi:10.1146/annurev.physiol.69.031905.160725
- Bosner MS, Lange LG, Stenson WF, Ostlund RE Jr. Percent cholesterol absorption in normal women and men quantified with dual stable isotopic tracers and negative ion mass spectrometry. J Lipid Res. 1999;40(2):302-308.
- Russell DW. The enzymes, regulation, and genetics of bile acid synthesis. Annu Rev Biochem. 2003;72:137-174. doi:10.1146/annurev.biochem.72.121801.161712
- Miller WL, Auchus RJ. The molecular biology, biochemistry, and physiology of human steroidogenesis and its disorders. Endocr Rev. 2011;32(1):81-151. doi:10.1210/er.2010-0013
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Brown MS, Goldstein JL. The SREBP pathway: regulation of cholesterol metabolism by proteolysis of a membrane-bound transcription factor. Cell. 1997;89(3):331-340. doi:10.1016/s0092-8674(00)80213-5
- Radhakrishnan A, Goldstein JL, McDonald JG, Brown MS. Switch-like control of SREBP-2 transport triggered by small changes in ER cholesterol: a delicate balance. Cell Metab. 2008;8(6):512-521. doi:10.1016/j.cmet.2008.10.008
- Mitsche MA, McDonald JG, Hobbs HH, Cohen JC. Flux analysis of cholesterol biosynthesis in vivo reveals multiple tissue and cell-type specific pathways. Elife. 2015;4:e07999. Published 2015 Jun 26. doi:10.7554/eLife.07999
- KANDUTSCH AA, RUSSELL AE. Preputial gland tumor sterols. 3. A metabolic pathway from lanosterol to cholesterol. J Biol Chem. 1960;235:2256-2261.
- Porter FD, Herman GE. Malformation syndromes caused by disorders of cholesterol synthesis. J Lipid Res. 2011;52(1):6-34. doi:10.1194/jlr.R009548
- Simons K, Vaz WL. Model systems, lipid rafts, and cell membranes. Annu Rev Biophys Biomol Struct. 2004;33:269-295. doi:10.1146/annurev.biophys.32.110601.141803
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Abifadel M, Varret M, Rabès JP, et al. Mutations in PCSK9 cause autosomal dominant hypercholesterolemia. Nat Genet. 2003;34(2):154-156. doi:10.1038/ng1161
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- Glass C, Pittman RC, Weinstein DB, Steinberg D. Dissociation of tissue uptake of cholesterol ester from that of apoprotein A-I of rat plasma high density lipoprotein: selective delivery of cholesterol ester to liver, adrenal, and gonad. Proc Natl Acad Sci U S A. 1983;80(17):5435-5439. doi:10.1073/pnas.80.17.5435
- Tall AR. Cholesterol efflux pathways and other potential mechanisms involved in the athero-protective effect of high density lipoproteins. J Intern Med. 2008;263(3):256-273. doi:10.1111/j.1365-2796.2007.01898.x
- Rye KA, Barter PJ. Formation and metabolism of prebeta-migrating, lipid-poor apolipoprotein A-I. Arterioscler Thromb Vasc Biol. 2004;24(3):421-428. doi:10.1161/01.ATV.0000104029.74961.f5
- Garcia-Ruiz C, Mari M, Colell A, et al. Mitochondrial cholesterol in health and disease. Histol Histopathol. 2009;24(1):117-132. doi:10.14670/HH-24.117
- Miettinen TA, Gylling H. Cholesterol absorption efficiency and sterol metabolism in obesity. Atherosclerosis. 2000;153(1):241-248. doi:10.1016/s0021-9150(00)00404-4
- Sudhop T, Lütjohann D, Kodal A, et al. Inhibition of intestinal cholesterol absorption by ezetimibe in humans. Circulation. 2002;106(15):1943-1948. doi:10.1161/01.cir.0000034044.95911.dc
- Goldstein JL, Brown MS. A century of cholesterol and coronaries: from plaques to genes to statins. Cell. 2015;161(1):161-172. doi:10.1016/j.cell.2015.01.036
- Janowski BA, Willy PJ, Devi TR, Falck JR, Mangelsdorf DJ. An oxysterol signalling pathway mediated by the nuclear receptor LXR alpha. Nature. 1996;383(6602):728-731. doi:10.1038/383728a0
- Kalaany NY, Mangelsdorf DJ. LXRS and FXR: the yin and yang of cholesterol and fat metabolism. Annu Rev Physiol. 2006;68:159-191. doi:10.1146/annurev.physiol.68.033104.152158
- Vella CA, Nelson MC, Unkart JT, Miljkovic I, Allison MA. Skeletal muscle area and density are associated with lipid and lipoprotein cholesterol levels: The Multi-Ethnic Study of Atherosclerosis. J Clin Lipidol. 2020;14(1):143-153. doi:10.1016/j.jacl.2020.01.002
- Hong S, Chang Y, Jung HS, Yun KE, Shin H, Ryu S. Relative muscle mass and the risk of incident type 2 diabetes: A cohort study. PLoS One. 2017;12(11):e0188650. Published 2017 Nov 30. doi:10.1371/journal.pone.0188650

