Struttura, trasporto e necessità biologiche del colesterolo
Un'analisi meccanicistica della suddivisione dei compartimenti, lipoproteina requisiti strutturali e il valore minimo stimato dal modello per il sistema di trasporto in circolazione
Astratto
Contesto. Tutto il corpo colesterolo La distribuzione, i requisiti strutturali delle lipoproteine e la dipendenza dei tessuti dal colesterolo circolante vengono spesso confusi nelle fonti cliniche e didattiche, portando a sopravvalutare la quantità di colesterolo circolante di cui l’organismo “ha bisogno”.”
Metodi. La presente analisi (i) definisce un vocabolario rigoroso basato sui compartimenti che distingue il colesterolo totale corporeo, il colesterolo tissutale, il colesterolo intracellulare e il colesterolo circolante (plasmatico/sierico), e (ii) elabora una stima trasparente, basata su un modello di trasporto, della concentrazione minima di colesterolo circolante necessaria per mantenere l’integrità strutturale delle lipoproteine e soddisfare la domanda esogena dei tessuti, con ipotesi dichiarate, parametri espliciti convertiti in unità di misura e limiti di sensibilità. Le equazioni e gli intervalli dei parametri sono riportati nell’appendice “Metodi” (Sezione 11).
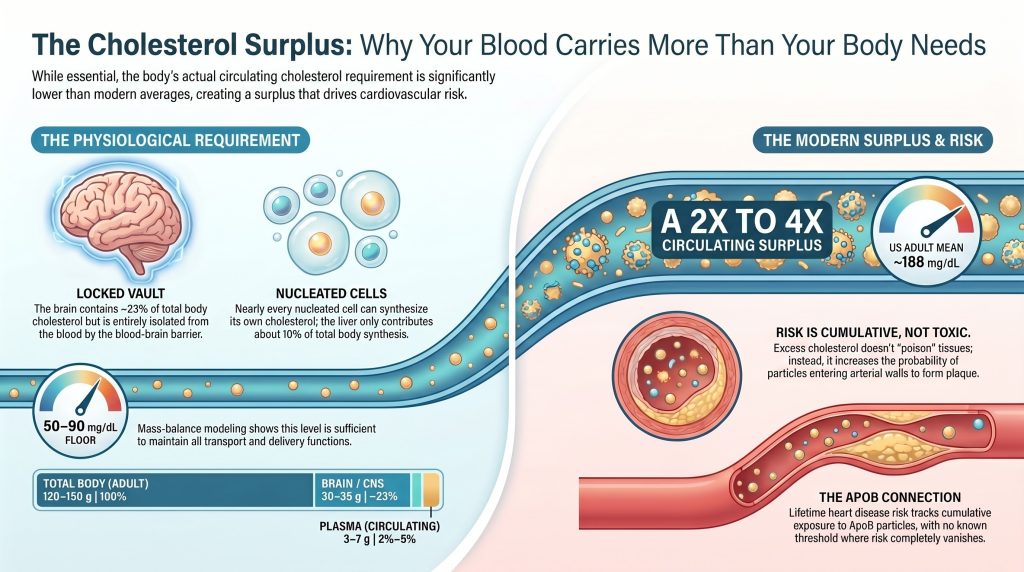
Risultati. (1) Il colesterolo totale nell’organismo di un adulto è pari a circa 120–150 g; il pool plasmatico a rapido ricambio è di 3–7 g (a seconda del volume plasmatico e del valore misurato colesterolo totale (concentrazione) rappresenta il 2–5% del contenuto corporeo. (2) Il solo cervello ne contiene circa 30–35 g, isolati dal plasma mediante il barriera emato-encefalica. (3) Il colesterolo plasmatico è composto da circa 70% di colesterolo esterificato e circa 30% di colesterolo libero. (4) Un modello rappresentativo a 22 nm LDL Una particella (ricostruzione di Hevonoja) contiene circa 2.200 molecole di colesterolo, di cui circa 18% sono colesterolo libero in superficie; le LDL sono eterogenee e questi valori non dovrebbero essere applicati acriticamente a tutte le particelle LDL. (5) In base alle ipotesi del modello di trasporto indicate e utilizzando conteggi delle particelle coerenti con i dati NMR (LDL-P in nmol/L → circa 10¹⁶–10¹⁷ particelle/dL; HDL-P in µmol/L → circa 10¹⁸ particelle/dL), il colesterolo totale plasmatico minimo stimato dal modello, in grado di stabilizzare il sistema lipoproteico e soddisfare al contempo un fabbisogno esogeno netto di circa 50 mg/giorno in un adulto non in stato di gravidanza, è pari a circa 50–90 mg/dL (intervallo di sensibilità 40–110 mg/dL). Si tratta di uno scenario calcolato, non di un minimo fisiologico dimostrato.
Conclusioni. Il valore medio del colesterolo totale plasmatico negli adulti statunitensi, pari a circa 188 mg/dL (NHANES 2017–2018), supera la soglia minima di trasporto stimata dal modello di un fattore che dipende dalle ipotesi formulate, ma che risulta costantemente superiore a 2. Tale eccedenza è tollerata dal punto di vista metabolico, è causalmente correlata al rischio di ASCVD su base per particella di apoB e non è necessaria per alcuna funzione fisiologica nota. Le linee guida cliniche che raccomandano la riduzione del colesterolo LDL per la prevenzione dell’ASCVD operano in un registro epistemico diverso (riduzione degli eventi negli studi clinici) rispetto al presente articolo (modellazione del bilancio di massa); i due aspetti sono complementari, non in conflitto tra loro.
1. Vocabolario basato sui compartimenti
Ogni affermazione relativa al colesterolo contenuta nel presente articolo specifica (i) il compartimento, (ii) la forma chimica e (iii) le unità di misura. La confusione tra le concentrazioni dei lipidi rilevate negli esami clinici e la massa di colesterolo presente nei tessuti o nell’intero organismo è all’origine della maggior parte degli errori quantitativi presenti nella letteratura divulgativa e didattica. Nel presente documento viene utilizzata la seguente terminologia. [1]
| Termine | Significato | Unità tipiche |
| Colesterolo totale nel plasma / colesterolo totale nel siero | Concentrazione di colesterolo totale nella frazione ematica corrispondente (calcolata o misurata direttamente nell'ambito di un profilo lipidico di routine) | mg/dL o mmol/L |
| LDL-C / HDL-C / VLDL-C nel plasma | Colesterolo trasportato dalla classe di lipoproteine indicata nel plasma | mg/dL o mmol/L |
| LDL-P / HDL-P | Concentrazione numerica di LDL oppure HDL particelle (di norma misurate mediante spettroscopia NMR) | LDL-P in nmol/L; HDL-P in µmol/L (si noti la differenza di ordine di grandezza) |
| Colesterolo libero nel plasma / plasma estere del colesterolo | Ripartizione chimica del colesterolo plasmatico tra forme non esterificate ed esterificate (tipicamente ~30% / ~70%) | mg/dL, mmol/L o % di colesterolo totale (TC) plasmatico |
| Massa di colesterolo plasmatico | TC plasmatico × volume plasmatico; la massa assoluta di colesterolo circolante nel plasma in un determinato momento | g (= mg/dL × dL_plasma / 1000) |
| Massa di colesterolo circolante | Massa di colesterolo plasmatico + colesterolo presente nelle membrane degli eritrociti (che viene rapidamente scambiato con il plasma) | g |
| Concentrazione di colesterolo nei tessuti | Colesterolo per unità di massa di tessuto (ad es., cervello: circa 23 mg/g di peso umido) | mg/g di peso umido o secco |
| Colesterolo cellulare / subcellulare | Colesterolo presente in un tipo specifico di cellula, nella membrana di un organello o in un pool | mol% dei lipidi di membrana; µg/mg proteina |
| Colesterolo totale corporeo | Massa di colesterolo nell'intero organismo, distribuita tra tutti i tessuti e i fluidi | g |
| Livello minimo di trasporto stimato dal modello | Concentrazione minima calcolata di colesterolo plasmatico che soddisfa le funzioni strutturali e di trasporto del sistema delle lipoproteine circolanti in base alle ipotesi indicate | mg/dL |
| ■ Le unità delle particelle lipoproteiche sono convenzioni della risonanza magnetica nucleare (NMR)
L'analisi delle sottofrazioni lipoproteiche mediante NMR (LipoProfile e simili) riporta i valori di LDL-P in nanomolari (nmol/L), riflettendo l'intervallo tipico per gli adulti compreso tra circa 10¹⁵ e 10¹⁸ particelle/L. L’HDL-P viene convenzionalmente riportato in micromolari (µmol/L) poiché l’HDL è più abbondante in termini di numero di particelle. Il presente articolo utilizza le convenzioni della risonanza magnetica nucleare (NMR) in tutto il testo e converte i valori in particelle per dL mediante calcoli aritmetici espliciti. |
| ■ Plasma contro siero
Gli esami clinici di routine sui lipidi vengono effettuati sia sul siero che sul plasma; la differenza nei valori del colesterolo rilevati è minima (in genere < 3%). Se non diversamente specificato, tutte le concentrazioni di colesterolo circolante si riferiscono indifferentemente al plasma o al siero. |
2. Distribuzione sistemica e bilancio di massa
2.1 Colesterolo totale
Il colesterolo totale in un adulto è pari a circa 120–150 g, con scalatura in base al peso corporeo. L’intervallo riflette la variabilità interindividuale e intermetodologica negli studi sulla distribuzione tissutale. [2][3] I valori citati nei libri di testo più datati, pari a circa 35 g, si riferiscono esclusivamente al Pool A a scambio rapido di Goodman (fegato + plasma + eritrociti + parte dei visceri) nel modello cinetico del tracciante, e non al contenuto dell’intero organismo. L’analisi quantitativa diretta dei tessuti (Sabine, 1977, riassunta in recenti revisioni) colloca il colesterolo totale nel corpo umano adulto al valore più elevato, con il cervello, il tessuto connettivo (compreso quello adiposo) e il muscolo scheletrico che contribuiscono ciascuno con circa 25–35 g. [2][3]
Il modello a tre pool di Goodman definisce un pool A a scambio rapido (fegato, plasma, eritrociti, tessuto splancnico) di 15–30 g, un pool B a scambio lento (muscolo scheletrico, tessuto adiposo, tessuto connettivo denso) di 35–60 g, e un pool del sistema nervoso centrale (SNC) cineticamente isolato di circa 30–35 g. [4][5] Il solo compartimento plasmatico contiene 3–7 g di colesterolo, a seconda del volume plasmatico e della concentrazione plasmatica misurata di colesterolo totale.
2.2 Distribuzione nei tessuti
Distribuzione ipotizzando un livello totale di colesterolo corporeo pari a circa 140 g (valore medio rappresentativo). Tutti i dati si riferiscono alla massa di colesterolo nei tessuti. [2][3]
| Scomparto | Colesterolo (g) | % del totale del corpo | Forma chimica dominante |
| Cervello / Sistema nervoso centrale (mielina + membrane neurali) | 30–35 | ~22–25% | >99,51 TP9T libero (non esterificato) |
| Muscolo scheletrico | ~25–30 | ~18–22% | Libero (membrana plasmatica) |
| Tessuto connettivo, tessuto adiposo, fluidi corporei | ~25–32 | ~18–23% | Misto; il CE si accumula con l'età nel tendine/nella dura madre |
| Pelle | ~12–18 | ~9–13% | Gratis |
| Altre frattaglie (polmoni, reni, intestino, ecc.) | ~12–18 | ~9–13% | Prevalentemente gratuito |
| Fegato | ~4–6 | ~3–4% | Misto FC + CE |
| Plasma / pool circolante | 3–7 | ~2–5% | ~70% CE / ~30% FC |
| Cuore, milza, ghiandole surrenali (per organo) | <1 pezzo ciascuno | <1% | Elevata densità per grammo (surrene ≥ 25 mg/g) |
Il sistema nervoso centrale contiene circa 22–251 TP9T di colesterolo corporeo, con la concentrazione tissutale più elevata (circa 23 mg/g di peso umido). [5][6] La barriera emato-encefalica è impermeabile al colesterolo delle lipoproteine; l'intero pool di colesterolo del sistema nervoso centrale (SNC) viene sintetizzato localmente. Il colesterolo dei neuroni corticali viene rinnovato con un'emivita compresa tra 6 mesi e 5 anni; quello della mielina viene rinnovato nell'arco di decenni. L'efflusso netto dal SNC avviene principalmente sotto forma di 24S-idrossicolesterolo, che attraversa la barriera emato-encefalica e viene eliminato nel plasma. [5][6][7]
2.3 Massa del colesterolo plasmatico a diverse concentrazioni di colesterolo totale plasmatico
La massa di colesterolo plasmatico è il prodotto del volume plasmatico per la concentrazione plasmatica di colesterolo totale. A un volume plasmatico rappresentativo di 3,0 L:
| TC plasmatica (mg/dL) | Massa di colesterolo plasmatico (g, 3,0 L di plasma) | Contesto clinico |
| 50 | 1.5 | Al di sotto dell’intervallo tipico per i neonati; rare mutazioni con perdita di funzione (LOF) |
| 80 | 2.4 | Segnalato PCSK9 Intervallo degli omozigoti LOF |
| 100 | 3.0 | Inibitore di PCSK9 obiettivi durante il trattamento |
| 150 | 4.5 | Obiettivo terapeutico nella terapia ipolipemizzante intensiva |
| 188 | 5.6 | Media negli Stati Uniti per gli adulti (NHANES 2017–2018) [8] |
| 220 | 6.6 | Al di confine con il limite superiore |
| 280 | 8.4 | Intervallo di valori per l'FH eterozigote |
| ■ Il volume plasmatico varia in base alle dimensioni corporee
Il volume plasmatico negli adulti è di circa 40–45 mL/kg di peso corporeo (~2,8–3,2 L per un adulto di 70 kg, ~3,5–4,0 L per un adulto di 90 kg). Tutti i calcoli relativi alla massa plasmatica riportati in questo articolo utilizzano un valore rappresentativo di 3,0 L, salvo diversa indicazione. |
2.4 Distribuzione subcellulare e il sensore del colesterolo nel reticolo endoplasmatico
Nella maggior parte delle cellule non neurali, la membrana plasmatica contiene 60–90% di colesterolo cellulare su 30–40 mol% di lipidi della membrana plasmatica, mentre il reticolo endoplasmatico ne contiene solo 3–6 mol%. [9][10] Il gradiente è regolato dall’SREBP2 in combinazione con SCAP e Insig: quando il colesterolo nel reticolo endoplasmatico supera i ~5 mol%, SCAP trattiene l’SREBP2 nel reticolo endoplasmatico e la sintesi viene inibita. [11] Das et al. (eLife 2014) hanno suddiviso il colesterolo della membrana plasmatica in tre pool funzionali utilizzando una sonda Perfringolysin O (PFO*): un pool sequestrato nella sfingomielina (~15 mol% di lipidi della PM), un pool “essenziale” necessario per la vitalità cellulare e un pool “accessibile” che fluisce verso il reticolo endoplasmatico (ER) per regolare la sintesi. [11][12] È la piscina accessibile — e non il colesterolo PM in grandi quantità — a fungere da segnale regolatore.
| ▲ La soglia di legame del PFO* si applica ai doppio strati della membrana plasmatica, non ai monostrati di lipoproteine.
La soglia di accessibilità di 35 mol% al PFO* nelle membrane plasmatiche riflette l'architettura del doppio strato e la complessazione sfingomielina-colesterolo specifica della membrana plasmatica. [11][12] Le superfici delle particelle LDL e HDL sono monostrati di fosfolipidi stabilizzati da apolipoproteine; presentano una composizione lipidica diversa, un’asimmetria dei foglietti e vincoli di impacchettamento diversi. La soglia non dovrebbe essere applicata direttamente alle superfici delle lipoproteine senza un’ulteriore analisi. |
2.5 Fatturato giornaliero
De novo a livello dell'intero organismo sintesi del colesterolo negli adulti è di circa 10 mg/kg/giorno (circa 700 mg/giorno in un adulto di 70 kg, circa 880 mg/giorno in un adulto di 88 kg). Il fegato contribuisce solo per circa il 10% alla sintesi totale nell’uomo; la maggior parte avviene a livello extraepatico. [13] Gli studi con tracciante a tre comparti sul ricambio del colesterolo plasmatico indicano un tasso di produzione totale (sintesi più assorbimento alimentare) pari a circa1,0–1,2 g al giorno in soggetti normolipidemici. [4] L'apporto alimentare (~300–500 mg/giorno con una dieta occidentale, ~30–50% assorbiti) viene compensato dalla riduzione della sintesi endogena. [14]
3. Architettura delle lipoproteine e distribuzione del colesterolo
3.1 Composizione rappresentativa delle particelle di LDL da 22 nm
La ricostruzione riportata di seguito è tratta da Hevonoja et al. (BBA 2000) e riguarda una particella LDL rappresentativa del diametro di 22 nm. [15][16][17]
| Componente | Molecole / particelle | Frazione in massa (%) | Posizione |
| Esteri del colesterolo (CE) | ~1,600 | 40–45% | Nucleo |
| Colesterolo non esterificato (FC) | ~600 | 8–10% | ~400 in superficie, ~200 nel nucleo |
| Trigliceridi (TG) | ~170 | 5–9% | Nucleo |
| Fosfatidilcolina | ~450 | } 19–21% combinato | Monostrato superficiale |
| Sfingomielina | ~185 | (fosfolipidi totali) | Monostrato superficiale |
| ApoB-100 (copia singola) | 1 | 20–25% | Avvolge la superficie |
Il colesterolo totale per particella LDL rappresentativa è pari a circa 2.200 molecole; l’FC superficiale rappresenta circa 18% di Colesterolo LDL. Alcuni studi generali riportano un valore di circa 1.500 di colesterolo per particella media di LDL, il che riflette i diversi metodi di calcolo della media applicati alla distribuzione delle dimensioni delle particelle di LDL; entrambi i valori rappresentano descrizioni della tendenza centrale di una popolazione intrinsecamente eterogenea. [16]
| ▲ L'LDL è eterogeneo.
L'LDL in vivo ha dimensioni comprese tra circa 22 e 27,5 nm, con notevoli variazioni nella composizione; LDL piccole e dense contiene meno colesterolo per particella ed è ricca di trigliceridi, mentre le particelle LDL grandi e galleggianti ne contengono di più. La ricostruzione di Hevonoja rappresenta una particella rappresentativa della tendenza centrale e non dovrebbe essere applicata acriticamente a tutte le specie di LDL. |
3.2 Rapporto tra plasma libero ed esterificato
Misurazioni enzimatiche e cromatografiche dirette effettuate su siero umano sano indicano che il colesterolo libero nel plasma rappresenta circa il 25–30% del colesterolo plasmatico totale, mentre la frazione esterificata rappresenta circa il 70–75%. [18][19] In alcuni studi, un rapporto FC/CE elevato è associato a disfunzione della LCAT, chilomicronemia familiare e costituisce un fattore aterogenico indipendente. [20]
3.3 Colesterolo libero in superficie: ruolo strutturale
Il colesterolo libero presente sulla superficie delle lipoproteine si inserisce tra le catene aciliche dei fosfolipidi, con il suo gruppo 3β-idrossile che sporge nell’interfaccia acquosa e la sua struttura rigida sterolo anello allineato con le code lipidiche. Questa “condensazione” riduce il volume libero nel monostrato, diminuisce la sua permeabilità all’acqua e aumenta la stabilità meccanica della particella. [21][22] Un FC pari a circa 25 mol% di lipidi di superficie è compatibile con un monostrato in ordine liquido e ben compatto; tale configurazione favorisce la stabilità delle particelle e la mobilità laterale necessarie per il processo enzimatico. [23]
3.4 Scambio di colesterolo libero
Il colesterolo libero presente sulla superficie delle lipoproteine si trova in equilibrio spontaneo con le membrane cellulari e altre particelle lipoproteiche tramite diffusione acquosa passiva. Il tempo di dimezzamento dello scambio è inversamente proporzionale alla curvatura della superficie: circa 5 minuti per le HDL nascenti, circa 45 minuti per le LDL. [21][23] Questo sistema cinetico mantiene un’attività termodinamica del colesterolo pressoché uniforme su tutte le superfici lipidiche extracellulari. [22][23]
4. Esteri del colesterolo: trasporto di sostanze
Gli esteri del colesterolo sono completamente idrofobici e si trovano nel nucleo delle lipoproteine sotto forma di goccioline liquide o a cristalli liquidi. Gli esteri di colesterolo (CE) presenti nelle LDL rappresentano il 40–45% della massa delle particelle e costituiscono la maggior parte del colesterolo trasportato alle cellule tramite endocitosi mediata da recettori, dove la lipasi acida lisosomiale libera il colesterolo libero per il suo utilizzo. [17]
CETP trasporta il CE dall'HDL alle lipoproteine contenenti apoB in cambio di trigliceridi, arricchendo apoB particelle che trasportano colesterolo. Una parte consistente del CE del nucleo delle particelle di apoB riflette quindi il colesterolo che ha compiuto un ciclo attraverso le cellule periferiche, il plasma e le HDL prima di essere trasferito sulle LDL, sovrapponendosi alle riserve epatiche di colesterolo secrete sotto forma di VLDL. [24]
5. Maturazione dell’HDL
L'HDL in fase iniziale viene secreta sotto forma di apoA-I povera di lipidi, che acquisisce fosfolipidi e colesterolo libero dalle cellule periferiche tramite ABCA1, formando una particella discoidale costituita da due molecole di apoA-I in una conformazione a “doppia fascia”. [25] L'LCAT, attivata dall'apoA-I, trasferisce un gruppo acilico dalla posizione sn-2 della fosfatidilcolina all'FC di superficie, generando CE che migra nel nucleo idrofobico. [23][25]
Man mano che il CE si accumula, il doppio strato discoidale assume una forma sferica. L’HDL2 maturo raggiunge un diametro di circa 10–12 nm e trasporta circa 30–60 molecole di colesterolo per particella (principalmente CE), con circa 5–15 FC in superficie. [23] Il CE ritorna direttamente al fegato tramite SR-B1 oppure vengono trasferiti alle particelle di apoB tramite la CETP per essere eliminati dal fegato attraverso LDLR. [23][24]
6. Fabbisogno di tessuti: sintesi de novo e assorbimento esogeno
6.1 La maggior parte dei tessuti nucleati è in grado di sintetizzare il colesterolo de novo
Ogni cellula nucleata del corpo umano esprime l'intera via biosintetica del mevalonato-colesterolo. [13][26] In condizioni normali, la maggior parte dei tessuti non dipende in modo assoluto da un apporto continuo di colesterolo esogeno proveniente dal plasma; l’equilibrio quantitativo tra la sintesi locale e l’assorbimento derivante dalle lipoproteine varia a seconda del tessuto, dell’età e dello stato fisiologico.
| Tessuto | Fonte primaria di colesterolo | Note |
| Cervello / Sistema nervoso centrale | Sintesi locale (astrociti → neuroni tramite apoE) | Il BBB esclude il colesterolo lipoproteico; efflusso netto tramite il colesterolo 24S-OH [7] |
| Muscolo scheletrico | Sintesi prevalentemente locale | Scarsa domanda di nuovo sterolo |
| Pelle | ~90% sintesi locale | Sostiene la funzione di barriera |
| Corteccia surrenale | Differenze: LDLR > SR-B1 nell’uomo; situazione inversa nei roditori [27][28] | Le riserve di CE soddisfano il fabbisogno steroido-genico acuto |
| Gonadi (testicoli, ovaie) | Misto: LDLR + SR-B1; dipendente dallo stato riproduttivo | La gravidanza e l'allattamento aumentano il fabbisogno |
| Placenta | LDL e HDL materni; solo in gravidanza | Al di fuori dell'ambito dell'analisi sugli adulti non in stato di gravidanza |
| Fegato | Sintesi + alimentazione + trasporto inverso | Regolatore principale; secerne VLDL |
Nella fisiologia surrenale e gonadica umana, l’endocitosi mediata dall’LDLR riveste un ruolo quantitativamente più rilevante rispetto all’SR-B1 nel trasporto del colesterolo — contrariamente al modello osservato nei roditori, in cui l’SR-B1 è predominante. Ciononostante, l’SR-B1 rimane espresso e biologicamente attivo nei tessuti steroidogenici umani, e la perdita di funzione dell’SR-B1 nell’uomo produce anomalie sottili ma reali nella risposta del cortisolo stimolata dall’ACTH. La natura a doppia via dell’apporto di colesterolo nei processi steroidogenici umani dovrebbe essere tenuta in considerazione in qualsiasi discussione meccanicistica. [27][28]
6.2 Cinetica del recettore LDL: i modelli in vitro e in vivo non sono intercambiabili
In vitro: Nei fibroblasti umani in coltura, il legame ad alta affinità dell’apoB-100 delle LDL raggiunge la saturazione a concentrazioni proteiche delle LDL inferiori a 50 µg/mL (Brown & Goldstein). [29][30] Catapano e colleghi (2024) descrivono questo fenomeno come una semisaturazione corrispondente a un equivalente plasmatico di LDL-C pari a circa 2,5 mg/dL, e lo associano all’osservazione che l’LDL-C nel liquido interstiziale è pari a circa 20% dell’LDL-C plasmatico per sostenere che un livello plasmatico di LDL-C di circa 12,5 mg/dL saturerebbe le LDLR tissutali. [31] Questa argomentazione si basa su ipotesi intermedie relative al rapporto tra la massa proteica e quella del colesterolo delle LDL, alla composizione del liquido interstiziale e all’uniformità del comportamento dei recettori LDL (LDLR) dei fibroblasti; il presente articolo cita tale argomentazione senza però considerarla come una soglia misurata nell’uomo.
In vivo: La clearance dell’LDL a livello d’organo nei ratti e nei criceti (Spady & Dietschy) fornisce un valore di Km ≈ 90 mg/dL — circa 30 volte superiore, il che riflette la presenza di strati limite non agitati, la permeabilità capillare e la densità dei recettori piuttosto che l’affinità intrinseca. [32] Questo dato relativo ai roditori in condizioni in vivo non è direttamente trasferibile alle soglie di assorbimento del colesterolo a livello tissutale nell’uomo.
| ▲ La cinetica di saturazione dei recettori non costituisce una soglia univoca per la somministrazione nell’uomo.
La catena (Km dei fibroblasti in vitro → LDL-C equivalente al plasma → saturazione dell'LDLR nel liquido interstiziale nelle cellule surrenali/gonadiche) si basa su ipotesi che non sono state validate in modo indipendente nell'uomo, e gli epatociti sono esposti al sangue sinusoidale piuttosto che al normale liquido interstiziale. L’affermazione sostanzialmente difendibile è di natura empirica: gli esseri umani con livelli plasmatici di LDL-C molto bassi, in base a genetica o in terapia, non hanno mostrato segni clinici di insufficienza nell’apporto di colesterolo nelle popolazioni oggetto dello studio. |
6.3 Osservazioni empiriche: livelli molto bassi di LDL-C nell’uomo
I portatori di mutazioni omozigoti con perdita di funzione del gene PCSK9 costituiscono un campione limitato, secondo quanto riportato. Gli omozigoti afroamericani dello studio Dallas Heart Study, descritti originariamente, presentavano livelli plasmatici di LDL-C per tutta la vita pari a 14–29 mg/dL (colesterolo totale solitamente compreso tra 50 e 80 mg/dL) senza evidenti anomalie cliniche, secondo le poche descrizioni pubblicate. [33][34] Il numero totale di individui omozigoti di questo tipo segnalati a livello globale rimane esiguo; pertanto, questi dati confermano l'assenza di effetti nocivi di ampia portata, ma non dimostrano l'esistenza di un minimo fisiologico universale.
Ulteriori prove provengono dagli studi randomizzati sugli inibitori della PCSK9. Fourier (n = 27.564) hanno avuto un follow-up mediano dopo randomizzazione di 2,2 anni, con un valore mediano di LDL-C durante il trattamento pari a 30 mg/dL e nessun segno di insufficienza surrenalica, ipogonadismo, declino cognitivo, ictus emorragico, o una malattia muscolare. [35] Odissea Lo studio OUTCOMES (n = 18.924) ha avuto un follow-up mediano di 2,8 anni, con risultati simili in termini di sicurezza. [36] L'estensione in aperto FOURIER (FOURIER-OLE, n = 6.635 su un totale iniziale di 27.564) ha aggiunto una mediana 5,0 anni di evolocumab esposizione, portando esposizione cumulativa in quel sottogruppo a circa 8,4 anni, senza che siano emersi nuovi segnali di sicurezza. [37] Si tratta di dati prospettici su larga scala relativi alla sicurezza; pur non costituendo una misurazione diretta delle soglie di assorbimento del colesterolo nell’uomo, essi definiscono dall’alto l’intervallo di sicurezza empiricamente dimostrato per il colesterolo LDL plasmatico.
Negli studi sul sistema linfatico periferico umano, è stato riportato che la concentrazione di LDL nel liquido interstiziale è pari a circa 10–20% della concentrazione plasmatica di LDL. [38][39] Questi dati sono di natura descrittiva e non stabiliscono una soglia misurata di saturazione dei tessuti umani.
7. Una stima basata sul modello di trasporto del colesterolo circolante minimo
| ■ Cosa è e cosa non è questa sezione.
Questa sezione presenta una stima, basata su un modello di trasporto, della concentrazione minima di colesterolo plasmatico che, contemporaneamente, (i) mantiene l’integrità strutturale del sistema delle lipoproteine circolanti e (ii) soddisfa il fabbisogno giornaliero netto di colesterolo esogeno di un adulto non in stato di gravidanza in condizioni normali. La stima è il risultato di un calcolo, non di una misurazione. Le equazioni e i valori dei parametri sono riportati nella Sezione 11. |
7.1 Integrità strutturale
Tutte le particelle di lipoproteine circolanti necessitano di colesterolo libero in superficie per stabilizzare il proprio monostrato fosfolipidico. Utilizzando conteggi delle particelle coerenti con i dati NMR (LDL-P in nmol/L; HDL-P in µmol/L) e una conversione esplicita delle unità: [15][17]
| Classe di particelle | Indirizzo di specializzazione (clinico) | Particelle per dL | FC superficiale per particella | Contributo del Surface FC (mg/dL) |
| LDL | LDL-C 100 mg/dL; LDL-P ~1.200 nmol/L | ~7,1 × 10¹⁶ | ~400 | ~18 |
| HDL | HDL-C 50 mg/dL; HDL-P ~30 µmol/L | ~1,8 × 10¹⁸ | ~10 | ~12 |
| VLDL / IDL | Determinato tramite TG; conta delle particelle ~10¹⁵–10¹⁶ /dL | — | ~variabile | ~2–3 |
| Superficie totale FC (modello, TC di riferimento ~190) | — | — | — | ~30–33 |
| FC plasmatico totale misurato (~28% di TC a TC 190) | — | — | — | ~50–55 (comprende FC principali e altro) |
La concentrazione di FC superficiale derivata dal modello, pari a circa 30–33 mg/dL a valori lipidici clinici tipici, sommata alla concentrazione di FC centrale pari a circa 10–15 mg/dL (l’LDL presenta circa 200 FC del nucleo per particella, mentre l’HDL ha un contributo minore in termini di FC del nucleo), e un modesto contributo dei residui di chilomicroni e dell’Lp(a), dà un totale di circa 45–55 mg/dL di FC plasmatico. Questo dato corrisponde alla frazione FC plasmatica, misurata direttamente, pari a ~25–30% del colesterolo totale, con un livello di colesterolo totale di ~190 mg/dL. [18][19]
7.2 Apporto netto giornaliero di colesterolo esogeno ai tessuti periferici
Trasporto inverso del colesterolo Studi con tracciante condotti su adulti sani (Turner et al., 2012) stimano l’efflusso di FC dai tessuti di tutto il corpo pari a 3,79 ± 0,88 mg/kg/h, riportato nell’articolo originale come ≈8 g/giorno; ciò corrisponde a ~6,4 g/giorno a 70 kg o a ~8 g/giorno a 88 kg (peso corporeo medio approssimativo dello studio). [40] Si tratta di un flusso di scambio bidirezionale, non della domanda netta di apporto. L’assorbimento esogeno netto stimato da parte dei tessuti, la cui sintesi locale è insufficiente in condizioni di base, in un adulto non in stato di gravidanza, è approssimativamente pari a:
| Tessuto / funzione | Consumo giornaliero stimato di colesterolo | Fonte di approvvigionamento |
| Steroidogenesi surrenale (valori basali) | circa 30–60 mg al giorno | Principalmente mediata dall’LDLR; contributo dell’SR-B1 |
| Steroidogenesi gonadica (adulto non in stato di gravidanza, valori basali) | < 10 mg al giorno | Nell’uomo è mediata prevalentemente dall’LDLR |
| Acido biliare sintesi | circa 400 mg al giorno | Pool epatico; non si tratta di una richiesta periferica |
| Ricambio delle membrane extraepatiche (totale) | circa 600–700 mg al giorno | Ottenuto tramite sintesi locale |
| Domanda esogena netta obbligatoria (adulto non in stato di gravidanza, valore di riferimento) | Ordine di grandezza di decine di mg/giorno (~50 mg/giorno, stima centrale) | Rilevato un livello plasmatico di colesterolo LDL molto basso |
| ▲ Adulta non in stato di gravidanza, solo dati basali.
La gravidanza raddoppia all’incirca il colesterolo plasmatico materno; il fabbisogno placentare è di un ordine di grandezza diverso e non viene preso in considerazione in questa analisi. Anche le malattie acute, lo stress grave e la rapida rigenerazione dei tessuti aumentano tale fabbisogno. |
7.3 Valore minimo del trasporto stimato dal modello combinato
Risultati del modello per un intervallo di valori di TC del plasma:
| Scenario TC al plasma | Concentrazione di colesterolo libero (FC) sulla superficie delle LDL (mg/dL) | FC di HDL (mg/dL) | FC plasmatica totale (mg/dL) | Note |
| TC 188 (media USA) | ~18 | ~12 | ~50–55 | Linea di base |
| TC 100 (bersaglio del recettore PCSK9) | ~10 | ~10 | ~30 | Adeguato; ben al di sopra di qualsiasi livello strutturale |
| TC 70 (omozigote per la perdita di funzione del gene PCSK9) | ~4 | ~9 | ~17 | A livello del pavimento modello o nelle sue vicinanze; tollerato empiricamente |
| TC 50 (genetico estremo) | ~2 | ~8 | ~13 | Al di là di qualsiasi caso empirico ben convalidato |
In conclusione: Il modello di trasporto prevede che un adulto non in stato di gravidanza, in condizioni di base, possa mantenere un sistema lipoproteico circolante funzionale e soddisfare un fabbisogno tissutale esogeno di circa 50 mg/giorno a livelli di colesterolo totale plasmatico dell’ordine di 50–90 mg/dL (intervallo di sensibilità 40–110 mg/dL). La forma chimica rimane approssimativamente per il 70% esterificata e per il 30% non esterificata in questo intervallo. La stima minima del modello è numericamente in accordo con il TC plasmatico osservato negli omozigoti con LOF del gene PCSK9 (~50–80 mg/dL), fornendo una conferma indipendente rispetto alle osservazioni cliniche e genetiche. Il valore medio moderno del TC plasmatico negli adulti statunitensi è di ~188 mg/dL [8] supera il limite minimo stimato dal modello di circa 2–4 volte, a seconda dello scenario di sensibilità utilizzato.
7.4 Intervalli di sensibilità
| Ipotesi variabile | Gittata testata | Impatto sulla stima relativa al settore dei trasporti |
| Volume plasmatico | 2,5–4,0 L | Scala inversa; effetto primario sulla massa assoluta, effetto secondario su mg/dL |
| LDL-P a un dato livello di LDL-C | ± 50% di riferimento | Influisce in modo proporzionale sul componente FC |
| FC superficiale per particella di LDL | 300–500 | ± 15% sul componente FC |
| FC per particella di HDL | 5–15 | ± 25% sulla componente FC dell'HDL |
| Domanda netta di beni e servizi | 20–150 mg al giorno | Aggiunge un margine compreso tra 5 e 30 mg/dL |
| Gravidanza / malattia acuta | — | Modello non applicabile; la domanda può aumentare da 2 a 10 volte |
| Intervallo plausibile combinato (adulto non in stato di gravidanza, valore basale) | — | ~40–110 mg/dL di colesterolo totale (TC) plasmatico |
8. Causalità dell’ApoB e rischio di ASCVD
Il fatto che i tessuti periferici abbiano bisogno del colesterolo circolante è una questione distinta dal fatto che le lipoproteine circolanti contenenti apoB siano causalmente aterogene. Randomizzazione mendeliana su oltre 50 strumenti genetici (LDLR, PCSK9, HMGCR, NPC1L1, APOB, ANGPTL3, LPL, CETP) ha dimostrato che il rischio di ASCVD nel corso della vita dipende dall’esposizione cumulativa alle particelle di apoB piuttosto che dalla sola concentrazione assoluta di LDL-C, con un relazione log-lineare tra l’apoB e il rischio di eventi al di sotto dei 20 mg/dL di colesterolo LDL. [41][42]
Il rischio aterogenico associato a una data massa di colesterolo circolante è determinato dal numero di particelle (conta dell'apoB) e dal tempo di permanenza, non dal fatto che il colesterolo sia necessario per il trasporto ai tessuti. Le due questioni sono fisiologicamente ortogonali.
9. Contesto evolutivo e meccanicistico
La biosintesi del colesterolo richiede 11 molecole di O₂ e circa 100 equivalenti di ATP per ogni molecola di colesterolo, e comporta la formazione di intermedi tossici. [43][44] Questa spesa energetica è coerente con l'ipotesi secondo cui il colesterolo sarebbe emerso nel corso dell'adattamento degli eucarioti all'aumento della tensione di ossigeno nell'atmosfera; il colesterolo, infatti, consuma O₂ durante la sintesi e riduce la permeabilità all'O₂ delle membrane, fungendo in parte da serbatoio di O₂. [44]
Alla luce della prospettiva di modellizzazione sviluppata nella Sezione 7, il sistema di trasporto delle lipoproteine può essere interpretato al meglio come (i) un veicolo per la distribuzione dei trigliceridi — l’LDL è un sottoprodotto cinetico del catabolismo delle VLDL — e (ii) un tampone cinetico del potenziale chimico che mantiene un’attività degli steroli uniforme su tutte le superfici lipidiche extracellulari. [22][23] Secondo questa interpretazione, la concentrazione di colesterolo circolante nella popolazione moderna è determinata principalmente dalla capacità di clearance epatica (densità dell’LDLR, attività della PCSK9, attività dell’IDOL) piuttosto che dalla domanda periferica.
10. Conclusioni
- Il colesterolo totale nell'organismo di un adulto è pari a circa 120–150 g; la frazione plasmatica, pari a 3–7 g, rappresenta il 2–5%, e non il 10–30%, del contenuto corporeo.
- Il cervello contiene circa 30–35 g (22–25%) del colesterolo presente nell'organismo, interamente sintetizzato in loco e isolato dal plasma grazie alla barriera emato-encefalica.
- Una particella LDL rappresentativa da 22 nm contiene circa 2.200 molecole di colesterolo (circa 1.600 CE + circa 600 FC, di cui circa 400 FC presenti sulla superficie). L'LDL è eterogeneo; questi numeri descrivono una ricostruzione rappresentativa.
- Il colesterolo plasmatico è per circa il 70% esterificato e per circa il 30% libero.
- Nell'uomo, l'endocitosi mediata dall'LDLR riveste un ruolo più importante rispetto all'SR-B1 nell'assorbimento del colesterolo da parte delle ghiandole surrenali e delle gonadi, ma l'SR-B1 rimane biologicamente attivo.
- Utilizzando i valori delle particelle lipoproteiche (LDL-P in nmol/L, HDL-P in µmol/L) coerenti con la risonanza magnetica nucleare (NMR), il valore minimo stimato dal modello per il colesterolo totale plasmatico in un adulto non in stato di gravidanza in condizioni basali è di circa 50–90 mg/dL (sensibilità 40–110 mg/dL). Si tratta di uno scenario calcolato, non di un minimo fisiologico umano misurato direttamente.
- L’apporto giornaliero netto di colesterolo esogeno ai tessuti periferici in un adulto non in stato di gravidanza in condizioni basali è dell’ordine di decine di mg/giorno, facilmente soddisfatto con livelli plasmatici di LDL-C compresi nell’intervallo 15–30 mg/dL osservati nei portatori di LOF del gene PCSK9 e nei soggetti partecipanti agli studi clinici sugli inibitori del PCSK9 (mediana dello studio FOURIER pari a 2,2 anni, mediana del sottogruppo FOURIER-OLE pari a 5,0 anni aggiuntivi), nei quali non è stato segnalato alcun segno di insufficienza nell’apporto di colesterolo.
- Il valore medio del colesterolo totale plasmatico negli adulti statunitensi, pari a circa 188 mg/dL (NHANES 2017–2018), supera il limite minimo di trasporto stimato dal modello di circa 2–4 volte, a seconda dello scenario di sensibilità utilizzato. Tale eccesso è metabolicamente tollerato, è causalmente correlato al rischio di ASCVD su base apoB e non è necessario per alcuna funzione fisiologica nota in un adulto non in stato di gravidanza in condizioni basali.
11. Appendice sui metodi
11.1 Ambito di applicazione
La presente appendice illustra le equazioni, i valori dei parametri e le ipotesi utilizzate nella stima del modello di trasporto di cui alla Sezione 7.
11.2 Equazioni
Massa di colesterolo plasmatico:
M_plasma = TC × V_plasma / 1000 (g)
dove TC è espresso in mg/dL e V_plasma in dL.
Conversione della concentrazione di particelle misurata mediante NMR in particelle per dL:
N_particelle_per_dL = [class-P] × 10⁻⁹ × N_A / 10 (LDL: [LDL-P] in nmol/L)
N_particelle_per_dL = [P_classe] × 10⁻⁶ × N_A / 10 (HDL: [P_HDL] in µmol/L)
dove N_A = 6,022 × 10²³ /mol. Il simbolo /10 converte L in dL.
Esempio pratico, LDL-P = 1.200 nmol/L:
1.200 × 10⁻⁹ × 6,022 × 10²³ / 10 = 7,23 × 10¹⁶ particelle/dL
Esempio pratico, HDL-P = 30 µmol/L:
30 × 10⁻⁶ × 6,022 × 10²³ / 10 = 1,81 × 10¹⁸ particelle/dL
Contributo del Surface FC da parte di una classe di lipoproteine:
[FC]_classe (mg/dL) = N_particelle_per_dL × n_FC,classe × MW_col × 1000 / N_A
Esempio pratico: LDL con LDL-C pari a 100 (N = 7,23 × 10¹⁶/dL), 400 FC superficiali per particella, MW_chol = 386,7 g/mol:
7,23 × 10¹⁶ × 400 × 386,7 × 1000 / 6,022 × 10²³ = ~18,2 mg/dL
Valore minimo complessivo del trasporto stimato dal modello:
TC_pavimento ≈ Σ [FC]_classe,superficie + Σ [FC]_classe,nucleo + CE_nucleo,strutturale + CE_riserva_consegna
11.3 Valori dei parametri utilizzati
| Parametro | Valore centrale | Fonte / base | Intervallo di sensibilità |
| Volume plasmatico | 3,0 L (= 30 dL) | ~42 mL/kg × 70 kg | 2,5–4,0 L |
| LDL-P con LDL-C pari a 100 mg/dL | ~1.200 nmol/L (= 7,1 × 10¹⁶ /dL) | Dati NMR LipoProfile; MESA, Giove | 600–1.800 nmol/L |
| HDL-P con HDL-C pari a 50 mg/dL | ~30 µmol/L (= 1,8 × 10¹⁸ /dL) | Dati NMR | 20–40 µmol/L |
| FC superficiale per particella di LDL | 400 | Ricostruzione di Hevonoja 2000 [15] | 300–500 |
| FC per particella di HDL (totale) | ~10 | Analisi della composizione dell’HDL2/3; calcolata a partire dai valori di HDL-C / HDL-P ai valori centrali | 5–15 |
| Domanda esogena periferica giornaliera netta (adulto non in stato di gravidanza) | circa 50 mg al giorno | Media ponderata delle stime relative alle ghiandole surrenali, alle gonadi e alle membrane [26][27] | 20–150 mg al giorno |
| Colesterolo MW | 386,7 g/mol | Corretto | n/a |
| Il numero di Avogadro | 6,022 × 10²³ /mol | Corretto | n/a |
11.4 Ipotesi
Il calcolo della superficie di trasporto dipende dalle ipotesi qui esplicitate:
- L'adulto non in stato di gravidanza si trova in uno stato di equilibrio metabolico in condizioni di base (assenza di gravidanza, assenza di malattie acute, assenza di rigenerazione tissutale rapida).
- Il volume plasmatico viene considerato come un unico valore rappresentativo anziché come un dato individualizzato.
- Il numero di particelle varia in modo approssimativamente lineare al variare della concentrazione di colesterolo di classe nell'intervallo considerato dal modello; tale approssimazione non è più valida nei casi estremi.
- Il valore di FC superficiale per le LDL è tratto dalla ricostruzione di Hevonoja; la composizione superficiale varia leggermente a seconda delle dimensioni delle particelle e dello stato di rimodellamento.
- La concentrazione di FC per particella di HDL riflette la composizione delle particelle HDL2/3 mature di forma sferica; le particelle nascenti di HDL di forma discoidale presentano un contenuto di FC per particella diverso.
- La domanda periferica netta è stimata nell'ordine di decine di mg/giorno; tale valore rappresenta l'aggregato di valori a livello tissutale che presentano un ampio margine di incertezza a seconda dei diversi stati endocrini.
- Lp(a), chilomicroni, e i residui dei chilomicroni non vengono modellati separatamente; includerli comporterebbe un leggero aumento del contributo della FC.
- Il modello è in regime stazionario e non tiene conto delle variazioni diurne, postprandiale, e le variazioni stagionali.
11.5 Cosa non stabilisce la presente appendice
La presente appendice non stabilisce un valore minimo fisiologico misurato per il colesterolo totale nell’uomo. Fornisce invece una stima trasparente e riproducibile basata su un modello di trasporto. Le prove empiriche dirette relative alla sicurezza di livelli plasmatici molto bassi di colesterolo LDL nell’uomo (portatori di mutazioni LOF del gene PCSK9; partecipanti agli studi clinici sugli inibitori del PCSK9) sono presentate separatamente nella Sezione 6.3 e rimangono la prova più solida del fatto che il valore minimo previsto dal modello sia fisiologicamente plausibile. I due filoni di evidenza sono indipendenti: un modello di trasporto e un’osservazione clinica/genetica. Sono numericamente coerenti — entrambi indicano che il colesterolo totale plasmatico può scendere a circa 50–80 mg/dL senza conseguenze cliniche identificabili in un adulto non in stato di gravidanza — ma nessuno dei due, da solo, è determinante.
Riferimenti
- Mach F, Baigent C, Catapano AL, et al. 2019 ESC/EAS Guidelines for the management of dyslipidaemias: lipid modification to reduce cardiovascular risk. Eur Heart J. 2020;41(1):111-188. doi:10.1093/eurheartj/ehz455
- Pikuleva IA, Curcio CA. Cholesterol in the retina: the best is yet to come. Prog Retin Eye Res. 2014;41:64-89. doi:10.1016/j.preteyeres.2014.03.002
- Mc Auley MT, Wilkinson DJ, Jones JJ, Kirkwood TB. A whole-body mathematical model of cholesterol metabolism and its age-associated dysregulation. BMC Syst Biol. 2012;6:130. Published 2012 Oct 10. doi:10.1186/1752-0509-6-130
- Goodman DS, Noble RP, Dell RB. Three-pool model of the long-term turnover of plasma cholesterol in man. J Lipid Res. 1973;14(2):178-188.
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Lütjohann D, Breuer O, Ahlborg G, et al. Cholesterol homeostasis in human brain: evidence for an age-dependent flux of 24S-hydroxycholesterol from the brain into the circulation. Proc Natl Acad Sci U S A. 1996;93(18):9799-9804. doi:10.1073/pnas.93.18.9799
- Gao Y, Shah LM, Ding J, Martin SS. US Trends in Cholesterol Screening, Lipid Levels, and Lipid-Lowering Medication Use in US Adults, 1999 to 2018. J Am Heart Assoc. 2023;12(3):e028205. doi:10.1161/JAHA.122.028205
- Canfrán-Duque A, Rotllan N, Zhang X, et al. Macrophage-Derived 25-Hydroxycholesterol Promotes Vascular Inflammation, Atherogenesis, and Lesion Remodeling. Circulation. 2023;147(5):388-408. doi:10.1161/CIRCULATIONAHA.122.059062
- van Meer G, Voelker DR, Feigenson GW. Membrane lipids: where they are and how they behave. Nat Rev Mol Cell Biol. 2008;9(2):112-124. doi:10.1038/nrm2330
- Das A, Brown MS, Anderson DD, Goldstein JL, Radhakrishnan A. Three pools of plasma membrane cholesterol and their relation to cholesterol homeostasis. Elife. 2014;3:e02882. Published 2014 Jun 11. doi:10.7554/eLife.02882
- Schoop V, Martello A, Eden ER, Höglinger D. Cellular cholesterol and how to find it. Biochim Biophys Acta Mol Cell Biol Lipids. 2021;1866(9):158989. doi:10.1016/j.bbalip.2021.158989
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Jones PJ, Pappu AS, Hatcher L, Li ZC, Illingworth DR, Connor WE. Dietary cholesterol feeding suppresses human cholesterol synthesis measured by deuterium incorporation and urinary mevalonic acid levels. Arterioscler Thromb Vasc Biol. 1996;16(10):1222-1228. doi:10.1161/01.atv.16.10.1222
- Hevonoja T, Pentikäinen MO, Hyvönen MT, Kovanen PT, Ala-Korpela M. Structure of low density lipoprotein (LDL) particles: basis for understanding molecular changes in modified LDL. Biochim Biophys Acta. 2000;1488(3):189-210. doi:10.1016/s1388-1981(00)00123-2
- Kumar V, Butcher SJ, Öörni K, et al. Three-dimensional cryoEM reconstruction of native LDL particles to 16Å resolution at physiological body temperature. PLoS One. 2011;6(5):e18841. Published 2011 May 9. doi:10.1371/journal.pone.0018841
- Feingold KR. Introduction to Lipids and Lipoproteins. In: Feingold KR, Adler RA, Ahmed SF, et al., eds. Endotext. South Dartmouth (MA): MDText.com, Inc.; January 14, 2024.
- Leonard PJ, Shaper AG, Jones KW. Relationship between free and total cholesterol values in human serum. Am J Clin Nutr. 1965;17(6):377-380. doi:10.1093/ajcn/17.6.377
- Saier EL, Nordstrand E, Juves MW, Hartsock RJ. The ratio of free to esterified cholesterol in serum. A new discriminant in correlating lipid metabolism with disease state. Am J Clin Pathol. 1979;71(1):83-87. doi:10.1093/ajcp/71.1.83
- Bagheri B, Alikhani A, Mokhtari H, Rasouli M. The Ratio of Unesterified/esterified Cholesterol is the Major Determinant of Atherogenicity of Lipoprotein Fractions. Med Arch. 2018;72(2):103-107. doi:10.5455/medarh.2018.72.103-107
- Lange Y, Steck TL. Cholesterol homeostasis and the escape tendency (activity) of plasma membrane cholesterol. Prog Lipid Res. 2008;47(5):319-332. doi:10.1016/j.plipres.2008.03.001
- Maxfield FR, Tabas I. Role of cholesterol and lipid organization in disease. Nature. 2005;438(7068):612-621. doi:10.1038/nature04399
- Rothblat GH, Phillips MC. High-density lipoprotein heterogeneity and function in reverse cholesterol transport. Curr Opin Lipidol. 2010;21(3):229-238. doi:10.1097/mol.0b013e328338472d
- Barter PJ, Brewer HB Jr, Chapman MJ, Hennekens CH, Rader DJ, Tall AR. Cholesteryl ester transfer protein: a novel target for raising HDL and inhibiting atherosclerosis. Arterioscler Thromb Vasc Biol. 2003;23(2):160-167. doi:10.1161/01.atv.0000054658.91146.64
- Shih AY, Sligar SG, Schulten K. Maturation of high-density lipoproteins. J R Soc Interface. 2009;6(39):863-871. doi:10.1098/rsif.2009.0173
- Cerqueira NM, Oliveira EF, Gesto DS, et al. Cholesterol Biosynthesis: A Mechanistic Overview. Biochemistry. 2016;55(39):5483-5506. doi:10.1021/acs.biochem.6b00342
- Azhar S, Reaven E. Scavenger receptor class BI and selective cholesteryl ester uptake: partners in the regulation of steroidogenesis. Mol Cell Endocrinol. 2002;195(1-2):1-26. doi:10.1016/s0303-7207(02)00222-8
- Gomez-Sanchez CE, Gomez-Sanchez EP. Cholesterol Availability and Adrenal Steroidogenesis. Endocrinology. 2024;165(4):bqae032. doi:10.1210/endocr/bqae032
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Goldstein JL, Brown MS. Familial hypercholesterolemia: identification of a defect in the regulation of 3-hydroxy-3-methylglutaryl coenzyme A reductase activity associated with overproduction of cholesterol. Proc Natl Acad Sci U S A. 1973;70(10):2804-2808. doi:10.1073/pnas.70.10.2804
- Borghi C, Bragagni A. There are those who would like zero LDL cholesterol. Eur Heart J Suppl. 2024;26(Suppl 1):i19-i22. Published 2024 Apr 17. doi:10.1093/eurheartjsupp/suae012
- Spady DK, Bilheimer DW, Dietschy JM. Rates of receptor-dependent and -independent low density lipoprotein uptake in the hamster. Proc Natl Acad Sci U S A. 1983;80(11):3499-3503. doi:10.1073/pnas.80.11.3499
- Cohen JC, Boerwinkle E, Mosley TH Jr, Hobbs HH. Sequence variations in PCSK9, low LDL, and protection against coronary heart disease. N Engl J Med. 2006;354(12):1264-1272. doi:10.1056/NEJMoa054013
- Zhao Z, Tuakli-Wosornu Y, Lagace TA, et al. Molecular characterization of loss-of-function mutations in PCSK9 and identification of a compound heterozygote. Am J Hum Genet. 2006;79(3):514-523. doi:10.1086/507488
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- O’Donoghue ML, Giugliano RP, Wiviott SD, et al. Long-Term Evolocumab in Patients With Established Atherosclerotic Cardiovascular Disease. Circulation. 2022;146(15):1109-1119. doi:10.1161/CIRCULATIONAHA.122.061620
- Sloop CH, Dory L, Roheim PS. Interstitial fluid lipoproteins. J Lipid Res. 1987;28(3):225-237.
- Reichl D, Simons LA, Myant NB, Pflug JJ, Mills GL. The lipids and lipoproteins of human peripheral lymph, with observations on the transport of cholesterol from plasma and tissues into lymph. Clin Sci Mol Med. 1973;45(3):313-329. doi:10.1042/cs0450313
- Turner S, Voogt J, Davidson M, et al. Measurement of reverse cholesterol transport pathways in humans: in vivo rates of free cholesterol efflux, esterification, and excretion. J Am Heart Assoc. 2012;1(4):e001826. doi:10.1161/JAHA.112.001826
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Sniderman AD, Thanassoulis G, Glavinovic T, et al. Apolipoprotein B Particles and Cardiovascular Disease: A Narrative Review. JAMA Cardiol. 2019;4(12):1287-1295. doi:10.1001/jamacardio.2019.3780
- Summons RE, Bradley AS, Jahnke LL, Waldbauer JR. Steroids, triterpenoids and molecular oxygen. Philos Trans R Soc Lond B Biol Sci. 2006;361(1470):951-968. doi:10.1098/rstb.2006.1837
- Brown AJ, Galea AM. Cholesterol as an evolutionary response to living with oxygen. Evolution. 2010;64(7):2179-2183. doi:10.1111/j.1558-5646.2010.01011.x

