الاقتصاد الأيضي للكوليسترول البشري
تحليل التخليق من الصفر, البروتين الدهني التدفق، واستحواذ الأنسجة الطرفية
1. ملخص
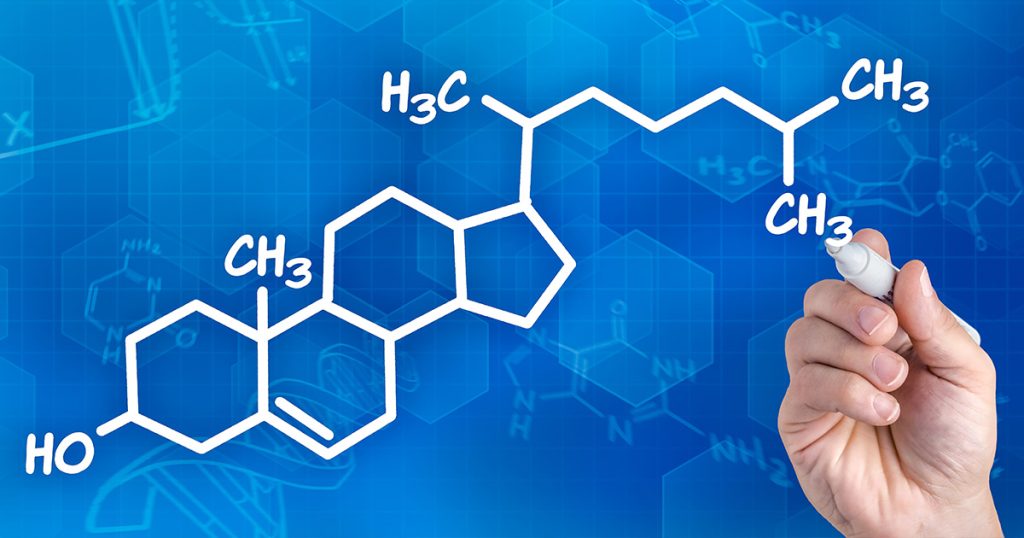
التنظيم الفسيولوجي لـ كوليسترول في جسم الإنسان يعد من أكثر الأمثلة تطوراً على التوازن الأيضي في بيولوجيا الثدييات. الكوليسترول، وهو مركب رباعي الحلقات ستيرول, ، لا غنى عنه للحياة حقيقيات النوى - حيث يعمل كحجر أساس هيكلي للأغشية الخולوية، ومادة أساسية لهرمونات الستيرويد و حمض الصفراء التخليق، وتعمل كدعامة لمنصات الإشارات عبر الغشاء. لا تستطيع الأنسجة المحيطية شطر نواة الستيرول للكوليسترول؛ لذا فإن التحويل الكبدي إلى أحماض صفراوية هو الطريقة الوحيدة للتخلص من الأحماض الصفراوية، بينما يتضمن التخلص من الستيرول المتعادل أيضاً مسارات الإفراز الصفراوي وعبر الأمعاء.
تمتلك كل خلية نواة الآلية الإنزيمية لتصنيع الكوليسترول من جديد (de novo) من الأسيتيل-مرافق الإنزيم أ (acetyl-CoA) عبر مسار يتكون من حوالي 30 خطوة. تدفع التكلفة الطاقية العالية لهذا التصنيع نحو الاعتماد التفضيلي والوسيط بالمستقبلات البروتين الدهني منخفض الكثافة الامتصاص في معظم الأنسجة عندما يكون الكوليسترول الدوران متاحاً. يبحث هذا التقرير في التوزيع الكمي للكوليسترول عبر الأنسجة البشرية، ويميز استخدام المسار الاصطناعي الحيوي الخاص بالأنسجة على ضوء بيانات تحليل التدفق القاطعة، ويوضع في سياق البنية التنظيمية التي تحافظ على توازن الستيرول.
2. المقدمة
يحتل الكوليسترول مكانة فريدة في الكيمياء الحيوية للثدييات. وعلى عكس معظم المستقلبات التي إما تُؤكسد لتوليد الطاقة أو تُبلمر لتشكل تجمعات جزيئية كبيرة، يُعامل الكوليسترول كعنصر هيكلي دائم. ويتميز نظام حلقة الستيرول باستقرار استثنائي؛ فلا يوجد مسار إنزيمي في الخلايا البشرية قادر على تقطيعه لاستخلاص ذرات الكربون كوقود قابل للأكسدة. وبالتالي، فإن التخلص منه هو عملية كبدية غير مباشرة تنطوي على تحويله إلى أحماض صفراوية (عبر CYP7A1 والمسارات الفرعية) أو الإفراز المباشر في الصفراء [11].
الأهمية السريرية للكوليسترول مثبتة جيداً. التركيزات المرتفعة من كوليسترول البروتين الدهني منخفض الكثافة (LDL-C)، وبشكل أكثر دقة المرتفعة عدد جزيئات البروتينات الدهنية منخفضة الكثافة كما تم قياسه بواسطة البلازما أبروليپوبروتين بأبوبروتين بترتبط سببياً بتصلب الشرايين أمراض القلب والأوعية الدموية (المرض القلبي الوعائي تصلب الشرايين) عبر قاعدة واسعة من الوراثة العشوائية المندلية, ، والأدلة الوبائية، والتداخلية [20]. إن الفهم الدقيق لآلية توازن الكوليسترول الكامنة وراء ذلك له آثار علاجية مباشرة: فهو يفسر سبب أجهزة التوليف الفائقة الرد بقوة على إنزيم HMG-CoA المختزل مثبطات (ستاتين) لكنها لا تستجيب جيدًا للقيود الغذائية، في حين أن فائقة الامتصاص إظهار النمط المعاكس والاستفادة من الأمعاء NPC1L1 حصار مع إزيتيمايب [28, 29]. كما يفسر ذلك سبب PCSK9 التثبيط — عن طريق منع ما بعد الترجمة مستقبل البروتين الدهني منخفض الكثافة (مستقبل بروتين دهني منخفض الكثافة) يؤدي تحللها إلى زيادة معدل إزالة البروتين الدهني منخفض الكثافة (LDL) من الكبد بشكل مستقل عن مسار الميفالونات [21].
3. الإطار الكمي لمستوى الكوليسترول الكلي في الجسم
في الإنسان البالغ السليم، يبلغ إجمالي الكوليسترول في الجسم حوالي 2,100 ملغ لكل كيلوغرام من وزن الجسم [6]. بالنسبة لشخص يزن 70 كيلوغرامًا، فإن هذا يعادل مخزونًا يبلغ حوالي 147 جرامًا. ويوجد ما يزيد عن 90% من هذا المخزون داخل أغشية الخلايا، حيث يعمل الكوليسترول على تنظيم سيولة الطبقة المزدوجة وتنظيم المجالات الدقيقة الغنية بالكوليسترول (‘الطوافات الدهنية’) التي تعمل كمنصات لمستقبلات التيروزين كيناز ومستقبلات مقترنة ببروتين G [19].
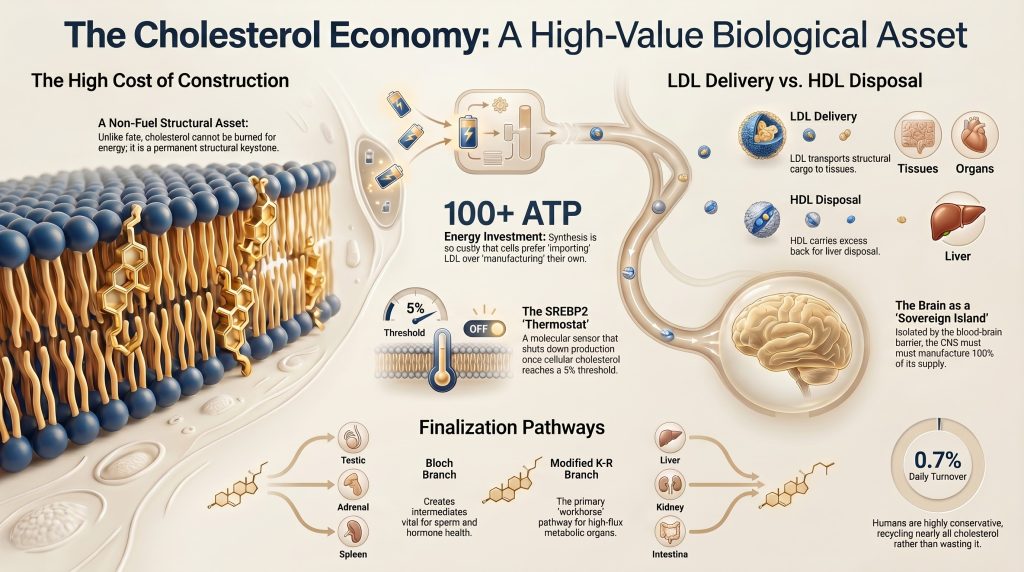
يعكس التوازن الصافي اليومي للكوليسترول عملية التخليق الداخلي، والمدخول الغذائي، وإعادة امتصاص الكوليسترول الصفراوي، وفقدان الستيرولات المحايدة والحمضية عبر البراز؛ ولا ينبغي اختزاله إلى ثنائية بسيطة بين التخليق مقابل الامتصاص الغذائي. يبلغ معدل دوران الكوليسترول في الجسم البشري بأكمله حوالي 0.7% يوميًا — وهو ما يعادل تقريبًا 0.8–1.2 جرام يوميًا لدى شخص بالغ يزن 70 كجم [5, 6]. وفي المقابل، تقوم الفئران بتجديد ما يقارب 7–9% من إجمالي الكوليسترول في أجسامها يوميًا [5]- وهو اختلاف له آثار مهمة على إمكانية تطبيق نتائج الدراسات التي تُجرى على القوارض بشأن خفض مستويات الدهون على البشر.
الجدول 1. التوازن اليومي للكوليسترول لدى شخص بالغ سليم في ظل أنماط التغذية الغربية النموذجية.
ملاحظة: يعرض هذا الجدول التدفقات الثابتة في دورة الكوليسترول لدى الإنسان. ولا يُعد الامتصاص الغذائي مجرد ‘الجانب الآخر’ من التخليق من الصفر؛ بل إنه يعكس عملية معوية متعددة المراحل تشمل إفراز الصفراء، والاختلاط داخل التجويف المعوي، والامتصاص بوساطة بروتين NPC1L1، وإعادة تدوير جزئي للصفراء.
| معامل | القيمة النموذجية / النطاق | ملاحظة تفسيرية | مرجع رئيسي |
| إجمالي الكوليسترول في الجسم | حوالي 2,100 ملغ/كغ من وزن الجسم؛ حوالي 147 غرامًا لشخص بالغ يزن 70 كغ | توجد الغالبية العظمى (>90%) في الأغشية؛ أما الباقي فيوجد في البروتينات الدهنية المتداولة في الدم | غودمان وآخرون، 1973 [6] |
| معدل التجدد اليومي لكامل الجسم | ~0.71 تي بي 9 تي/يوم (~0.8–1.2 غ/يوم لشخص بالغ يزن 70 كجم) | أقل بكثير من القوارض (~7–9%/يوم)؛ مما يشير إلى اقتصاد ستيرولي متحفظ جدًّا لدى البشر | ديتشي وتورلي 2002 [5]; غودمان وآخرون، 1973 [6] |
| التخليق من الصفر | 700–900 مجم/يوم لدى البالغين الأصحاء (تباين كبير بين الأفراد) | ليس مجرد عامل موازنة لامتصاص العناصر الغذائية؛ بل يعكس عملية التخليق في الجسم بأكمله عبر جميع الأنسجة | غراندي 1983 [3] |
| – المساهمة الكبدية | ~10–25% من التخليق الكلي | تنشأ الغالبية من الأنسجة خارج الكبد؛ ويختلف النسبة المئوية الدقيقة باختلاف النمط الظاهري والطريقة المستخدمة | ديتشي وآخرون، 1993 [4]; ديتشي وتورلي 2002 [5] |
| الكوليسترول الغذائي الاستقبال | عادةً ما تتراوح الجرعة بين 200 و500 ملغ يوميًا (تبعًا للسكان والفترة الزمنية) | يتفاوت متوسط القيمة السكانية تباينًا كبيرًا؛ ولا يُعد عاملاً رئيسيًّا في تحديد مستويات الكوليسترول الضار (LDL-C) في البلازما لدى معظم الأفراد، وذلك بسبب التثبيط التعويضي لبروتين SREBP2 | وانغ 2007 [9] |
| الكوليسترول المعوي الذي ظهر في لومن | ~1,400–1,700 ملغ/يوم (من الغذاء + الصفراء + الخلايا الظهارية المتساقطة) | تسود المساهمة الصفراوية؛ بينما يمثل الجزء الغذائي نسبة ضئيلة من الحمولة اللمعية | وانغ 2007 [9]; راسل 2003 [11] |
| الامتصاص المعوي الجزئي | تباين كبير: 29.0–81.1%، بمتوسط 56.2% لدى الأشخاص الأصحاء | التباين بين الأفراد كبير؛ ويُعد النمط الجيني لـ NPC1L1 عاملاً محددًا رئيسيًّا | بوسنر وآخرون، 1999 [10] |
| إفراز الكوليسترول في القنوات الصفراوية | ~800–1,200 ملغ/يوم | المصدر الرئيسي للكوليسترول في التجويف؛ ويتم إعادة امتصاص معظمه؛ أما الجزء الذي لا يتم إعادة امتصاصه فيُفرز على شكل ستيرول متعادل | راسل 2003 [11] |
| تخليق الأحماض الصفراوية | حوالي 400 ملغ/يوم (تقدير تقريبي تقليدي) | المسار الوحيد للتخلص من الأحماض الصفراوية؛ حيث تساهم كل من المسارات الصفراوية والمسارات عبر الأمعاء في التخلص الإجمالي من الستيرولات غير المتأينة | راسل 2003 [11] |
| إجمالي فقدان الستيرول في البراز | ~0.7–1.0 غ/يوم (نطاق واسع) | ينبغي التمييز بين الستيرولات المحايدة والستيرولات الحمضية؛; إفراز الكوليسترول عبر الأمعاء (TICE) تساهم بالإضافة إلى فقدان الصفراء | راسل 2003 [11] |
| تخليق الهرمونات الستيرويدية | حوالي 50 ملغ/يوم (تقدير تاريخي تقريبي) | مصادر غير موثوقة؛ تم الإبلاغ عنها على أنها تقدير تقريبي لدرجة الحجم فقط | ميلر وأوكوس 2011 [12] |
تمثل جميع القيم النطاقات الفسيولوجية في ظل الظروف الأيضية الطبيعية. وتتغير هذه القيم بشكل كبير في حالات اضطراب شحوم الدم، أو أمراض الكبد، أو التدخل الدوائي. وتعتمد النسبة الدقيقة للتخليق الكبدي على الطريقة المستخدمة؛ ويعكس النطاق 10–25% بيانات التتبع البشرية.
4. الضرورة الطاقية: التخليق من الصفر كأصل مكلف
يتألف المسار الكامل من الأسيتيل-كو-أ إلى الكوليسترول من حوالي 30 خطوة إنزيمية [1]. وينقسم إلى مرحلتين رئيسيتين:
- المرحلة السابقة للانوستيرول (حوالي 11 خطوة): تشمل مسار الميفالونات بحد ذاته (6 خطوات إنزيمية مخصصة بدءًا من الأسيتيل-CoA وصولاً إلى البيروفوسفات الإيزوبنتينيل [IPP]) مرورًا بتخليق السكوالين والتحلل الحلقية التأكسدي حتى الوصول إلى اللانوستيرول [1].
- مرحلة ما بعد اللانوستيرول (حوالي 19 خطوة): تحويل اللانوستيرول إلى الكوليسترول عبر فروع تخليق حيوي متفرعة، كما وصفها بلوخ (1965) [1] وكاندوتش وراسل (1960) [17].
4.1 التكلفة الحيوية: حساب دقيق ومتنوع
يستهلك التخليق الحيوي للكوليسترول طاقة كبيرة. وتشير التقديرات الشائعة إلى ما يقارب 18 ATP و16 NADPH لكل جزيء من الأسيتيل-CoA، وهذا لا يشمل سوى العوامل المساعدة في المسار الأساسي (مراحل إنزيم ميفالونات كيناز وإنزيم HMG-CoA ريدوكتاز). وهذه هي القيم المعترف بها في معظم كتب الكيمياء الحيوية [1]. أما القواعد المحاسبية الأوسع نطاقًا — والتي تشمل أيضًا كمية NADPH المستهلكة بعد اللانوستيرول خلال الخطوات الثلاث لإزالة الميثيل التأكسدي وعمليات اختزال حلقة اللانوستيرول إلى الكوليسترول — فتسفر عن قيم أعلى (ما يقارب 26 NADPH إجمالاً على طول المسار بأكمله [2]) لا توجد إجابة واحدة مقبولة عالميًا [2]. وعندما تُحوَّل التكلفة البديلة لـ 18 جزيءًا من الأسيتيل-كو-أ (طاقة الأكسدة البيتا المُفقودة) وجميع المكافئات المختزلة إلى وحدات مكافئة لـ ATP، فإن إجمالي الاستثمار لكل جزيء كوليسترول يتجاوز بشكل كبير 100 مكافئ ATP. وهذا يفسر سبب تفضيل الخلايا بشدة امتصاص LDL بوساطة المستقبلات على التخليق من الصفر عندما يكون الكوليسترول المتداول متاحًا [13].
4.2 بروتين PCSK9 ودورة مستقبلات LDL
يتوسط بروتين LDLR عملية الامتصاص الخلوي التي تتم بوساطة المستقبلات لجزيئات LDL التي تحتوي على ApoB-100. وبعد نقل حمولته الدهنية إلى الليزوزومات، يُعاد تدوير المستقبل إلى سطح الخلايا الكبدية من أجل جولات لاحقة من الارتباط بجزيئات LDL. محول البروبروتين يعطل بروتين سوبتيليسين/كيكسين من النوع 9 (PCSK9) عملية إعادة التدوير هذه من خلال الارتباط بمستقبلات LDLR داخل الإندوسوم وتوجيهها نحو التحلل الليزوزومي بدلاً من إعادتها إلى السطح [21].
ترتبط المتغيرات المسببة لفقدان الوظيفة في جين PCSK9 بانخفاض مستمر في مستويات الكوليسترول الضار (LDL-C) طوال الحياة، وبانخفاض كبير في مخاطر الإصابة بأمراض الشريان التاجي، لكن درجة الحماية تختلف باختلاف نوع المتغير والمجموعة السكانية [21]. مثبطات PCSK9 من الأجسام المضادة أحادية النسيلة (إيفولوكوماب, أليروكوماب) تخفض الكوليسترول الضار (LDL-C) بنسبة 50–65% بالإضافة إلى العلاج بالستاتين، وتقلل بشكل ملحوظ الأحداث القلبية الوعائية السلبية الكبرى في المرضى المعرضين لخطر كبير [22, 23]. وتُعد هذه الآلية آلية تكميلية لتثبيط إنزيم HMG-CoA ريدوكتاز بواسطة الستاتينات، ولا تعتمد على مسار الميفالونات.
5. الاختلافات في المسارات: فروع بلوخ وفروع كاندوتش-راسل
يمكن وصف التخليق الحيوي للكوليسترول بعد اللانوستيرول بشكل أفضل على أنه طيف من التدفقات الخاصة بالأنسجة عبر فروع «بلوخ» السائدة وفروع «كاندوتش-راسل» المعدلة، بدلاً من وصفه على أنه اختيار ثنائي صارم بين مسار «بلوخ» القياسي ومسار «كاندوتش-راسل» القياسي.
وقد تم تحديد خصائص توزيع هذه المسارات في الأنسجة بشكل قاطع من قبل ميتشه، وماكدونالد، وهوبس، وكوهين [16] باستخدام تحليل تدفق النظائر المستقرة عبر 15 نسيجًا من أنسجة الفئران في الجسم الحي. وتتمثل النتيجة الرئيسية التي توصلوا إليها في أنه لم يُلاحظ وجود مسار K-R القياسي باعتباره المسار السليم السائد في أي نسيج؛ بل وصفوا نموذجًا معدلًا لـ K-R أظهر فيه الكبد والكلى تدفقًا لـ K-R المعدل بشكل غالب، في حين كانت الخصيتان والغدة الكظرية غنيتين بـ Bloch. وأي ملخص يقدم الكبد/الكلى/الأمعاء كمواقع لسيادة مسار K-R الكلاسيكي باعتباره قاعدة ثابتة لدى الثدييات، فإنه يقدم صورة خاطئة عن استنتاجات المؤلفين وعن بعض التخصيصات النسيجية المحددة.
5.1 مسار بلوخ (عبر الديسموستيرول)
الـ مسار بلوخ تتم عبر الديسموستيرول (اللانوستيرول → … → الديسموستيرول → الكوليسترول عبر DHCR24). وهي تسود في الأنسجة التي يؤدي فيها وسيط الديسموستيرول نفسه وظيفة بيولوجية. وتعد الخصيتان أوضح مثال على ذلك: يتراكم الديسموستيرول في رؤوس الحيوانات المنوية الناضجة، حيث تسهل خصائصه الفيزيائية الحيوية المميزة مقارنة بالكوليسترول عملية إعادة تشكيل الغشاء اللازمة للقدرة على الإخصاب [16, 18].
الأنسجة التي يغلب فيها نمط بلوخ في تحليل ميتشه وزملاؤه: الخصيتان، والغدد الكظرية، والطحال. وبشكل منفصل، تُظهر الدراسات الخاصة بأنواع الخلايا في الدماغ أن الخنجين الدبقي وتستخدم الخلايا العصبية النامية بشكل تفضيلي تخليق بلوخ/ديسموستيرول. ومع ذلك، فإن أنسجة الدماغ الكاملة للبالغين، في نفس التحليل الذي أجراه ميتشه وزملاؤه، أُرجعت في الغالب إلى تدفق K-R المعدل. ولا ينبغي الخلط بين هاتين النتيجتين: بل يجب عرض الأدلة المتعلقة بالدماغ الكامل للبالغين والأدلة المتعلقة بأنواع محددة من الخلايا العصبية بشكل منفصل.
5.2 مسار كاندوتش-راسل المعدل (عبر 7-DHC / لاثوستيرول)
يمر مسار K-R المعدل عبر 7-ديهيدروكوليسترول (7-DHC) واللاثوستيرول (اللاثوستيرول → … → 7-DHC → الكوليسترول عبر DHCR7). أظهر كبد الفئران البالغة في تحليل ميتشه وزملاؤه تدفقًا معدلًا لمسار K-R بشكل غالب. وهذا أمر مهم من الناحية السريرية: حيث يتسبب نقص إنزيم DHCR7 في متلازمة سميث-ليملي-أوبيتز, ، حيث يؤثر تراكم مادة 7-DHC السامة على جميع الأنسجة المعدلة التي يغلب عليها النمط K-R [18]. في الجلد، يُعد 7-DHC السلف المباشر لفيتامين D₃ عند التعرض للأشعة فوق البنفسجية من النوع UVB، مما يمنح الفرع المعدل K-R دورًا ضوئيًا بيولوجيًا مميزًا [18].
يُعد كل من DHCR24 وDHCR7 من إنزيمات الاختزال الطرفية التي تحدد التفاعلات الكيميائية المهمة في الفروع، إلا أن التدفق في الأنسجة أكثر مرونة وتفرعًا مما يوحي به مخطط المسار الثنائي الصارم [16].
الجدول 2. توزيع مسار التخليق الحيوي لما بعد اللانوستيرول حسب الأنسجة (تم تصحيحه وفقًا لـ Mitsche وآخرون، 2015 [16]).
| فرع «باثواي» | الأنسجة التي يغلب فيها هذا الفرع (في Mitsche وآخرون، 2015 [16]) | الأساس البيولوجي والتحذيرات |
| بلوخ (عبر الديسموستيرول) | الخصيتان، الغدد الكظرية، الطحال؛ الخلايا النجمية والخلايا العصبية النامية (دراسات أنواع الخلايا) | يتميز الديسموستيرول (المرحلة الوسيطة قبل الأخيرة في مسار بلوخ) بخصائص فيزيائية حيوية مميزة لها أهمية في تكوين الحيوانات المنوية. وتشير الدراسات الخاصة بالخلايا النجمية والخلايا العصبية النامية إلى وجود تدفق تفضيلي لمسار بلوخ/الديسموستيرول. غير أن أنسجة الدماغ الكاملة للبالغين أظهرت، في تحليل الفئران الذي أجراه ميتشه وزملاؤه، تدفقًا يرجع في الغالب إلى مسار K-R المعدل. |
| طريقة كاندوتش-راسل المعدلة (عبر 7-DHC/لاثوستيرول) | الكبد، الكلى، الغدة القلفة، الأمعاء؛ نسيج الدماغ الكامل للبالغين (في Mitsche وآخرون) | يسود هذا المسار في الأعضاء ذات التمثيل الغذائي عالي التدفق. وقد وصف ميتشه وزملاؤه هذا المسار بأنه مسار ‘K-R معدل’ — حيث لم يُلاحظ وجود مسار K-R القياسي كمسار سليم سائد في أي نسيج. ويستخدم الكبد بشكل أساسي تدفق K-R المعدل، وليس مسار بلوخ. ويُظهر نقص DHCR7 (متلازمة سميث-ليملي-أوبيتز) الأهمية السريرية لهذا الفرع. |
| مختلطة / تعتمد على السياق | الجلد، العضلات الهيكلية، القلب، الرئة | تتغير هذه النسبة تبعًا لمرحلة النمو، ومستوى الأكسجة، والظروف الهرمونية. وفي الجلد، يُعدُّ مركب 7-DHC الوسيط في مسار K-R السلائف الكيميائي الضوئي المباشر لفيتامين D₃. ويُوصف التدفق الأنسجي بشكل أفضل باعتباره طيفًا مرنًا أكثر من كونه خيارًا ثنائيًا صارمًا. |
تستمد البيانات من تحليل تدفق النظائر المستقرة في 15 نسيجًا من أنسجة الفئران [16]. يتم استنتاج توزيع الأنسجة البشرية من خلال التشابه الإنزيمي؛ ويشير مصطلح ‘K-R المعدل’ إلى المصطلحات التي استخدمها ميتشيه وزملاؤه أنفسهم — حيث لم يُلاحظ وجود مسار K-R القياسي السليم باعتباره المسار السائد في أي نسيج.
6. ديناميكيات البروتينات الدهنية: النظام اللوجستي الجهازي
وبالنظر إلى أن الخلايا قادرة على تصنيع الكوليسترول الخاص بها، فإن البروتينات الدهنية المتداولة في الدم تؤدي ثلاث وظائف أساسية: (1) إعادة توزيع الموارد من الأنسجة التي تفرط في الإنتاج إلى تلك التي تعاني من نقص في الإنتاج؛ (2) التخفيف الأيضي لتوفير ATP وNADPH الخلويين أثناء حالات الطلب المرتفع على الطاقة؛ و(3) النقل العكسي والتخلص من الستيرولات الطرفية الزائدة، مما يمنع تراكمها في البالعات الكبيرة و تكون العصيد الشرياني [25]. الكوليسترول مادة شديدة الانجذاب للدهون وغير قابلة للذوبان في البلازما المائية؛ لذا يجب تغليفه في جسيمات بروتينات دهنية ثنائية القطب جنبًا إلى جنب مع الفوسفوليبيدات والأبوليبوبروتينات التي تمنحه خصوصية الارتباط بالمستقبلات [30].
6.1 سلسلة VLDL–IDL–LDL
بروتين دهني منخفض الكثافة جداً تتجمع الجسيمات في خلايا الكبد وتُفرز إلى الدورة الدموية الوريدية الكبدية (الجهازية)، حيث ليباز البروتينات الدهنية (LPL) المرتبط بأسطح الخلايا البطانية يقوم بتحلل قلب الدهون الثلاثية تدريجيًّا، مما يؤدي إلى إعادة تشكيل جزيئات VLDL من خلال البروتين الدهني متوسط الكثافة (لغة IDL) حتى يتبقى جسيم LDL الذي استنفد منه الدهون الثلاثية وأصبح غنيًّا بإسترات الكوليسترول [30]. تحمل كل جسيم من جسيمات البروتين الدهني منخفض الكثافة (LDL) جزيئًا واحدًا أبو بروتين-100 جزيء؛ ولذلك، فإن تركيز بروتين ApoB في البلازما يُعد مؤشراً أكثر دقة لـ جزيء مُتصلِّب الشرايين عبء أكبر من كتلة الكوليسترول LDL، التي تجمع بين تباين حجم الجسيمات [20]. يُنقل ما يقارب 60–70% من كتلة الكوليسترول المتداول ضمن جزء LDL [30].
6.2 الكوليسترول عالي الكثافة (HDL) ونقل الكوليسترول العكسي
تسهل جزيئات البروتين الدهني عالي الكثافة إعادة الكوليسترول الزائد في الأطراف إلى الكبد عن طريق النقل العكسي للكوليسترول (التجربة العشوائية المضبوطة). ABCA1 يتوسط في النقل الأولي للكوليسترول والفوسفوليبيد الخلويين إلى بروتين apoA-I الفقير بالدهون، مكونًا جسيمات قرصية ناشئة HDL الجسيمات. يعزز بروتين ABCG1 تدفق الكوليسترول بشكل أكبر، ولا سيما إلى جسيمات HDL الأكثر نضجًا والغنية بالدهون؛ وتُعد هذه مجموعات مستقبلة أولية متميزة ذات أدوار وظيفية لا تتداخل [26]. ثم يقوم إنزيم الليسيثين-الكوليسترول أسيليترانزفيراز (LCAT)، الذي يتم تنشيطه بواسطة ApoA-I، باسترة الكوليسترول المكتسب، مما يؤدي إلى تدفق صافٍ من الناحية الحرارية وتحويل الأقراص الناشئة إلى جزيئات HDL كروية ناضجة [26].
يُعاد الكوليسترول إلى الكبد إما عن طريق الامتصاص الانتقائي بوساطة SR-BI أو عن طريق التبادل بوساطة CETP إلى الجسيمات المحتوية على أبوليبوبروتين ب ثم يتم التخلص منه بواسطة LDLR. ويقوم الكبد بتحويل الكوليسترول المعاد إلى أحماض صفراوية (الأحماض الأولية: حمض الكوليك، وحمض الكينوديوكسيكوليك) عن طريق إنزيم CYP7A1، أو يفرزه مباشرةً في الصفراء للتخلص من الستيرول غير المتفاعل [11]. يُعد إفراز الكوليسترول عبر الأمعاء (TICE) مسارًا إضافيًا للتخلص منه عبر البراز لا يعتمد على إفراز الصفراء.
6.3 SR-BI والامتصاص الانتقائي في الأنسجة المُنتجة للستيرويدات
يتوسط مستقبلات SR-BI (مستقبلات الزبال من الفئة ب، النوع الأول) الامتصاص الانتقائي لـ إسترات الكوليسترول من كل من البروتينات الدهنية عالية الكثافة (HDL) والبروتينات الدهنية منخفضة الكثافة (LDL) دون أن يصاحب ذلك تدهور في جزيئات البروتينات الدهنية. ويُعبَّر عن SR-BI بدرجة عالية في قشرة الغدة الكظرية والغدد التناسلية، ويتم تنظيمه إيجابياً بواسطة هرمون ACTH في الغدة الكظرية، مما يخلق آلية تغذية أمامية تربط الطلب الهرموني بإمدادات الستيرول المتداولة في الدم [24]. ومع ذلك، فإن هيمنة SR-BI كمسار لامتصاص الستيرويدات أكثر تأكيدًا في الغدة الكظرية لدى القوارض مقارنةً بالغدة الكظرية لدى البشر؛ ففي البشر، يظل امتصاص LDL بوساطة مستقبلات LDLR (LDLR) مهمًّا بشكل خاص، ويبدو أن مسار HDL–SR-BI أقل هيمنةً مما هو عليه في القوارض. يساهم كلا المسارين في هذه العملية، وينبغي تجنب التعميم المفرط لنتائج SR-BI المستمدة من القوارض على البشر.
7. أنماط امتصاص الكوليسترول الخاصة بالأنسجة
إن مدى اعتماد النسيج على الكوليسترول المتداول في الدم مقارنةً بالتخليق الداخلي يعكس دوره الأيضي، ومدى وصوله إلى الأوعية الدموية، وقدرته على التخليق الحيوي. يقدم الجدول 3 أدناه ملامح نوعية للأنسجة؛ ولم يتم تحديد النسب المئوية المحددة للاستيراد مقابل التخليق لمعظم الأنسجة الطرفية (العضلات، والأنسجة الدهنية، والجلد) من خلال أدلة مباشرة مستمدة من استخدام المقتفيات في البشر، ولا ينبغي اعتبارها أرقاماً ثابتة.
الجدول 3. ملامح اكتساب الكوليسترول النوعي في الأنسجة.
| مناديل | ملامح امتصاص الكوليسترول ودوره الوظيفي |
| الدماغ (الجهاز العصبي المركزي) | يتمتع بالاعتماد الذاتي بشكل أساسي في ما يتعلق بالكوليسترول في ظل الظروف الطبيعية للبالغين؛ تدفق كوليسترول البروتينات الدهنية عبر حاجز دماغي دموي وهو ضئيل للغاية. يتم تصنيع كل الكوليسترول محليًّا، وبشكل أساسي بواسطة الخلايا النجمية، ثم يتم توزيعه على الخلايا العصبية عبر البروتينات الدهنية الموجودة في السائل النخاعي والتي تحتوي على بروتين ApoE. ولا يمكن تحديد النسبة الدقيقة بين التصنيع والامتصاص بشكل موثوق من خلال النسب المئوية لكتل الأنسجة لدى البشر. |
| قشر الكظر | اعتماد كبير على الكوليسترول المشتق من البروتينات الدهنية في البلازما؛ وفي البشر، يُعد امتصاص LDL بوساطة مستقبلات LDLR (LDLR) ذا أهمية خاصة، مع وجود دور مهم أيضًا لمستقبلات SR-BI (إلا أن هيمنة مستقبلات SR-BI أكثر ثبوتًا في الغدة الكظرية لدى القوارض مقارنةً بالغدة الكظرية البشرية). وفي ظل التحفيز الحاد بهرمون ACTH، يُشتق أكثر من 80% من الكوليسترول، وهو مادة أولية للستيرويدات، من البروتينات الدهنية المتداولة في الدم. وتشكل مخزونات إسترات الكوليسترول داخل الخلايا (التي ينظمها إنزيم ACAT/HSL) عازلًا. |
| كبد | المحور المركزي: يقوم بامتصاص LDL بوساطة المستقبلات، والتخليق من الصفر، وإفراز VLDL، وتخليق الأحماض الصفراوية، والإفراز الصفراوي. تختلف المساهمة النسبية الدقيقة في التخليق من الصفر على مستوى الجسم بأكمله باختلاف المصدر والطريقة (~10–25% في بيانات الحالة المستقرة لدى البشر). يستخدم في الغالب تدفق التخليق الحيوي المعدل وفق نموذج K-R. تعتمد النسب المئوية الدقيقة للاستيراد مقابل التخليق على الطريقة المستخدمة. |
| الأمعاء | العضو الرئيسي المسؤول عن كل من امتصاص الكوليسترول (بواسطة بروتين NPC1L1 من تجويف الأمعاء) والتخليق من الصفر. كما يشارك في إفراز الكوليسترول عبر عملية إفراز الكوليسترول عبر الأمعاء (TICE)، والتي تسهم في فقدان الستيرول عبر البراز بشكل مستقل عن إفراز الصفراء. ويؤثر بشكل رئيسي على تدفق التخليق الحيوي لـ K-R. |
| الغدد التناسلية | يتم استخدام مزيج من التخليق من الصفر، واحتياطيات إستر الكوليسترول داخل الخلايا (التي يتم تحريكها بواسطة HSL)، والبروتينات الدهنية في البلازما (عبر مساري LDLR وSR-BI). وترتبط النسب المئوية الدقيقة بالسياق، وتخضع لتنظيم دقيق بواسطة الهرمونات المنشطة للغدد التناسلية (LH/FSH). ويهيمن مسار بلوخ في الخصية. |
| العضلات الهيكلية، الأنسجة الدهنية، الجلد | يُعد هذا العنصر مهمًّا في توازن الكوليسترول في الجسم بأسره من حيث الكتلة الإجمالية، لكن النسب الدقيقة بين الكوليسترول المستورد والكوليسترول المُصنَّع في الجسم البشري لم تُحدد بعد دون وجود أدلة مباشرة مستمدة من استخدام المُتتبِّعات. وتشير التقديرات العامة إلى الاعتماد بشكل رئيسي على التخليق المحلي في الظروف العادية، لكن لا ينبغي تحديد نسب مئوية محددة لهذه التقديرات دون الاستشهاد بالدراسة الأساسية التي استخدمت المُتتبِّعات لدعمها في البشر. |
تعكس الأوصاف النوعية الإجماع الذي توصلت إليه الدراسات التي أُجريت على البشر والحيوانات. ولم يتم تحديد النسب المئوية الدقيقة للأنسجة الطرفية (العضلات الهيكلية، والأنسجة الدهنية، والجلد) استنادًا إلى أدلة مباشرة مستمدة من استخدام المُتتبع في البشر؛ انظر Dietschy وآخرون، 1993 [4] وغودمان وآخرون، 1973 [6] للاطلاع على البيانات الحركية الأولية المتاحة. يتفاوت التدفق النسيجي بشكل كبير في ظل التهاب, ، والأمراض الأيضية، ونقص الأكسجة، والتدخل الدوائي.
7.1 الدماغ: الاكتفاء الذاتي
يحتوي الجهاز العصبي المركزي على ما يقارب 20–25% من إجمالي الكوليسترول في الجسم، على الرغم من أنه لا يمثل سوى حوالي 2% من كتلة الجسم [7]. الحاجز الدموي الدماغي (BBB) الذي يتكون من الوصلات الضيقة بين الخلايا الدماغية الخلايا البطانية يستبعد الكوليسترول المرتبط بالبروتينات الدهنية من الدورة الدموية الجهازية؛ ويُعد التدفق الصافي للكوليسترول في البلازما عبر الحاجز الدموي الدماغي لدى البالغين ضئيلًا للغاية [7, 8]. ولذلك، يتعين على الدماغ أن يصنع كل الكوليسترول الذي يحتاجه بنفسه، وهي مهمة تضطلع بها في المقام الأول الخلايا النجمية، التي تنقل الكوليسترول إلى الخلايا العصبية عبر البروتينات الدهنية المحتوية على بروتين ApoE في السائل النخاعي [8].
يتم التخلص من الكوليسترول الموجود في الدماغ بشكل رئيسي عن طريق تحويله إلى أكسيستيرولات, ، ولا سيما 24(S)-هيدروكسي كوليسترول، عبر إنزيم CYP46A1 العصبي (إنزيم 24-هيدروكسيلاز الكوليسترول). تشير القياسات المباشرة للفارق الشرياني الوريدي في الوريد الوداجي إلى تصريف من الدماغ يبلغ حوالي 2–3 ملغ/يوم؛ بينما أشارت التقديرات غير المباشرة الأقدم إلى 4–7 ملغ/يوم. وهذا نطاق تقديري يعتمد على الطريقة المستخدمة—وليس قيمة واحدة ثابتة [8]. تعتبر أغلفة المايلين أكثر التراكيب الغشائية غنىً بالكوليسترول في علم أحياء الثدييات؛ حيث يشكل الكوليسترول ما يقارب 25–40% من إجمالي دهون المايلين (ويختلف النسبة الدقيقة باختلاف النوع والمنطقة وطريقة القياس) [7].
7.2 الأنسجة المُنتجة للستيرويدات: مستهلكون ذوو تدفق عالٍ يعتمدون على الواردات
تحتاج قشرة الغدة الكظرية والغدد التناسلية إلى الكوليسترول باعتباره المادة الأولية الحصرية لتخليق الهرمونات الستيرويدية عبر مسار الاستيراد الميتوكوندري الذي يتوسطه بروتين StAR [12]. في ظل التحفيز الحاد لهرمون ACTH، فإن أكثر من 80% من الكوليسترول المستهلك في عملية تكوين الستيرويدات يُستمد من البروتينات الدهنية المتداولة في الدم [24]. وتُشكّل مخزونات إسترات الكوليسترول داخل الخلايا (الأسترة بوساطة إنزيم ACAT، والتعبئة بوساطة إنزيم HSL) مخزونًا احتياطيًا يمكن الوصول إليه بسرعة.
7.3 العضلات الهيكلية، والأنسجة الدهنية، والجلد
تمثل هذه الأنسجة مجتمعةً أكبر كتلة في الجسم، وبالتالي تشكل نسبة مطلقة كبيرة من إجمالي الكوليسترول، ومع ذلك فإن معدل تجددها اليومي منخفض، ويتم تصنيع معظم الكوليسترول فيها محليًّا. تشير التقديرات العامة المستمدة من دراسات التتبع على الحيوانات إلى اعتماد كبير على التخليق من الصفر في الظروف العادية، لكن النسب المئوية للاستيراد مقابل التخليق في الجسم الحي لدى البشر بالنسبة لهذه الأنسجة لم يتم تحديدها بالدقة التي يوحي بها جدول الأرقام المحددة. كما أن مساهمتها في استقلاب الدهون الجهازي غير مباشرة: ترتبط زيادة كتلة العضلات الهيكلية، من الناحية الوبائية، بانخفاض مستوى الكوليسترول الضار (LDL-C) في الدم، ربما عن طريق ارتفاع نشاط بروتين LPL وتحسين حساسية الأنسولين (الذي يزيد من التعبير الجيني لمستقبلات LDLR في الكبد)، أو التأثيرات التي تتوسطها الميوكينات على استقلاب البروتينات الدهنية في الكبد [33, 34].
8. المفارقة الوظيفية: لماذا لا يُعد الكوليسترول مصدرًا للطاقة
يتمثل أحد الفروق المفاهيمية الجوهرية في عملية التمثيل الغذائي للدهون في أنه في حين أن الدهون الثلاثية تُعد الدهون الاحتياطي الرئيسي للطاقة، ويتم تقويضها عبر الأكسدة β لتوليد ATP، أما الكوليسترول فهو بالتأكيد ليس مصدرًا للطاقة. ونظام حلقة الستيرول رباعي الحلقات مستقر بشكل استثنائي ويفتقر إلى الروابط C–H عالية الطاقة الموجودة في سلاسل الأسيلات الدهنية. ولا تمتلك الخلايا البشرية أي مسار إنزيمي لانقسام حلقة الستيرول؛ ولا يمكن استعادة ذرات الكربون الموجودة في الكوليسترول كوحدات أسيتيل-CoA لدورة حمض التريكربوكسيليك [1].
وبالتالي، تؤدي البروتينات الدهنية المتداولة في الدم ثلاث وظائف غير متعلقة بالسعرات الحرارية:
- الصيانة الهيكلية: الوجهة الرئيسية للكوليسترول المتداول هي الغشاء البلازمي. حيث يتخلل الكوليسترول سلاسل الأسيلات الدهنية للفوسفوليبيدات، مما يؤدي إلى تكثيف الطبقة المزدوجة وتنظيم مجالات مجهرية ذات ترتيب سائل (Lo) (‘طوافات دهنية’) تعمل كمنصات لمستقبلات الإشارات [19]. هذه الوظيفة تعتمد على كثافة الغشاء ولا يمكن للدهون الثلاثية القيام بها.
- توزيع السلائف: يُوفر الكوليسترول منخفض الكثافة (LDL) المتداول في الدم الركيزة الفورية من الستيرول لتكوين الستيرويدات في قشرة الغدة الكظرية. ومن خلال الحفاظ على مخزون جهازي من الكوليسترول منخفض الكثافة (LDL)، يضمن الجسم بدء إنتاج الكورتيزول والألدوستيرون في غضون دقائق من تحفيز هرمون ACTH، دون الحاجة إلى انتظار التخليق من الصفر [12, 24].
- التخزين الاحتياطي للتوازن الداخلي: أثناء إصابة الأنسجة أو التكاثر السريع، يمكن للخلايا أن تستقطب الكوليسترول المتداول في الدم من أجل التكوين الطارئ للأغشية، مما يساهم في الحفاظ على ATP وNADPH في أوقات الذروة في الطلب الأيضي [13].
8.1 تراكم الكوليسترول في الميتوكوندريا: العواقب المرضية
ورغم أن الكوليسترول عنصر لا غنى عنه في الغشاء البلازمي، فإن تراكمه في الغشاء الداخلي للميتوكوندريا (IMM) بمستويات تتجاوز التركيزات الفسيولوجية يُعد حالة مرضية. وعادةً ما يكون الغشاء الداخلي للميتوكوندريا هو الغشاء الأقل احتواءً على الكوليسترول في الخلية — وهي حالة ضرورية للحفاظ على السيولة ومحتوى الكارديوليبين اللازمين لأداء سلسلة التنفس الوظيفي الأمثل [27]. يؤدي فائض الكوليسترول في غشاء الميتوكوندريا (IMM) إلى إعاقة نشاط المركب الأول والمركب الثالث، وتقليل جهد غشاء الميتوكوندريا، وتقليل استيراد الجلوتاثيون إلى الميتوكوندريا، مما يزيد من التعرض لـ أنواع الأكسجين التفاعلية الناتجة عن نشاط سلسلة التنفس المقترنة جزئيًا [27]. وقد تم ربط هذه الآلية بانتقال التهاب الكبد الدهني إلى تليف الكبد في حالات الكبد غير الكحولي الكبد الدهني المرض وفي ضعف خلايا رغوية في تصلب الشرايين لوحات [27].
هناك تحفظان بشأن الدقة: (أ) لم يتم تحديد العتبة المرضية الدقيقة لتراكم الكوليسترول في الغشاء الداخلي للميتوكوندريا (IMM) بوضوح كافٍ لإصدار بيان رقمي قاطع فيما يتعلق بالبشر — فالوصف النوعي أكثر قابلية للدفاع عنه من الاستشهاد بعتبات محددة لـ mol% كحقيقة ثابتة؛ و(ب) أن هوية ناقل الجلوتاثيون الميتوكوندريا المعني ما زالت موضع نقاش — فقد طعنت دراسة إعادة التكوين المباشرة في فكرة أن نقل الجلوتاثيون يتم بوساطة OGC/DIC — ولا يزال هذا الأمر غير مؤكد حتى الآن.
9. التغذية الراجعة التنظيمية: مركز SREBP2
يتمحور استشعار الكوليسترول في الخلايا حول ارتباط العنصر التنظيمي للستيرول-B بروتين 2 (SREBP2)، وهو عامل نسخ مرتبط بالغشاء في الشبكة الإندوبلازمية (ER) [14]. يُحافظ على مستويات الكوليسترول في الجهاز الهضمي عند مستويات منخفضة مقارنة بالغشاء البلازمي في الظروف الطبيعية؛; SREBP-2 تنخفض سرعة المعالجة بشكل مفاجئ عندما يقترب مستوى الكوليسترول في الحويصلات الإندوبلازمية من حوالي 5 مول من دهون غشاء الحويصلات الإندوبلازمية [15].
عندما ينخفض مستوى الكوليسترول في ER إلى ما دون هذا الحد، فإن مركب SCAP–SREBP2 عن بروتينات الاحتجاز INSIG-1/INSIG-2، مما يسمح لـ SCAP بمرافقة SREBP2 إلى جهاز جولجي، حيث تقوم بروتيازات الموقع 1 والموقع 2 بتقطيع SREBP2 بالتتابع، مما يؤدي إلى تحرير مجال عامل النسخ N-terminal من أجل الاستيراد النووي [14]. وفي النواة، يحفز SREBP2 زيادة منسقة في التعبير الجيني لما يلي:
- HMGCR (إنزيم HMG-CoA ريدوكتاز، وهو الإنزيم المحدد لمعدل التفاعل في مسار الميفالونات): لزيادة التخليق الداخلي.
- LDLR (مستقبلات LDL): لزيادة امتصاص LDL من الدم بوساطة المستقبلات.
- PCSK9: يتم تنظيمه بشكل متناقض من قبل SREBP2 باعتباره محددًا للتغذية الراجعة السلبية في عملية إعادة تدوير مستقبلات LDLR — الأساس الآلي لـ مثبط بروكاتين كونسيرتيز سابتايليسين/كيكسين من النوع 9 علم الأدوية [21].
عندما يرتفع مستوى الكوليسترول في الدم إلى حوالي 5 مول% — وهو عتبة تشبه المفتاح حددها راداكريشنان وآخرون [15] باستخدام الكيمياء الحيوية الكمية للغشاء — حيث يتم احتجاز بروتين SCAP في الجهاز الإندوبلازمي بواسطة بروتين INSIG، ويظل بروتين SREBP2 غير نشط، ويتم توجيه إنزيم HMG-CoA reductase للتحلل البروتيازومي عبر تجنيد ليغاز يوبيكويتين gp78 E3 بوساطة بروتين INSIG [14, 15]. ويضمن هذا المفتاح ثنائي الحالة أن تستفيد الخلايا من المخزون المتداول فقط عند الضرورة.
10. التباين بين الأفراد وآثاره السريرية
10.1 المُركِّبون الفائقون مقابل المُستوعبون الفائقون
تختلف الأفراد اختلافًا جوهريًّا في المساهمة النسبية لعملية التخليق مقابل عملية الامتصاص في إجمالي الكوليسترول المتداول في الدم لديهم — وهو تمييز ذو أهمية سريرية [28]. يُظهر ‘ذوو التخليق المفرط’ مستويات مرتفعة من اللاثوستيرول في البلازما (وهو مؤشر على التخليق) ومستويات منخفضة من الكامبستيرول/السيتوستيرول (وهما مؤشران على الامتصاص) مقارنةً بالمتوسطات السكانية. تؤدي الستاتينات إلى انخفاضات قوية في مستويات الكوليسترول الضار (LDL-C) لدى هؤلاء المرضى. وعلى العكس من ذلك، يُظهر ‘ذوو الامتصاص المفرط’ نمطًا معاكسًا من مستويات الستيرول في البلازما؛ حيث يقوم ناقل NPC1L1 المعوي لديهم باحتجاز نسبة غير متناسبة من الكوليسترول الغذائي والصفراوي على حد سواء. في «ذوي الامتصاص المفرط»، قد تؤدي الستاتينات إلى انخفاضات أقل في الكوليسترول الضار (LDL-C) لأن زيادة تنظيم جين NPC1L1 التعويضي تعوض جزئيًا عن تثبيط التخليق؛ بينما يعيد العلاج المركب بالإزيتيميب استجابة أكثر اكتمالًا [28, 29].
يُعد إطار عمل «المُركِّب الفائق/المُمتص الفائق» مفيدًا من الناحية البيولوجية، ويُدعمه ستيرول غير الكوليسترول المؤشر الحيوي البيانات، لكنها لم تصبح بعد تصنيفًا سريريًّا موحدًا عالميًّا ومفروضًا بموجب المبادئ التوجيهية: فارتفاع مستويات مؤشرات الامتصاص لا ينبئ دائمًا باستجابات متباينة لـ LDL-C، لا سيما في مجموعات مرضى فرط الكوليسترول العائلي. وينبغي تقديم هذا الإطار باعتباره مفيدًا، ولكنه ليس حتميًّا.
10.2 فرط كوليسترول الدم العائلي ومسار مستقبلات LDLR
فرط كوليسترول الدم العائلي (FH) هو أكثر الاضطرابات الجينية الأحادية خطورة شيوعًا لدى البشر؛ ويبلغ معدل انتشاره حوالي 1 من كل 250–300 (تشير تقديرات إجماعية حديثة صادرة عن NLA إلى أن معدل الانتشار العالمي يقترب من 1 من كل 311، اعتمادًا على المجموعة السكانية وتعريف التشخيص) [21]. ينشأ مرض فرط الكوليسترول العائلي (FH) عن طفرات تؤدي إلى فقدان وظيفة مستقبلات LDL (LDLR)، أو طفرات تؤدي إلى اكتساب وظيفة في بروتين PCSK9، أو المتغيرات المسببة للأمراض في APOB، والتي تؤدي جميعها إلى إعاقة إزالة LDL بوساطة المستقبلات [21]. ونظرًا لانخفاض امتصاص الكبد لبروتين LDL، يظل SREBP2 نشطًا بشكل دائم، مما يؤدي إلى زيادة التعبير الجيني لـ HMGCR، وبالتالي زيادة التخليق الكبدي بشكل متناقض في سياق ضعف الامتصاص الخارجي [14]-حلقة مفرغة تؤدي، في حال عدم علاجها، إلى الإصابة المبكرة بأمراض القلب والأوعية الدموية الشريانية (ASCVD).
11. الأوكسيستيرولات: الطبقة التنظيمية في نظام الكوليسترول
الأوكسيستيرولات هي مشتقات الكوليسترول المؤكسدة الموجودة في الأنسجة والبلازما بتركيزات أقل بـ 3–4 أوامر من حيث الحجم مقارنة بالكوليسترول نفسه، ومع ذلك فإنها تمارس تأثيرًا تنظيميًّا غير متناسب على توازن الستيرول والوظيفة المناعية [31, 32].
تعمل العديد من الأوكسيستيرولات كروابط داخلية لبروتين INSIG وكمُحفِّزات لمستقبلات الكبد X (LXRs)، وهي مستقبلات نووية تعمل على زيادة التعبير الجيني لجينات ABCA1 وABCG1 وApoE — وهي الآلية المسؤولة عن النقل العكسي للكوليسترول [31, 32]. وبالتالي، فإن تنشيط LXR بواسطة الأوكسيستيرولات (بما في ذلك 24(S)،25-إيبوكسي كوليسترول و27-هيدروكسي كوليسترول) يخلق ارتباطًا تغذويًّا أماميًّا بين فائض الستيرول الخلوي وإزالته. في الدماغ، لا يقتصر دور 24(S)-هيدروكسي كوليسترول الذي ينتجه إنزيم CYP46A1 العصبي على وظيفة تصدير الكوليسترول الموصوفة في القسم 7.1 فحسب، بل يعمل أيضًا كمُعدِّل ألوستيريكي إيجابي لمستقبلات الغلوتامات من نوع NMDA، مما يربط دوران الكوليسترول بالمرونة المشبكية [8].
12. القيود
لا تزال هناك عدة أسئلة جوهرية تتعلق باستقلاب الكوليسترول لدى الإنسان لم يتم حلها بشكل كامل، ولذا يجب توخي الحذر عند تفسير البيانات مع أخذ ذلك في الاعتبار.
- النسبة الكبدية الدقيقة من إجمالي عملية التخليق من الصفر في الجسم بأكمله تصنيع الكوليسترول. تشير البيانات المتوفرة عن المُتتبع البشري إلى نطاق يتراوح بين ~10 و25%، لكن هذا يعتمد على النمط الظاهري ويصعب قياسه تقنيًّا في الجسم الحي.
- النسبة الخاصة بكل نسيج بين تدفق بلوخ وتدفق K-R المعدل لدى البشر على مدار مراحل العمر. أُجريت دراسة ميتشه وآخرون (2015) على الفئران؛ أما البيانات المباشرة المتعلقة بالبشر فهي محدودة.
- الهوية الدقيقة لناقل الجلوتاثيون الميتوكوندريا المشارك في العمليات المتعلقة بالكوليسترول الإجهاد التأكسدي; ؛ الأدلة الحالية موضع خلاف.
- العتبة المرضية لمستوى الكوليسترول في غشاء الميموسين (IMM) لدى البشر؛ فقد لا تنطبق العتبات الدقيقة لـ mol% التي تم تحديدها في النماذج التجريبية بشكل مباشر على السياق السريري.
- الآلية التي تربط كتلة العضلات الهيكلية بالكوليسترول الضار منخفض الكثافة (LDL-C) في الدم — سواء كان ذلك عن طريق نشاط بروتين LPL، أو إشارات الميوكينات، أو الأنسولين زيادة التعبير الجيني لمستقبلات LDLR بوساطة الحساسية [33, 34].
- يُعد إفراز الكوليسترول عبر الأمعاء (TICE) مسارًا مهمًا من الناحية الكمية للتخلص من الستيرول في البراز؛ وتستلزم مساهمته مقارنةً بالإفراز الصفراوي في ظل ظروف فسيولوجية ودوائية مختلفة إجراء المزيد من الدراسات للتحديد الدقيق لهذه المساهمة في البشر.
13. الخاتمة
يُعد نظام الكوليسترول في جسم الإنسان نظامًا مزدوجًا يجمع بين الاكتفاء الذاتي المحلي والترابط الجهازي. تقوم معظم الخلايا بتخليق الكوليسترول من الصفر عبر مسار يتألف من حوالي 30 خطوة بتكلفة استقلابية كبيرة (حوالي 18 وحدة من ATP وحوالي 16 وحدة من NADPH وفقًا لحساب العوامل المساعدة الأساسية؛ وتكون هذه التكلفة أعلى عند تطبيق معايير حسابية أوسع نطاقًا). وتؤدي هذه التكلفة إلى امتصاص LDL بشكل تفضيلي بوساطة المستقبلات في معظم الأنسجة الطرفية عند توفر الكوليسترول في الدورة الدموية.
لا تحمل البروتينات الدهنية المتداولة في الدم الكوليسترول كوقود. يعمل الكوليسترول الدهني منخفض الكثافة (LDL) كمخزون متنقل للمواد الأولية الهيكلية والستيرويدية؛ بينما يسهل الكوليسترول الدهني عالي الكثافة (HDL) العودة الإلزامية للستيرولات الطرفية إلى الكبد عبر عملية النقل العكسي للكوليسترول — وهي المسار الوحيد الذي يمكن من خلاله التخلص في النهاية من نواة الستيرول من الجسم.
يُوصَف التخليق الحيوي لما بعد اللانوستيرول بشكل أكثر دقة بأنه طيف تدفق خاص بالأنسجة، بدلاً من تصنيفه ضمن ثنائية بلوخ مقابل K-R الصارمة. يستخدم الكبد بشكل رئيسي تدفق كاندوتش-راسل المعدل؛ بينما تستخدم الخصيتان والغدة الكظرية بشكل رئيسي تدفق بلوخ؛ وتُصنف خرائط الدماغ الكامل للبالغين بشكل رئيسي ضمن نمط K-R المعدل في تحليل التدفق، في حين تُظهر الخلايا النجمية والخلايا العصبية النامية سمات أقوى لنمط بلوخ/ديسموستيرول، والتي لا ينبغي الخلط بينها وبين الصورة الشاملة للعضو بأكمله. النسب المئوية العددية الدقيقة لنسب الاستيراد مقابل التخليق في الأنسجة البشرية ليست مفهومة تمامًا بالنسبة لمعظم الأنسجة الطرفية.
إن الفهم القابل للتطبيق سريريًّا لهذا النظام — الذي يشمل مفتاح SREBP2، وطيف «فرط التخليق/فرط الامتصاص»، ومحور PCSK9/LDLR، والطبقة التنظيمية للأوكسيستيرول — يشكل الأساس لاختيار منطقي بين الستاتينات، والإزيتيميب، مثبطات PCSK9، والعوامل الناشئة التي تستهدف التخليق من الصفر والنقل العكسي.
المراجع
- Bloch K. The biological synthesis of cholesterol. Science. 1965;150(3692):19-28. doi:10.1126/science.150.3692.19
- Gaylor JL. Membrane-bound enzymes of cholesterol synthesis from lanosterol. Biochem Biophys Res Commun. 2002;292(5):1139-1146. doi:10.1006/bbrc.2001.2008
- Grundy SM. Absorption and metabolism of dietary cholesterol. Annu Rev Nutr. 1983;3:71-96. doi:10.1146/annurev.nu.03.070183.000443
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Dietschy JM, Turley SD. Control of cholesterol turnover in the mouse. J Biol Chem. 2002;277(6):3801-3804. doi:10.1074/jbc.R100057200
- Goodman DS, Noble RP, Dell RB. The effects of colestipol resin and of colestipol plus clofibrate on the turnover of plasma cholesterol in man. J Clin Invest. 1973;52(10):2646-2655. doi:10.1172/JCI107457
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Wang DQ. Regulation of intestinal cholesterol absorption. Annu Rev Physiol. 2007;69:221-248. doi:10.1146/annurev.physiol.69.031905.160725
- Bosner MS, Lange LG, Stenson WF, Ostlund RE Jr. Percent cholesterol absorption in normal women and men quantified with dual stable isotopic tracers and negative ion mass spectrometry. J Lipid Res. 1999;40(2):302-308.
- Russell DW. The enzymes, regulation, and genetics of bile acid synthesis. Annu Rev Biochem. 2003;72:137-174. doi:10.1146/annurev.biochem.72.121801.161712
- Miller WL, Auchus RJ. The molecular biology, biochemistry, and physiology of human steroidogenesis and its disorders. Endocr Rev. 2011;32(1):81-151. doi:10.1210/er.2010-0013
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Brown MS, Goldstein JL. The SREBP pathway: regulation of cholesterol metabolism by proteolysis of a membrane-bound transcription factor. Cell. 1997;89(3):331-340. doi:10.1016/s0092-8674(00)80213-5
- Radhakrishnan A, Goldstein JL, McDonald JG, Brown MS. Switch-like control of SREBP-2 transport triggered by small changes in ER cholesterol: a delicate balance. Cell Metab. 2008;8(6):512-521. doi:10.1016/j.cmet.2008.10.008
- Mitsche MA, McDonald JG, Hobbs HH, Cohen JC. Flux analysis of cholesterol biosynthesis in vivo reveals multiple tissue and cell-type specific pathways. Elife. 2015;4:e07999. Published 2015 Jun 26. doi:10.7554/eLife.07999
- KANDUTSCH AA, RUSSELL AE. Preputial gland tumor sterols. 3. A metabolic pathway from lanosterol to cholesterol. J Biol Chem. 1960;235:2256-2261.
- Porter FD, Herman GE. Malformation syndromes caused by disorders of cholesterol synthesis. J Lipid Res. 2011;52(1):6-34. doi:10.1194/jlr.R009548
- Simons K, Vaz WL. Model systems, lipid rafts, and cell membranes. Annu Rev Biophys Biomol Struct. 2004;33:269-295. doi:10.1146/annurev.biophys.32.110601.141803
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Abifadel M, Varret M, Rabès JP, et al. Mutations in PCSK9 cause autosomal dominant hypercholesterolemia. Nat Genet. 2003;34(2):154-156. doi:10.1038/ng1161
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- Glass C, Pittman RC, Weinstein DB, Steinberg D. Dissociation of tissue uptake of cholesterol ester from that of apoprotein A-I of rat plasma high density lipoprotein: selective delivery of cholesterol ester to liver, adrenal, and gonad. Proc Natl Acad Sci U S A. 1983;80(17):5435-5439. doi:10.1073/pnas.80.17.5435
- Tall AR. Cholesterol efflux pathways and other potential mechanisms involved in the athero-protective effect of high density lipoproteins. J Intern Med. 2008;263(3):256-273. doi:10.1111/j.1365-2796.2007.01898.x
- Rye KA, Barter PJ. Formation and metabolism of prebeta-migrating, lipid-poor apolipoprotein A-I. Arterioscler Thromb Vasc Biol. 2004;24(3):421-428. doi:10.1161/01.ATV.0000104029.74961.f5
- Garcia-Ruiz C, Mari M, Colell A, et al. Mitochondrial cholesterol in health and disease. Histol Histopathol. 2009;24(1):117-132. doi:10.14670/HH-24.117
- Miettinen TA, Gylling H. Cholesterol absorption efficiency and sterol metabolism in obesity. Atherosclerosis. 2000;153(1):241-248. doi:10.1016/s0021-9150(00)00404-4
- Sudhop T, Lütjohann D, Kodal A, et al. Inhibition of intestinal cholesterol absorption by ezetimibe in humans. Circulation. 2002;106(15):1943-1948. doi:10.1161/01.cir.0000034044.95911.dc
- Goldstein JL, Brown MS. A century of cholesterol and coronaries: from plaques to genes to statins. Cell. 2015;161(1):161-172. doi:10.1016/j.cell.2015.01.036
- Janowski BA, Willy PJ, Devi TR, Falck JR, Mangelsdorf DJ. An oxysterol signalling pathway mediated by the nuclear receptor LXR alpha. Nature. 1996;383(6602):728-731. doi:10.1038/383728a0
- Kalaany NY, Mangelsdorf DJ. LXRS and FXR: the yin and yang of cholesterol and fat metabolism. Annu Rev Physiol. 2006;68:159-191. doi:10.1146/annurev.physiol.68.033104.152158
- Vella CA, Nelson MC, Unkart JT, Miljkovic I, Allison MA. Skeletal muscle area and density are associated with lipid and lipoprotein cholesterol levels: The Multi-Ethnic Study of Atherosclerosis. J Clin Lipidol. 2020;14(1):143-153. doi:10.1016/j.jacl.2020.01.002
- Hong S, Chang Y, Jung HS, Yun KE, Shin H, Ryu S. Relative muscle mass and the risk of incident type 2 diabetes: A cohort study. PLoS One. 2017;12(11):e0188650. Published 2017 Nov 30. doi:10.1371/journal.pone.0188650

