Enfermedad cardiovascular (ECV) sigue siendo el desafío de salud pública más formidable de la era moderna, ya que se mantiene como la principal causa de mortalidad mundial y representa aproximadamente un tercio de todas las muertes en todo el mundo.1La comprensión canónica de ateroesclerosis—el estrechamiento y endurecimiento progresivo e insidioso de los vasos arteriales a través de fibrograsa placa deposición—atribuye la patogenia a una constelación de factores bien establecidos y predominantemente modificables factores de riesgo. Estos determinantes clásicos incluyen los sistémicos hipertensión, dislipidemia (específicamente bajo la densidad elevada lipoproteína colesterol), tipo 2 diabetes mellitus, obesidad, la inactividad física, la edad avanzada y el consumo de tabaco.1Sin embargo, un persistente y profundamente confusor La paradoja epidemiológica ha puesto en duda desde hace tiempo la exhaustividad absoluta de este paradigma tradicional: aproximadamente el 15% de los primeros episodios de enfermedades cardiovasculares, incluyendo los catastróficos infartos de miocardio y accidentes cerebrovasculares, ocurren en pacientes que presentan una ausencia completa y absoluta de estos factores de riesgo establecidos.1]
Esta profunda anomalía clínica se ve además complicada e iluminada por el campo de la cardiología comparativa entre especies. Al observar el reino de los mamíferos en un sentido más amplio, las trombosis coronarias y los infartos de miocardio de aparición natural impulsados por ateromas ruptura de placa son prácticamente inexistentes en especies distintas a los humanos.1] Esta resistencia se mantiene notablemente firme incluso en nuestros parientes evolutivos más cercanos, los homínidos no humanos. Los chimpancés en cautiverio comparten frecuentemente estilos de vida sedentarios similares a los de los humanos y muestran alteraciones fisiológicas llamativamente análogas, que incluyen hiperlipidemia profunda, edad avanzada e hipertensión sistémica.[1Sin embargo, a pesar de poseer sangre propensa al riesgo cardiovascular similar a la humana perfiles lipídicos y evidencia de ateroesclerosis leve en etapa temprana, estos primates rara vez sufren de eventos terminales de ECV ateroesclerótica.2] Cuando sea catastrófico eventos cardíacos ocurren en poblaciones de chimpancés, rigurosos análisis post mortem revelan que sus infartos cardíacos están abrumadoramente impulsados por un factor aún no explicado fibrosis miocárdica intersticial—una cicatrización difusa del miocardio—en lugar de la ruptura de placa ateromatosa canónica y su posterior trombosis visto en pacientes humanos.2] Además, aunque pesado carne roja el consumo es un amplificador epidemiológico universalmente reconocido del riesgo de enfermedades cardiovasculares en las poblaciones humanas, este patrón dietético exacto no provoca aterogénesis en otros mamíferos carnívoros u omnívoros.2]
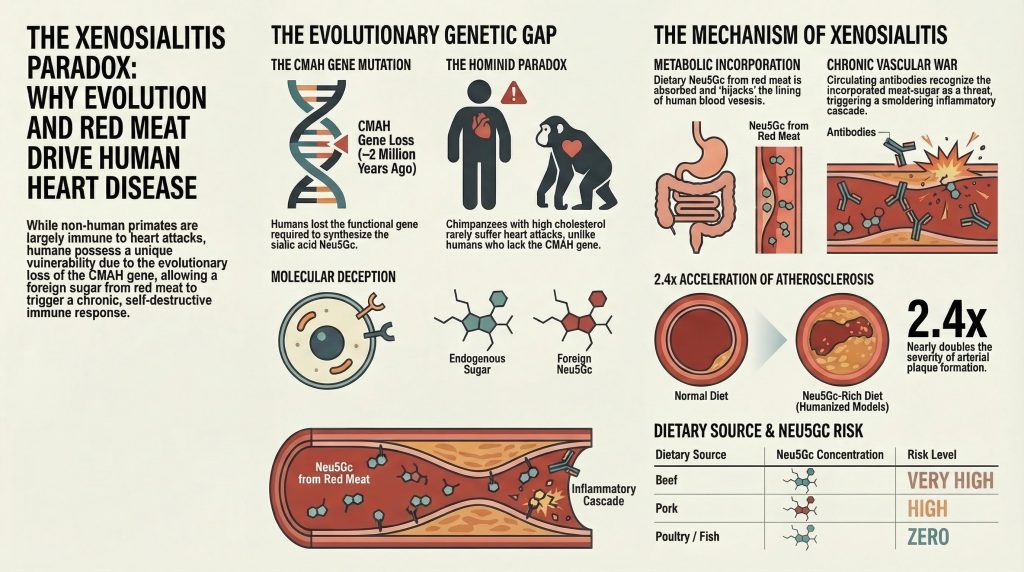
Esta profunda divergencia apunta inexorablemente hacia una predisposición genética intrínseca y específica de la especie a la aterosclerosis en los seres humanos.1El quid de esta vulnerabilidad única no radica estrictamente en el metabolismo lipídico, el estrés de corte hemodinámico o las variables conductuales por sí solos, sino en una antigua anomalía genética evolutiva que involucra la biología fundamental de la superficie celular glucanos. Específicamente, la susceptibilidad cardiovascular humana está intrínsecamente ligada a una pérdida evolutiva de la capacidad de sintetizar Ácido N-glicolilneuramínico (Neu5Gc), un ácido siálico de mamíferos ubicuo.1A pesar de esta profunda deficiencia genética, el consumo humano de carne roja rica en Neu5Gc da como resultado la incorporación metabólica de este glicano no humano directamente en los tejidos humanos, más notablemente en el sistema vascular endotelio.[3,4] El reconocimiento inmunológico posterior de este azúcar incorporado como un “xenoautoantígeno”desencadena una cascada inflamatoria crónica y latente denominada“xenosialitis.”[5]
Este exhaustivo informe de investigación elucida los mecanismos evolutivos, bioquímicos e inmunológicos altamente intrincados que sustentan la hipótesis de la xenosialitis. Al explorar la deleción genómica del gen CMAH, la compleja digestión mediada por el microbioma de la dieta Neu5Gc, el secuestro molecular de las vías de glicosilación intracelular humana y la consiguiente destrucción endotelial mediada por anticuerpos policlonales, este análisis proporciona una comprensión integral de por qué los seres humanos son singularmente susceptibles a la aterosclerosis asociada con la carne roja, y exactamente cómo este mecanismo incrementa cuantificablemente el riesgo cardiovascular a lo largo de la vida.
El paradigma evolutivo: La mutación del gen CMAH y los orígenes humanos
La biología fundamental de los ácidos siálicos
Para comprender con precisión la magnitud y la consecuencia del defecto genético humano, primero hay que establecer el papel fisiológico y estructural de ácidos siálicos dentro de la biología de vertebrados. Las superficies de todas las células de los vertebrados están íntimamente decoradas con una matriz densa, compleja y altamente regulada de cadenas de azúcares, que están predominantemente unidas a la membrana integral proteínas y lípidos de superficie para formar el glucocálix.[6,7] La mayoría de las proteínas secretadas solubles que circulan por el torrente sanguíneo humano también están decoradas de manera similar con tales glicanos especializados.6,7Los ácidos siálicos representan una familia diversa de monosacáridos altamente modificados construidos sobre una estructura carbonada de nueve átomos, y típicamente se encuentran cubriendo los extremos más externos y terminales de estas cadenas de glicanos.6,7]
Debido a su ubicación distal en las glicoproteínas y glicolípidos, combinada con su fuerte carga electronegativa a pH fisiológico, los ácidos siálicos desempeñan funciones indispensables y multifacéticas en la mediación de la adhesión celular, la modulación de las interacciones receptor-ligando, la estabilización de la glicocáliz endotelial barrera y regulando la autorreconocimiento inmunitario mediante lectinas específicas de unión al ácido siálico (Siglecs).6,8]
En la gran mayoría de las especies de mamíferos, y de hecho en la mayoría de los vertebrados terrestres, las dos formas predominantes de ácido siálico son el ácido N-acetilneuramínico (Neu5Ac) y su derivado hidroxilado directo, el ácido N-glicolilneuramínico (Neu5Gc).[6,7Estas dos moléculas son estructuralmente casi idénticas, y se diferencian por la presencia de un solo átomo de oxígeno.5] La transición bioquímica del precursor Neu5Ac al derivado Neu5Gc es catalizada exclusivamente por una sola enzima altamente específica: la citidina monofosfato-N-acetilneuramínico ácido hidroxilasa (CMAH).[1,3] Esta enzima crítica actúa sobre el nucleótido-azúcar donante CMP-Neu5Ac dentro del citosol celular, facilitando una reacción de monooxigenasa que añade un grupo hidroxilo para generar CMP-Neu5Gc.[6,7] Tanto el CMP-Neu5Ac como el CMP-Neu5Gc son transportados posteriormente desde el citosol hacia el lumen del aparato de Golgi, donde actúan como los principales donantes de nucleótido-azúcar para su adición a los sintetizados recientemente glucoconjugados.[6,7] En consecuencia, los tejidos normales de los mamíferos exhiben un mosaico rico, intercalado y altamente funcional de Neu5Ac y Neu5Gc en sus superficies celulares.[6,7]
| Característica | Ácido N-acetilneuramínico (Neu5Ac) | Ácido N-glicolilneuramínico (Neu5Gc) |
| Espinaca estructural | monosacárido de 9 carbonos | monosacárido de 9 carbonos |
| Diferencia química | Posee un grupo N-acetilo | Posee un grupo N-glicolilo (adición de un átomo de oxígeno) |
| Origen biosintético | Sintetizado de novo en todos los vertebrados | Sintetizado a partir de Neu5Ac mediante la enzima CMAH |
| Estatus en humanos | El ácido siálico humano endógeno predominante | Ausente genéticamente; considerado un “foráneo” xenoantígeno |
| Distribución de los mamíferos | Ubicuo en todas las especies de mamíferos | Ubicuo en mamíferos no humanos; ausente en humanos |
El evento de seudogenización mediado por Alu
Los seres humanos, sin embargo, representan una anomalía marcada y consecuente dentro del linaje de los mamíferos. Los tejidos humanos normales y sanos son genética y fundamentalmente incapaces de sintetizar Neu5Gc.5Esta truncación bioquímica no es una supresión reguladora, sino la consecuencia directa de una mutación irreversible y específica de especie dentro del propio gen CMAH.1,3]
Las estimaciones paleogenómicas y los análisis filogenéticos comparativos indican que hace aproximadamente entre 2 y 3 millones de años —una época temporal que corresponde a la aparición del género Homo de nuestros antepasados homininos, ocurrió un evento genómico fundamental.1,9,12] Un Elemento transponible Alu, un tipo de “gen saltarín” común en los genomas de los primates, se inserció en el locus genético CMAH. Esta inserción medió una deleción catastrófica por desplazamiento del marco de lectura de un exón crítico de 92 pares de bases dentro del gen CMAH, lo que resultó en un codón de parada prematuro y la total pseudogenización (inactivación completa) del locus.9,12Debido a que la reacción enzimática de CMP-Neu5Ac a CMP-Neu5Gc es estrictamente unidireccional y depende enteramente de la CMAH, la pérdida de esta única enzima interrumpió permanentemente la ruta biosintética.1,3Como consecuencia directa, los humanos modernos producen únicamente el precursor, Neu5Ac, dejando sus superficies celulares completamente desprovistas de Neu5Gc endógeno y alterando drásticamente el panorama bioquímico del organismo humano.1,3]
Presiones de selección evolutiva: patógenos y aislamiento reproductivo
La fijación de una mutación de pérdida de función en un gen responsable de la síntesis de una molécula primaria y omnipresente de la superficie celular es un evento evolutivo extraordinario. Una alteración tan drástica y repentina en el glucocálix del huésped debió haber sido impulsada por presiones de selección evolutiva fenomenalmente intensas, ya que es muy poco probable que la deriva genética estocástica por sí sola explique la fijación completa y a escala poblacional de un cambio bioquímico tan fundamental.12La biología evolutiva actual postula un modelo multifactorial para la fijación rápida del alelo nulo CMAH en la población hominina ancestral.
La hipótesis principal, y la más investigada activamente, involucra una brutal carrera armamentista evolutiva entre huésped y patógeno, específicamente relacionada con los ancestros del agente causante de la malaria Plasmodium parásitos.9,12Los ácidos siálicos de la superficie celular de los mamíferos sirven como los principales receptores de anclaje y motivos de reconocimiento para diversos patógenos virales, bacterianos y parasitarios.6,7Es altamente probable, según las firmas genómicas de selección, que los homininos ancestrales hayan sido diezmados por una cepa altamente virulenta de malaria de “homínidos no humanos” (NHH) que seucía preferentemente a eritrocitos ricos en Neu5Gc para ingresar a las células.9,12] La pérdida del gen CMAH mediada por Alu, aunque potencialmente perjudicial en otros aspectos, proporcionó una ventaja de supervivencia repentina y salvadora a los raros individuos portadores de la mutación. Al despojar eficazmente al huésped del receptor en la superficie celular preferido por el patógeno, los homininos deficientes en CMAH pudieron escapar de la plaga de malaria imperante, lo que condujo a un barrido selectivo masivo que fijó la mutación nula en toda la población sobreviviente.[9,12] Sin embargo, esta victoria evolutiva fue temporal en el gran ámbito del tiempo profundo. Plasmodium falciparum—el agente altamente letal responsable de la malaria maligna humana moderna—evolucionó eventualmente la capacidad de unirse preferentemente a los eritrocitos ricos en Neu5Ac, específicos de los humanos y recientemente ubicuos, restableciendo la dinámica huésped-patógeno.6,7,12]
Una hipótesis secundaria, pero igualmente convincente y complementaria, involucra el aislamiento reproductivo y la “selección catastrófica” mediada por el sistema inmunológico femenino.12Los espermatozoides de los mamíferos están fuertemente sialilados y utilizan glicanos de superficie complejos para mejorar la supervivencia de los espermatozoides, enmascarar proteínas inmunogénicas y optimizar la función a lo largo del peligroso viaje a través del tracto reproductor femenino hasta el sitio de fertilización en el oviducto.12Una homínida hembra portadora de la rara mutación nula de CMAH desarrollaría naturalmente anticuerpos circulantes anti-Neu5Gc tras la exposición posnatal al Neu5Gc ambiental o dietético, ya que su sistema inmunológico reconocería la molécula como ajena.10,12,18] Si esta hembra mutante se apareaba posteriormente con un macho de tipo silvestre (positivo para CMAH), sus anticuerpos circulantes atacarían y neutralizarían agresivamente los espermatozoides paternos ricos en Neu5Gc, lo que reduciría gravemente su éxito reproductivo y destruiría eficazmente la viabilidad del emparejamiento.[12] Durante miles de generaciones, esta selección femenina inmunomediada contra el Neu5Gc paterno crearía una barrera reproductiva intensa e implacable entre las poblaciones mutantes y de tipo silvestre, impulsando la fijación rápida del genotipo nulo para CMAH y contribuyendo potencialmente de forma directa al evento de especiación que en última instancia aisló a los ancestros humanos de otros homínidos. [12]
El desajuste dietético: digestión y procesamiento microbiano de ácidos siálicos exógenos
La pérdida evolutiva del gen CMAH hace que el Neu5Gc sea bioquímicamente completamente extraño para el organismo humano moderno.5] Sin embargo, a pesar de esta profunda deficiencia genética, las dietas humanas modernas —particularmente en las sociedades occidentalizadas— están repletas de esta molécula. El Neu5Gc está altamente concentrado en carnes rojas de origen mamífero, específicamente carne de res, cerdo y cordero, que siguen siendo alimentos básicos del consumo mundial.[3,8,22Además, los productos lácteos derivados de estos mamíferos también contienen cantidades mensurables, aunque menores, del ácido siálico no humano.8]
Los ensayos bioquímicos rigurosos y la cromatografía líquida de alta eficacia han definido claramente el panorama dietético de la exposición a Neu5Gc. La investigación demuestra que la carne de res contiene los niveles absolutos más altos de la molécula, albergando aproximadamente 30,1 µg/g de Neu5Gc, seguida de cerca por la carne de cerdo con 25,5 µg/g.7,8Por otro lado, las especies aviares (como las aves de corral) y diversos linajes de peces divergieron del árbol de los mamíferos mucho antes de la evolución del gen CMAH, o lo perdieron de forma independiente, por lo que carecen por completo y de forma nativa de Neu5Gc.7,8Esta dicotomía bioquímica estricta hace que la exposición dietética a Neu5Gc sea altamente específica al consumo de carne roja de mamíferos.7,8]
| Fuente alimentaria | Clasificación de contenido de Neu5Gc | Concentración específica de Neu5Gc |
| Carne de res | Muy alto | ~ 30.1 µg/g |
| Cerdo | Alto | ~ 25.5 µg/g |
| Cordero / Conejo | Alto | Comparable a res o cerdo |
| Productos lácteos | Moderado | Variable, presente en las glicoproteínas de la leche |
| Aves de corral (Pollo, Pavo) | Cero (bioquímicamente ausente) | 0.0 µg/g |
| Pescados y mariscos | Cero (bioquímicamente ausente) | 0.0 µg/g |
El papel fundamental del microbioma intestinal
La transición del Neu5Gc de la dieta, desde un alimento consumido que reposa en la luz gástrica hasta una entidad bioquímica absorbida y activa a nivel sistémico, está regulada estrictamente por el microbioma gastrointestinal del huésped. El Neu5Gc de la dieta generalmente no se ingiere como un monosacárido libre; más bien, se consume principalmente en una forma ligada a glicósidos, integrada profundamente en las glicoproteínas complejas, mucinas y glicolípidos que componen el tejido de los mamíferos (como la mucina submaxilar porcina).8,17] Esta distinción entre el ácido siálico libre y unido es de primordial importancia fisiológica. Si bien el Neu5Gc libre y no unido puede técnicamente absorberse a través de la barrera intestinal, el organismo lo reconoce como una molécula pequeña, altamente soluble y no utilizable. En consecuencia, el Neu5Gc libre es eliminado rápidamente por el sistema renal y excretado de manera eficiente en la orina, sin lograr en absoluto causar una acumulación tisular a largo plazo ni patología.[11,16] Es solo el Neu5Gc estructuralmente unido, presentado en complejos arreglos macromoleculares, el que experimenta el peligroso proceso de incorporación metabólica.11,16,17]
Recientes avances en la secuenciación metagenómica del ser humano y murino microbiota intestinal han revelado que la flora microbiana residente responde de manera dinámica y rápida a una dieta rica en Neu5Gc.17] Específicamente, poblaciones pertenecientes a los órdenes Bacteroidales y Clostridiales experimentan una expansión fenotípica significativa cuando se exponen a los asociados con la carne roja carbohidratos.[17Estos clados bacterianos específicos han evolucionado para expresar sialidasas bacterianas (neuraminidasas) altamente especializadas, diseñadas específicamente para escindir los ácidos siálicos terminales de las mucinas mucosas del huésped y, de manera crucial, de las glicoproteínas de la dieta.17,20,21]
Históricamente, se asumía que las sialidasas bacterianas preferían exclusivamente el Neu5Ac endógeno del huésped, ya que este es el sustrato más abundante en el intestino humano. Sin embargo, profundos estudios estructurales que utilizan cristalografía de rayos X avanzada han identificado configuraciones de aminoácidos específicas y previamente no observadas en ciertas sialidasas bacterianas que confieren una preferencia de sustrato de afinidad inusualmente alta por los glicanos que contienen Neu5Gc.17] Estos microbios intestinales especializados orquestan una compleja dinámica de alimentación cruzada dentro del microbioma, en la cual utilizan la vía genética Nan para catabolizar activamente los ácidos siálicos escindidos como fuente de energía y carbono. [20,21Curiosamente, el catabolismo posterior de Neu5Ac produce ácido acético como subproducto, mientras que el metabolismo bacteriano de Neu5Gc genera ácido glicólico.20,21Estas diferencias en los subproductos metabólicos pueden alterar sutilmente el pH local y el panorama metabólico del epitelio colónico, contribuyendo al entorno inflamatorio general.20,21]
Se sospecha fuertemente que la liberación enzimática de Neu5Gc por parte de estas sialidasas microbianas a partir de las glicoproteínas masivas de la carne en fragmentos de oligosacáridos más pequeños y específicos (como GalNGc) es el primer paso necesario para la posterior absorción intestinal y distribución sistémica del azúcar no humano.8,17]
Secuestro celular: el mecanismo de incorporación metabólica
Una vez que el Neu5Gc unido glicosídicamente de la dieta (o sus intermediarios oligosacáridos liberados por el microbioma) atraviesa el complejo epitelio intestinal, ingresa a la circulación sistémica. La evidencia demuestra que, tras una comida con carne roja, estos xenoglicanos aparecen en la circulación humana a un nivel de estado estacionario que persiste durante varias horas, lo que proporciona una amplia oportunidad para la interacción tisular.11,15,16] El fenómeno por el cual esta molécula dietética completamente extraña se integra permanentemente en los tejidos humanos representa una vulnerabilidad fascinante y altamente peligrosa en la bioquímica humana. El problema fundamental es de engaño molecular: nuestra maquinaria de glicosilación intracelular, altamente conservada, simplemente no puede distinguir entre el precursor endógeno (Neu5Ac) y el análogo exógeno no humano (Neu5Gc).[3,5,11Las moléculas, que se diferencian por un solo y diminuto átomo de oxígeno, parecen idénticas a las enzimas responsables de la construcción celular.3,5]
La vía endocítica y lisosomal
Debido a que las células humanas carecen por completo de un transportador de membrana plasmática dedicado específicamente a la captación de ácidos siálicos libres del espacio extracelular, la internalización de los glicoconjugados con Neu5Gc circulantes debe ocurrir a través de rutas alternativas.11,13,16] Esta captación es impulsada principalmente por la endocitosis en fase líquida y la macropinocitosis, procesos en los cuales la célula prácticamente “bebe” el líquido extracelular circundante y su contenido disuelto.[11,12,16]
Al internalizarse, estas moléculas exógenas se encapsulan en endosomas y se transportan cuidadosamente al entorno degradativo y altamente ácido del lisosoma.11,16Dentro del lisosoma, las sialidasas lisosomales de origen huésped escinden enzimáticamente los glicoconjugados complejos de la dieta, liberando finalmente monosacáridos de Neu5Gc libres en lo profundo de la célula.11,16]
La puerta de entrada crítica e irreparable para la posterior incorporación de esta molécula es el transportador lisosomal de ácido siálico, una proteína conocida como sialina (codificada por el SLC17A5 gen).11,13,16La sialina es una proteína transmembrana altamente conservada cuya función fisiológica normal es la recuperación y el reciclaje de Neu5Ac endógena del huésped a partir de glucoproteínas degradadas en el lisosoma, bombeándolas de regreso al citosol para su reutilización.11,16Sin embargo, la sialin no es perfectamente selectiva; acepta fácilmente las moléculas libres de Neu5Gc derivadas de la carne roja y las transporta activamente hacia el espacio citosólico, vulnerando eficazmente la última barrera interna de la célula.11,12,16]
Síntesis de novo y expresión endotelial
Una vez dentro de la relativa seguridad del citosol, el Neu5Gc exógeno ingresa a la vía de síntesis de ácido siálico de novo de la célula huésped, iniciando las etapas finales del secuestro bioquímico. La molécula es procesada por la citidina monofosfato (CMP)-ácido siálico sintasa, una enzima que activa el monosacárido al adjuntar un nucleótido de CMP de alta energía, formando el complejo donante CMP-Neu5Gc.6,7] Este dador de azúcar-nucleótido activado se transporta activamente hacia el lumen del aparato de Golgi, el centro neurálgico de clasificación y modificación de la célula.[6,7]
Dentro del aparato de Golgi, las glicosiltransferasas humanas —las enzimas precisas responsables de construir los complejos y ramificados árboles de glicanos en proteínas y lípidos recién sintetizados— utilizan ciegamente los abundantes donantes de CMP-Neu5Gc como si fueran los CMP-Neu5Ac correctos y endógenos.3,5,11En consecuencia, el Neu5Gc se une de forma covalente y permanente a las glicoproteínas y glicolípidos recién sintetizados. Estas moléculas recién ensambladas y xeno-sialiladas son transportadas luego a través de vesículas secretoras hasta la superficie celular, donde se integran en la membrana plasmática.3,5]
A través de esta intrincada ruta bioquímica, las células humanas esencialmente secuestran un compuesto de la dieta y, sin saberlo, arman las superficies de sus propias células. Si bien se ha observado la acumulación de Neu5Gc en varios tejidos humanos, incluidos los epitelios que recubren los órganos huecos (lo que explica su fuerte vínculo epidemiológico con diversos carcinomas), este muestra un tropismo profundo y altamente selectivo por el endotelio vascular, el revestimiento delicado e interno de todos los vasos sanguíneos.5,22] Rigurosos estudios inmunohistoquímicos de muestras de autopsias humanas, utilizando tanto anticuerpos de pollo anti-Neu5Gc monospecíficos y altamente específicos como sueros humanos purificados por afinidad, han demostrado definitivamente una intensa expresión de Neu5Gc en el tejido humano de aspecto normal aorta, la densa microvasculatura del colon y la placenta, y fundamentalmente, en el endotelio que recubre directamente las placas ateroescleróticas activas.5]
La génesis inmunológica: cebado comensal y xeno-autoanticuerpos
La presencia de una molécula no humana unida covalentemente a tejidos humanos plantea una paradoja inmunológica singularmente peligrosa, categorizada formalmente en la literatura como un “xeno-autoantígeno”.5Debido a que el Neu5Gc es biológicamente extraño (“xeno”) debido a nuestra historia evolutiva, el sistema inmunitario humano lo reconoce como extraño a pesar de estar físicamente integrado dentro del contexto íntimo de los propios patrones moleculares asociados al huésped en la superficie endotelial.5,6]
La ontogenia de la respuesta inmune
La extensa vigilancia inmunológica y las pruebas epidemiológicas revelan un hecho sorprendente: prácticamente todos los adultos humanos normales y sanos poseen anticuerpos policlonales anti-Neu5Gc circulantes y altamente activos.5,6,10Estos repertorios de anticuerpos altamente diversos comprenden los isotipos de Inmunoglobulina G (IgG), IgA e IgM, y se dirigen a una amplia variedad de epítopos que contienen Neu5Gc y que se encuentran comúnmente en humanos células endoteliales.[5,6,10] De manera crucial, estos anticuerpos no son anticuerpos “naturales” codificados en la línea germinal (como aquellos que determinan el sistema de grupos sanguíneos ABO, los cuales están presentes independientemente de una exposición específica).5,10,18Más bien, requieren una estimulación antigénica postnatal específica y experimentan una maduración clásica de la afinidad para lograr sus altas capacidades de unión.10,18]
Los análisis detallados de la sangre del cordón umbilical infantil demuestran una ausencia absoluta y total de anticuerpos anti-Neu5Gc (específicamente IgM) en el momento del nacimiento.10,18Los niveles de títulos permanecen indetectables durante los primeros meses de vida, lo que descarta firmemente la transferencia transplacentaria como la fuente principal de inmunidad a largo plazo.10,18Sin embargo, estos títulos de anticuerpos comienzan a aumentar de manera pronunciada y constante alrededor de los seis meses de edad.10,18] Esta cronología precisa se correlaciona perfectamente con la introducción de fórmulas a base de leche de vaca, productos lácteos y el proceso general de destete hacia alimentos sólidos, lo que marca la primera exposición sistémica absoluta del lactante al Neu5Gc de la dieta.8,10,18Además, los estudios epidemiológicos que examinan exposiciones ambientales más amplias han demostrado que los niños criados en granjas activas, quienes presumiblemente están expuestos a niveles ambientales significativamente más altos de antígenos de origen animal, exhiben niveles estadísticamente más altos de IgG circulante contra Neu5Gc en comparación con los niños urbanos que no viven en granjas.8,18]
Inoculación bacteriana mediante Haemophilus influenzae
Surge una pregunta crítica y mecanística: ¿cómo monta el sistema inmunitario humano una respuesta de anticuerpos tan robusta, de por vida y con maduración de la afinidad contra un simple azúcar de la dieta, especialmente dado que el Neu5Gc libre, cuando se aísla, es solo débilmente inmunogénico por sí mismo?
La respuesta radica en el fenómeno insidioso del mimetismo molecular microbiano y el camuflaje bacteriano. Si bien la síntesis genética de Neu5Gc endógeno nunca se ha documentado en ningún microbio bacteriano, viral o fúngico en todo el árbol de la vida, ciertos patógenos humanos comensales altamente adaptados actúan como carroñeros moleculares eficientes.14,21] No tipificable Haemophilus influenzae (NTHi), una bacteria comensal ubicua y específica de los humanos y un patógeno respiratorio oportunista responsable de la otitis media y de las exacerbaciones respiratorias, posee un transportador periplásmico tripartito independiente de ATP (TRAP) altamente especializado.14,21] Este sistema de transporte específico captura de manera eficiente cantidades traza de Neu5Gc de la dieta del entorno mucoso del huésped. [14,21]
Una vez recolectado del huésped, el NTHi incorpora metabólicamente este Neu5Gc directamente en los lipooligosacáridos de su propia superficie celular (LOS).14,19,21] Esta sialilación bacteriana confiere al organismo una ventaja de supervivencia masiva, casi impenetrable. La integración de Neu5Gc en su biopelícula protectora aumenta significativamente la resistencia de la bacteria a la destrucción mediada por el complemento por parte del sistema inmunitario innato del hospedador.[14,21] Esto lo logra principalmente al abrogar la vía clásica de activación del complemento, previniendo activamente que los anticuerpos IgM del hospedador se unan a la superficie bacteriana e inicien la lisis.[14,21]
Sin embargo, este sofisticado mecanismo de camuflaje bacteriano conlleva un costo grave y crónico para el huésped humano. La presentación del antígeno Neu5Gc en la superficie altamente inflamatoria y asociada a patógenos de un patógeno bacteriano actúa como un adyuvante inmunológico natural e intenso.10,14,21Cuando el sistema inmunológico humano inevitablemente monta una respuesta sistémica vigorosa contra la bacteria NTHi para eliminar la infección, genera simultáneamente un vasto repertorio de anticuerpos anti-Neu5Gc de reacción cruzada.10,14,21Hoy en día se acepta ampliamente en el campo que esta potenciación posnatal mediada por patógenos, que opera en constante conjunto con la exposición diaria a la carne roja en la dieta, proporciona la señal altamente inflamatoria requerida para la producción y el mantenimiento de por vida de xeno-autoanticuerpos.5,10,14,18]
Xenosialitis: La mecánica de la aterogénesis
La convergencia desastrosa de la incorporación metabólica (que proporciona el antígeno endotelial generalizado) y el cebado microbiano (que proporciona el anticuerpo circulante de alta afinidad) culmina en un estado continuo y latente de inflamación vascular inflamación denominado formalmente “xenosialitis”.5] Este proceso patológico es excepcionalmente insidioso porque el antígeno se reabastece continuamente con cada comida de carne roja consumida a lo largo de la vida, lo que garantiza que el ciclo inflamatorio nunca alcance una resolución biológica.
La fisiopatología precisa de la xenosialitis, particularmente en el contexto directo de la aceleración de la aterosclerosis, se desarrolla en una cascada secuencial y altamente orquestada de destrucción celular:5]
- Unión antígeno-anticuerpo: Los anticuerpos policlonales circulantes anti-Neu5Gc humanos (principalmente los isotipos IgG y IgA) examinan continuamente el endotelio vascular a medida que la sangre fluye a través del árbol arterial. Al encontrar un epítopo Neu5Gc incorporado metabólicamente que se exhibe en el delicado glucocálix endotelial, los anticuerpos se unen con alta afinidad, formando un denso in situ complejo inmune directamente sobre la pared del vaso.5]
- Activación de la cascada del complemento: La agrupación espacial de las moléculas de IgG e IgA en la superficie endotelial expone sus regiones Fc (fragmento cristalizable) al torrente sanguíneo. Esta matriz expuesta proporciona un sitio de unión ideal para el complejo proteico C1q, el iniciador del sistema del complemento.5,15Esto desencadena la cascada del complemento clásica, lo que lleva a la deposición agresiva y sublítica de proteínas del complemento (como C3b y el complejo de ataque a la membrana) directamente sobre el endotelio intacto y por lo demás sano.5]
- Activación endotelial profunda El fuerte depósito de proteínas del complemento, combinado con la reticulación mecánica de los receptores de superficie por parte de los anticuerpos, empuja con fuerza a la célula endotelial desde su estado normal, quiescente y no trombogénico hacia un fenotipo proinflamatorio altamente activado.5Sofisticado in vitro los modelos demuestran que la simple incubación de sueros humanos de alto título con células endoteliales alimentadas con Neu5Gc causa directamente cambios masivos en la señalización intracelular, lo que resulta en la exocitosis rápida de los cuerpos de Weibel-Palade y la rápida de nuevo transcripción de genes inflamatorios.5]
- Secreción de citocinas y regulación al alza de selectinas: El endotelio recién activado comienza a secretar grandes cantidades de citocinas proinflamatorias, creando un gradiente quimiotáctico localizado diseñado para convocar células inmunitarias.5Simultáneamente, las células regulan rápidamente al alza la expresión superficial de moléculas de adhesión críticas, específicamente la E-selectina y la P-selectina.5] La P-selectina, en particular, es un mediador potente y bien reconocido de tromboembolismo recurrente y trastornos cardiovasculares, que actúa para facilitar la unión y el rodamiento iniciales de los leucocitos circulantes a la pared del vaso.[23]
- Extravasación de leucocitos y formación de placa: La fuerte presencia de selectinas y el glucocáliz alterado conducen a la unión de monocitos dependiente de Neu5Gc.5] Los monocitos circulantes ruedan a lo largo del endotelio activado, se adhieren firmemente mediante interacciones de integrinas y realizan diapédesis activa (se extienden) hacia el espacio subendotelial (la túnica íntima). Una vez atrapados dentro de la pared arterial, estos monocitos hiperactivos se transforman en residentes macrófagos, comienzan a engullir agresivamente lipoproteínas de baja densidad oxidadasLDL), y crecen hasta alcanzar un tamaño masivo células espumosas. La acumulación y posterior muerte apoptótica de estas células espumosas forman la base altamente trombogénica núcleo necrótico de la placa ateroesclerótica.5]
- Bucles de Amplificación Sinérgica: Esta cascada destructiva no opera en el vacío; se ve amplificada aún más por estados inflamatorios sistémicos. La presencia del Factor de Necrosis Tumoral alfa (TNF-α), una citoquina proinflamatoria ubicua y altamente potente que típicamente se regula al alza durante los brotes de daño vascular general o síndrome metabólico, selectivamente y con gran potencia, mejora la reactividad de los anticuerpos humanos anti-Neu5Gc, creando un bucle de retroalimentación positivo y compuesto de destrucción vascular.5Además, hierro hemo, altamente concentrada en carnes rojas, ejerce sus propios efectos proinflamatorios y oxidativos independientes que agravan el daño endotelial iniciado por los glicanos.22,23]
| Etapa de patogénesis | Actor celular/molecular | Acción y Consecuencia |
| 1. Identificación del objetivo | Neu5Gc endotelial e IgG/IgA circulantes | Formación de complejos inmunes in situ en la pared arterial por lo demás sana. |
| 2. Iniciación en cascada | Proteína C1q del complemento | Unión a las regiones Fc de anticuerpos, lo que desencadena la deposición clásica del complemento. |
| 3. Cambio celular | Célula endotelial | Transición de un estado latente a un fenotipo activado proinflamatorio. |
| 4. Alteración superficial | E-selectina y P-selectina | Regulación positiva masiva en la superficie celular, actuando como ganchos de anclaje para las células inmunitarias. |
| 5. Infiltración | Monocitos / Macrófagos | Adhesión, diapédesis hacia la túnica íntima y posterior transformación en células espumosas cargadas de lípidos. |
| 6. Maduración de la placa | Células espumosas y citocinas | La acumulación crea el núcleo necrótico; la liberación de citocinas (TNF-α) amplifica aún más la reactividad de los anticuerpos. |
Cuantificación del riesgo: Evidencia incontestable de modelos de ratón humanizado
Para aislar, verificar y cuantificar rigurosamente la contribución específica de la pérdida evolutiva de CMAH a la enfermedad cardiovascular —separándola expresamente de la miríada de factores de estilo de vida confusores inherentes a la existencia humana moderna (como fumar, el sedentarismo y el consumo de azúcar refinado), los investigadores diseñaron un modelo animal transgénico profundo y altamente específico: el de tipo humano Cmah^-/- Ldlr^-/- ratón.[1]
Ratones de laboratorio silvestres (Cmah^+/+) producen natural y abundantemente Neu5Gc y, como prácticamente todos los demás mamíferos, no sufren de xenosialitis.1Para recrear con precisión la condición humana, los investigadores utilizaron ingeniería genética para eliminar ambos Cmah gen (que imita perfectamente la pérdida evolutiva humana hace 2 o 3 millones de años) y el Ldlr Gen (del receptor de lipoproteínas de baja densidad). El Ldlr la eliminación génica es un procedimiento estándar requerido para inducir susceptibilidad basal a la aterosclerosis impulsada por la dieta en ratones, lo que permite a los investigadores medir las variaciones en la formación de placa en plazos experimentales razonables.1]
Los datos experimentales derivados de estos modelos arrojaron dos cuantificaciones distintas y altamente significativas de la progresión de la enfermedad, separando maravillosamente el riesgo en dos componentes: el multiplicador de riesgo intrínseco (la penalización genética de ser humano) y el multiplicador de riesgo extrínseco (la penalización dietética de consumir carne roja).
El riesgo intrínseco (la penalización humana de referencia)
En la primera fase del experimento, controlada meticulosamente, los investigadores alimentaron al grupo de control de tipo salvaje Cmahratones ^+/+ y los de tipo humano Cmahratones knockout `-/-` con una dieta rica en grasas idéntica y altamente controlada que carecía por completo de todos los ácidos siálicos (una dieta libre de Sias).1Los resultados fueron impactantes: incluso en la ausencia absoluta y completa de Neu5Gc en la dieta, el similar al humano CmahLos ratones ^-/- experimentaron un aumento altamente significativo de 1.9 veces en la aterogénesis en comparación directa con los controles de tipo salvaje.1]
Este casi derramamiento de la formación de placa en un entorno controlado aisló el costo biológico intrínseco de la mutación del CMAH.1Un extenso análisis histológico y bioquímico reveló que la pérdida del gen alteró fundamentalmente la fisiología de referencia del organismo. El CmahLos ratones con deficiencia de ^-/- mostraron una expresión muy elevada de citoquinas en los macrófagos, lo que hace que sus glóbulos blancos sean inherentemente hiperactivos, hipersensibles y propensos a reacciones inflamatorias excesivas incluso sin un estímulo antigénico específico.1Además, la mutación indujo directamente un incremento hiperglucemia y una fuerte tendencia metabólica hacia la diabetes, elevando significativamente su HOMA-IR (Modelo de Evaluación Homeostática para Resistencia a la insulina) calificaciones.1] Esta disfunción sistémica intrínseca y de referencia explica elegantemente por qué incluso los vegetarianos y veganos humanos estrictos —quienes consumen absolutamente cero carne roja y a menudo carecen de factores de riesgo tradicionales como el colesterol alto— siguen siendo significativamente más propensos a infartos cardíacos inexplicables y golpes que los chimpancés cautivos con dietas pobres.1,2Estamos genéticamente programados para una mayor inflamación.
El riesgo extrínseco (la penalización por la carne roja)
En la segunda fase crítica del estudio, los investigadores buscaron replicar el mecanismo completo y compuesto del consumo humano de carne roja y la xenosialitis. Primero inmunizaron al humanoide CmahRatones ^-/- con antígenos especializados que portan Neu5Gc (utilizando adyuvante completo de Freund) para generar anticuerpos circulantes anti-Neu5Gc con maduración de afinidad, imitando perfectamente el perfil inmunitario humano desarrollado después del destete.1Posteriormente, estos ratones inmunizados y humanizados fueron alimentados con una dieta alta en grasas específicamente enriquecida con altos niveles de Neu5Gc (imitando una dieta abundante y sostenida de carne roja).1]
Los resultados patológicos fueron dramáticos e inequívocos. Los ratones inmunizados y alimentados con Neu5Gc sufrieron un aumento masivo de 2,4 veces en la gravedad de la aterosclerosis en comparación con los ratones de control alimentados con una dieta rica en Neu5Ac o una dieta alta en grasas completamente libre de sialos.1Se realizó una cuantificación rigurosa de la aterosclerosis aórtica: los ratones fueron eutanasiados, perfundidos y sus aortas disecadas y extendidas. La tinción con Sudán IV para medir la carga lipídica total, junto con crioicciones seriadas del seno aórtico teñidas con el tricrómico de Masson, reveló lesiones sustancialmente más avanzadas lesiones, áreas de núcleos necróticos altamente expansivas y colágeno patológico denso fibra declaración1]
De manera crucial, esta agresiva aceleración de 2.4 veces en la formación de placa no pudo explicarse por cambios posteriores en los niveles de lipoproteínas en sangre, colesterol total parámetros, o glucosa métricas.[1Los lípidos en sangre se mantuvieron prácticamente idénticos entre las cohortes experimentales; la masiva destrucción cardiovascular fue impulsada única y explícitamente por la destrucción inflamatoria localizada y mediada por anticuerpos del endotelio: la manifestación pura y sin adulterar de la xenosialitis.1]
Correlaciones clínicas y patologías sistémicas más amplias
La naturaleza insidiosa de la integración de Neu5Gc y la xenosialitis subsiguiente se extiende mucho más allá de los parámetros microscópicos de modelos de ratón aislados; se manifiesta ampliamente en fenómenos clínicos observables y contribuye a un amplio espectro de patologías sistémicas humanas. El mecanismo no se aisla en la mayor arterias coronarias pero afecta a todo el árbol vascular.
Indicadores diagnósticos: Signo de Frank y degradación microvascular
La naturaleza sistémica y omnipresente del daño endotelial causado por la xenosialitis puede verse reflejada en lechos microvasculares externos y altamente visibles. Clínicamente, la presencia de un pliegue diagonal en el lóbulo de la oreja —conocido epónimamente en la literatura médica como el signo de Frank— se ha establecido firme y repetidamente como un predictor independiente de enfermedad de las arterias coronarias y enfermedad vascular periférica.25,26] Esta correlación se mantiene completamente al margen de los factores de riesgo comúnmente conocidos como la hipertensión, la diabetes, la hiperlipidemia y el tabaquismo. [25,26]
Se plantea fuertemente la hipótesis de que la etiología subyacente del signo de Frank es un proceso paralelo de enfermedad microvascular sistémica y el debilitamiento acelerado y relacionado con la edad de elastina y fibras de colágeno que ocurren simultáneamente tanto en los lechos vasculares del lóbulo de la oreja como en las arterias coronarias.25,26Dada la amplia distribución sistémica de Neu5Gc en el glucocáliz humano, particularmente en la microvasculatura densa, la inflamación crónica y de bajo grado de la xenosialitis probablemente acelera este mecanismo preciso de degradación microvascular.5La formación continua de inmunocomplejos y el depósito de complemento degradan la delicada relación colágeno-elastina, lo que proporciona un vínculo bioquímico unificador y altamente plausible para este marcador diagnóstico visible y macroscópico.25,26]
Anticuerpos circulantes y vasculitis sistémica aguda
El potencial patógeno de los anticuerpos anti-Neu5Gc se evidencia aún más en enfermedades vasculares humanas agudas y devastadoras. Los títulos elevados de anticuerpos anti-Neu5Gc se observan de manera prominente y constante en la enfermedad de Kawasaki, una vasculitis sistémica infantil aguda, febril y a menudo grave que afecta principalmente a las arterias coronarias.24Cabe destacar que se detectan niveles más altos de anticuerpos circulantes en pacientes que presentan arterias coronarias morfológicamente normales en comparación con aquellos que sufren complicaciones graves en etapa tardía, como aneurismas masivos o coronarias dilatadas.24] Esta correlación aparentemente inversa sugiere una patogenia consumptiva: durante las fases inflamatorias agudas y masivas, grandes volúmenes de anticuerpos anti-Neu5Gc circulantes pueden consumirse rápidamente, uniéndose intensamente y secuestrándose en los sitios de daño vascular activo en las paredes coronarias. Esto reduce efectivamente el título circulante mensurable en la extracción de sangre mientras los anticuerpos impulsan activamente la patología en lo profundo de la pared arterial.[24]
Además, se han identificado directamente niveles elevados de anticuerpos de la clase IgA dirigidos específicamente contra antígenos dietéticos en el suero de sujetos con ateroesclerosis grave en comparación con controles sanos altamente seleccionados.27Este hallazgo subraya el vínculo íntimo e inseparable entre los antígenos dietéticos derivados del intestino, la hipersensibilidad inmunitaria sistémica y el resultado placa arterial carga.27El mecanismo no se limita a las enfermedades cardiovasculares; la incorporación de Neu5Gc también está fuertemente implicada en la biología del cáncer. Debido a que el Neu5Gc se acumula preferentemente en los tejidos malignos debido a las altas tasas de crecimiento tumoral, al aumento de las tasas de micropinocitosis y a la regulación al alza inducida por la hipoxia del transportador sialina, la xenosialitis proporciona un microambiente tumoral inflamatorio crónico que promueve directamente la carcinogénesis., angiogénesis, y metástasis.8,22]
La inminente amenaza de la reactividad cruzada viral
Un área de estudio emergente y sumamente crítica involucra la interacción del paradigma de la xenosialitis preexistente con infecciones virales agudas y graves. Cuando los humanos generan respuestas de anticuerpos masivas y desesperadas contra patógenos virales con envoltura (como el SARS-CoV-2 o la Influenza A), los anticuerpos antivirales neutralizantes resultantes pueden exacerbar inadvertidamente la enfermedad vascular subyacente.15Debido a que los virus con envoltura utilizan la propia maquinaria de glicosilación celular del huésped para sintetizar sus envolturas virales, los viriones recién formados se cubren con los ácidos siálicos que la célula huésped esté expresando.15] En un humano que consume carne roja, estas envolturas virales estarán impregnadas de Neu5Gc.[15]
En consecuencia, la enorme ola de anticuerpos antivirales neutralizantes producida durante la infección puede reaccionar de manera cruzada e indiscriminada con epítopos xenosialilados (que contienen Neu5Gc) dispersos en los propios tejidos endoteliales sanos del huésped.15] Esta masiva reactividad cruzada de anticuerpos sistémicos tiene el potencial de potenciar enormemente el estado preexistente de xenosialitis.15] La tormenta hiperinflamatoria resultante provoca coagulopatías diseminadas graves, tormentas de citocinas fatales y un daño endotelial profundo y generalizado.[15Esta hipótesis explica elegantemente por qué la salud cardiovascular basal y los hábitos dietéticos son determinantes tan profundos y dominantes de la mortalidad durante los síndromes respiratorios virales agudos, ya que la infección viral esencialmente enciende el polvorín latente de la xenosialitis inducida por la dieta.15]
Intervenciones terapéuticas y futuros horizontes científicos
Comprender los intrincados mecanismos de la integración de Neu5Gc no solo resuelve un enorme enigma evolutivo y epidemiológico, sino que también abre vías terapéuticas altamente novedosas y aplicables. Estas intervenciones tienen como objetivo mitigar activamente el riesgo cardiovascular más allá del paradigma actual de lo tradicional estatinas terapia, inhibición plaquetaria y presión arterial gestión.
Intervenciones dietéticas con ácido siálico e inhibición competitiva
La intervención más inmediata y biológicamente sólida es la modulación directa del perfil de ácido siálico en la dieta. Los datos experimentales demuestran inequívocamente que intervenir en la vía bioquímica puede detener rápidamente o incluso revertir la aceleración aterosclerótica.4] En el fuertemente validado Cmahmodelo de ratón similar al humano, el simple hecho de cambiar a los sujetos de una dieta rica en grasas y Neu5Gc a una dieta rica en grasas libre de Neu5Gc protegió activamente contra la aterogénesis acelerada.4]
Sorprendentemente, añadir un exceso masivo de cinco veces de Neu5Ac (el ácido siálico humano endógeno y seguro) a una dieta alta en grasas compitió eficazmente con el peligroso Neu5Gc por la captación y utilización celular, mitigando de manera efectiva el riesgo inflamatorio.4Además, una dieta enriquecida con Neu5Ac protegió intrínsecamente contra la aterosclerosis en Ldlrratones ^-/- incluso en la ausencia absoluta de Neu5Gc en la dieta, siempre que el huésped poseyera el similar al humano Cmah-antecedente genético nulo, lo que sugiere que inundar el sistema con el azúcar “correcto” estabiliza activamente el endotelio humano.4]
Las fuentes de Neu5Ac altamente concentrado y biodisponible se están investigando activamente en la actualidad. Collocalia los extractos mucoides, comúnmente conocidos como nido de pájaro comestible, son extraordinariamente ricos en Neu5Ac natural.4Los estudios de digestión bioquímica muestran que una preparación culinaria adecuada, específicamente el control de la temperatura de cocción a fuego lento, maximiza la descomposición de los glicopéptidos de alto peso molecular dentro del nido en fragmentos libres de Neu5Ac de bajo peso molecular y alta capacidad de absorción.4Esto optimiza su biodisponibilidad, permitiéndole ingresar al torrente sanguíneo en altas concentraciones para actuar como un inhibidor competitivo contra el Neu5Gc de la dieta.4]
Ingeniería de microbiomas y escisión enzimática industrial
Un segundo horizonte terapéutico, altamente innovador, implica la manipulación directa del suministro de alimentos utilizando los mismos mecanismos bioquímicos desarrollados por el microbioma intestinal. El reciente descubrimiento de sialidasas bacterianas específicas (derivadas de Bacteroidales y Clostridiales) que exhiben una preferencia enzimática abrumadora y altamente específica por escindir Neu5Gc en lugar de Neu5Ac presenta una oportunidad industrial y médica masiva.17]
Estas potentes enzimas, capaces de liberar eficientemente el Neu5Gc unido a partir de glicoproteínas complejas de la carne roja, podrían utilizarse en el procesamiento industrial de productos cárnicos antes de su venta al público.17Al pretratar la carne roja de mamíferos con estas sialidasas bacterianas recombinantes específicas, la carne pudo ser “despojada” eficazmente de Neu5Gc unido.17Debido a que el Neu5Gc libre y no unido es mal absorbido por el intestino y es eliminado rápida y de forma segura por el sistema renal a través de la orina, convertir el Neu5Gc peligroso y unido en Neu5Gc libre e inofensivo directamente en el matriz alimentaria podría reducir drásticamente el riesgo de enfermedades inflamatorias.11,16Este enfoque cortaría eficazmente la cadena bioquímica que conduce a la xenosialitis sin requerir la abstinencia dietética total de carne roja a nivel poblacional.17,20]
Conclusión
La profunda intersección de la biología evolutiva, la mecánica de la glicosilación intracelular, la inmunología y los hábitos dietéticos modernos proporciona una explicación exhaustiva y molecularmente precisa de la propensión exclusivamente humana a las enfermedades cardiovasculares. El sistema cardiovascular humano opera bajo una penalización genética permanente e intrínseca: el legado indeleble de la pseudogenización de CMAH mediada por elementos Alu que ocurrió hace millones de años. Si bien esta drástica mutación probablemente salvó a nuestros ancestros homininos de una extinción parasitaria catastrófica impulsada por la malaria, dejó el glicocálix del humano moderno permanentemente alterado y altamente vulnerable.
El consumo regular de carne roja de mamífero introduce cantidades masivas y antinaturales del ácido siálico “perdido”, Neu5Gc, directamente en el tracto gastrointestinal humano. Allí, las sialidasas bacterianas especializadas liberan la molécula, permitiendo que sea absorbida. A través de un trágico caso de mimetismo molecular, la maquinaria celular humana incorpora indiscriminadamente este glicano extraño a través del transportador sialina, presentándolo covalentemente en la superficie luminal del endotelio vascular. Preparado por la exposición dietética en la vida temprana y la continua captura molecular por patógenos comensales como el no tipificable Haemophilus influenzae, el sistema inmunitario humano reconoce el endotelio alterado como una amenaza extraña. La incesante y prolongada descarga de anticuerpos IgG e IgA policlonales desencadena el depósito del complemento clásico, la expresión masiva de selectinas, la extravasación de monocitos y la formación continua y latente de placa.
Este mecanismo ampliamente validado, denominado «xenosialitis», explica de manera magnífica y completa el 15% de los casos clínicos de aterosclerosis que se presentan en pacientes que carecen por completo de los factores de riesgo tradicionales. Explica a la perfección la enorme aceleración de 2,4 veces en la aterogénesis observada en modelos animales controlados tras el consumo de carne roja, y aclara por qué los chimpancés —nuestros parientes evolutivos más cercanos con perfiles lipídicos idénticos— siguen siendo inmunes a la aterosclerosis coronaria. De cara al futuro, las intervenciones enfocadas en la suplementación competitiva con Neu5Ac y la escisión enzimática industrial de Neu5Gc de los alimentos ofrecen la promesa sin precedentes de anular esta antigua compensación evolutiva, alterando fundamentalmente el panorama de la medicina preventiva cardiovascular y redefiniendo nuestra comprensión de la patología inducida por la dieta.
Referencias
- Kawanishi K, Dhar C, Do R, Varki N, Gordts PLSM, Varki A. Human species-specific loss of CMP-N-acetylneuraminic acid hydroxylase enhances atherosclerosis via intrinsic and extrinsic mechanisms. Proc Natl Acad Sci U S A. 2019;116(32):16036-16045. doi:10.1073/pnas.1902902116
- Baldessari A, Snyder J, Ahrens J, Murnane R. Fatal myocardial fibrosis in an aged chimpanzee (Pan troglodytes).
- Banda K, Gregg CJ, Chow R, Varki NM, Varki A. Metabolism of vertebrate amino sugars with N-glycolyl groups: mechanisms underlying gastrointestinal incorporation of the non-human sialic acid xeno-autoantigen N-glycolylneuraminic acid.
- Kawanishi K, Coker JK, Grunddal KV, et al. Dietary Neu5Ac Intervention Protects Against Atherosclerosis Associated With Human-Like Neu5Gc Loss-Brief Report.
- Dhar C, Sasmal A, Varki A. From “Serum Sickness” to “Xenosialitis”: Past, Present, and Future Significance of the Non-human Sialic Acid Neu5Gc.
- Lewis AL, Chen X, Schnaar RL, Varki A. Sialic Acids and Other Nonulosonic Acids. In: Varki A, Cummings RD, Esko JD, et al., eds.
- Varki A. Sialic acids in human health and disease.
- Altman MO, Gagneux P. Absence of Neu5Gc and Presence of Anti-Neu5Gc Antibodies in Humans-An Evolutionary Perspective. Front Immunol. 2019;10:789. Published 2019 Apr 30. doi:10.3389/fimmu.2019.00789
- Varki A. Colloquium paper: uniquely human evolution of sialic acid genetics and biology. Proc Natl Acad Sci U S A. 2010;107 Suppl 2(Suppl 2):8939-8946. doi:10.1073/pnas.0914634107
- Padler-Karavani V, Yu H, Cao H, et al. Diversity in specificity, abundance, and composition of anti-Neu5Gc antibodies in normal humans: potential implications for disease. Glycobiology. 2008;18(10):818-830. doi:10.1093/glycob/cwn072
- Bardor M, Nguyen DH, Diaz S, Varki A. Mechanism of uptake and incorporation of the non-human sialic acid N-glycolylneuraminic acid into human cells. J Biol Chem. 2005;280(6):4228-4237. doi:10.1074/jbc.M412040200
- Varki A. Multiple changes in sialic acid biology during human evolution. Glycoconj J. 2009;26(3):231-245. doi:10.1007/s10719-008-9183-z
- Dubois L, Pietrancosta N, Cabaye A, et al. Amino Acids Bearing Aromatic or Heteroaromatic Substituents as a New Class of Ligands for the Lysosomal Sialic Acid Transporter Sialin. J Med Chem. 2020;63(15):8231-8249. doi:10.1021/acs.jmedchem.9b02119
- Apicella MA. Nontypeable Haemophilus influenzae: the role of N-acetyl-5-neuraminic acid in biology. Front Cell Infect Microbiol. 2012;2:19. Published 2012 Mar 13. doi:10.3389/fcimb.2012.00019
- Taylor RE, Gregg CJ, Padler-Karavani V, et al. Novel mechanism for the generation of human xeno-autoantibodies against the nonhuman sialic acid N-glycolylneuraminic acid. J Exp Med. 2010;207(8):1637-1646. doi:10.1084/jem.20100575
- Verheijen FW, Verbeek E, Aula N, et al. A new gene, encoding an anion transporter, is mutated in sialic acid storage diseases. Nat Genet. 1999;23(4):462-465. doi:10.1038/70585
- Zaramela LS, Martino C, Alisson-Silva F, et al. Gut bacteria responding to dietary change encode sialidases that exhibit preference for red meat-associated carbohydrates. Nat Microbiol. 2019;4(12):2082-2089. doi:10.1038/s41564-019-0564-9
- Padler-Karavani V, Hurtado-Ziola N, Pu M, et al. Human xeno-autoantibodies against a non-human sialic acid serve as novel serum biomarkers and immunotherapeutics in cancer. Cancer Res. 2011;71(9):3352-3363. doi:10.1158/0008-5472.CAN-10-4102
- Vimr ER, Kalivoda KA, Deszo EL, Steenbergen SM. Diversity of microbial sialic acid metabolism. Microbiol Mol Biol Rev. 2004;68(1):132-153. doi:10.1128/MMBR.68.1.132-153.2004
- Tailford LE, Crost EH, Kavanaugh D, Juge N. Mucin glycan foraging in the human gut microbiome. Front Genet. 2015;6:81. Published 2015 Mar 19. doi:10.3389/fgene.2015.00081
- Samraj AN, Pearce OM, Läubli H, et al. A red meat-derived glycan promotes inflammation and cancer progression. Proc Natl Acad Sci U S A. 2015;112(2):542-547. doi:10.1073/pnas.1417508112
- Hull SC, Mszar R, Ostfeld RJ, et al. Diet and Prevention of Cardiovascular Disease and Cancer: JACC: CardioOncology State-of-the-Art Review. JACC CardioOncol. 2025;7(6):649-667. doi:10.1016/j.jaccao.2025.07.008
- Evrengül H, Dursunoğlu D, Kaftan A, et al. Bilateral diagonal earlobe crease and coronary artery disease: a significant association. Dermatology. 2004;209(4):271-275. doi:10.1159/000080847
- Padler-Karavani V, Tremoulet AH, Yu H, Chen X, Burns JC, Varki A. A simple method for assessment of human anti-Neu5Gc antibodies applied to Kawasaki disease. PLoS One. 2013;8(3):e58443. doi:10.1371/journal.pone.0058443
- Shmilovich H, Cheng VY, Rajani R, et al. Relation of diagonal ear lobe crease to the presence, extent, and severity of coronary artery disease determined by coronary computed tomography angiography. Am J Cardiol. 2012;109(9):1283-1287. doi:10.1016/j.amjcard.2011.12.024
- Gakovic B, Neskovic SA, Vranic I, et al. The relationship of diagonal earlobe crease (Frank’s sign) and obstructive coronary artery disease in patients undergoing coronary angiography. Wien Klin Wochenschr. 2023;135(23-24):667-673. doi:10.1007/s00508-023-02297-y
- Muscari A, Volta U, Bonazzi C, et al. Association of serum IgA antibodies to milk antigens with severe atherosclerosis. Atherosclerosis. 1989;77(2-3):251-256. doi:10.1016/0021-9150(89)90088-9

