Maladie cardiovasculaire (les maladies cardiovasculaires) restent le défi de santé publique le plus redoutable de l'ère moderne ; elles constituent la première cause de mortalité dans le monde et représentent environ un tiers de l'ensemble des décès à l'échelle mondiale.[1] L'interprétation canonique de athérosclérose— le rétrécissement et le durcissement progressifs et insidieux des vaisseaux artériels dus à des dépôts fibro-adipeux plaque dépôt — attribue la pathogenèse à un ensemble de facteurs bien établis, pour la plupart modifiables facteurs de risque. Parmi ces facteurs déterminants classiques, on trouve les facteurs systémiques hypertension, dyslipidémie (en particulier les particules de faible densité) lipoprotéine cholestérol), de type 2 diabète mélitus, obésité, la sédentarité, le vieillissement et le tabagisme.[1] Cependant, un sentiment persistant et profondément facteur de confusion Ce paradoxe épidémiologique remet depuis longtemps en cause le caractère exhaustif absolu de ce paradigme traditionnel : environ 15% des premiers épisodes de maladies cardiovasculaires, y compris les cas catastrophiques infarctus du myocarde et les accidents vasculaires cérébraux surviennent chez des patients qui ne présentent absolument aucun de ces facteurs de risque reconnus.[1]
Cette anomalie clinique profonde est encore compliquée et mise en lumière par le domaine de la cardiologie comparative interespèces. Lorsque l'on observe l'ensemble du règne des mammifères, on constate que les thromboses coronariennes et les infarctus du myocarde d'origine naturelle, provoqués par l'athéromatose, plaque de rupture sont pratiquement inexistantes chez les espèces autres que l'espèce humaine.[1] Cette résistance se vérifie de manière remarquable même chez nos plus proches parents évolutifs, les hominidés non humains. Les chimpanzés en captivité mènent souvent un mode de vie sédentaire similaire à celui des humains et présentent des troubles physiologiques étonnamment analogues, notamment une hyperlipidémie sévère, un vieillissement précoce et une hypertension artérielle généralisée.[1] Pourtant, bien qu’ils possèdent un sang présentant, à l’instar de celui des humains, un risque élevé de maladies cardiovasculaires profils lipidiques et malgré la présence de signes d'athérosclérose légère à un stade précoce, ces primates sont rarement victimes d'événements cardiovasculaires athéroscléreux en phase terminale.[2] En cas de catastrophe accidents cardiaques bien qu’elles surviennent dans les populations de chimpanzés, des analyses post-mortem rigoureuses révèlent que leur crises cardiaques sont en grande partie motivées par un phénomène qui reste encore inexpliqué fibrose myocardique interstitielle—une cicatrisation diffuse du muscle cardiaque—plutôt que la rupture classique d’une plaque athéromateuse et la suite thrombose observées chez des patients humains.[2] Par ailleurs, alors que les fortes viande rouge Si la consommation est un facteur épidémiologique universellement reconnu qui amplifie le risque de maladies cardiovasculaires chez les populations humaines, ce régime alimentaire précis ne provoque pas athérogenèse chez d'autres mammifères carnivores ou omnivores.[2]
Cette divergence profonde indique inévitablement l'existence d'une prédisposition génétique intrinsèque à l'athérosclérose, propre à l'espèce humaine.[1] Le cœur de cette vulnérabilité unique ne réside pas strictement dans le métabolisme lipidique, la contrainte de cisaillement hémodynamique ou les variables comportementales à elles seules, mais dans une anomalie génétique ancestrale liée à la biologie fondamentale de la surface cellulaire glycanes. Plus précisément, la vulnérabilité cardiovasculaire chez l'être humain est indissociable d'une perte, au cours de l'évolution, de la capacité à synthétiser Acide N-glycolylneuraminique (Neu5Gc), un acide sialique présent partout chez les mammifères.[1] Malgré cette grave déficience génétique, la consommation humaine de viande rouge riche en Neu5Gc entraîne l'incorporation métabolique de ce glycan non humain directement dans les tissus humains, notamment dans le système vasculaire endothélium.[3,4] La reconnaissance immunologique ultérieure de ce sucre incorporé en tant que “xéno-auto-antigène” déclenche une cascade inflammatoire chronique et latente appelée “xénosialite.”[5]
Ce rapport de recherche exhaustif met en lumière les mécanismes évolutifs, biochimiques et immunologiques extrêmement complexes qui sous-tendent l'hypothèse de la xénosialite. En étudiant la délétion génomique de la Gène CMAH, la digestion complexe des aliments, régulée par le microbiome Neu5Gc, le détournement moléculaire des voies de glycosylation intracellulaires humaines et la destruction endothéliale qui en résulte, médiée par des anticorps polyclonaux, cette analyse permet de comprendre de manière exhaustive pourquoi les êtres humains sont particulièrement vulnérables à l'athérosclérose liée à la consommation de viande rouge, et comment ce mécanisme augmente de manière quantifiable le risque cardiovasculaire tout au long de la vie.
Le paradigme évolutionniste : la mutation du gène CMAH et les origines de l'humanité
Les principes fondamentaux de la biologie des acides sialiques
Pour bien saisir l'ampleur et les conséquences d'une anomalie génétique chez l'être humain, il faut d'abord déterminer le rôle physiologique et structurel de acides sialiques dans le domaine de la biologie des vertébrés. La surface de toutes les cellules vertébrées est recouverte d’un réseau dense, complexe et hautement régulé de chaînes glucidiques, qui sont principalement fixées aux protéines membranaires intégrales protéines et les lipides de surface pour former le glycocalyx.[6,7] La plupart des protéines sécrétées solubles circulant dans le système circulatoire humain sont également marquées de la même manière par ces glycanes spécialisés.[6,7] Les acides sialiques constituent une famille variée de monosaccharides fortement modifiés, dont le squelette est composé de neuf atomes de carbone ; on les trouve généralement aux extrémités terminales, les plus externes, de ces chaînes de glycanes.[6,7]
En raison de leur localisation distale sur les glycoprotéines et les glycolipides, associée à leur forte charge électronégative à pH physiologique, les acides sialiques jouent un rôle indispensable et multiforme dans la médiation de l'adhésion intercellulaire, la modulation des interactions récepteur-ligand et la stabilisation de la glycocalyx endothélial barrière, et en régulant la reconnaissance immunitaire de soi par le biais de lectines spécifiques se liant à l'acide sialique (Siglecs).[6,8]
Chez la grande majorité des espèces de mammifères, et même chez la plupart des vertébrés terrestres, les deux formes prédominantes d'acide sialique sont l'acide N-acétylneuraminique (Neu5Ac) et son dérivé hydroxylé direct, l'acide N-glycolylneuraminique (Neu5Gc).[6,7] Ces deux molécules sont pratiquement identiques sur le plan structurel ; elles ne diffèrent que par la présence d'un seul atome d'oxygène.[5] La transformation biochimique du précurseur Neu5Ac en son dérivé Neu5Gc est catalysée exclusivement par une seule enzyme hautement spécifique : la cytidine monophosphate-N-acétylneuraminique hydroxylase (CMAH).[1,3] Cette enzyme essentielle agit sur le donneur de nucléotide-sucre CMP-Neu5Ac au sein du cytosol cellulaire, facilitant une réaction mono-oxygénase qui ajoute un groupe hydroxyle pour former le CMP-Neu5Gc.[6,7] Le CMP-Neu5Ac et le CMP-Neu5Gc sont ensuite transportés du cytosol vers le lumens de l'appareil de Golgi, où ils servent de principaux donneurs de nucléotides et de sucres destinés à être ajoutés aux molécules nouvellement synthétisées glycoconjugués.[6,7] Par conséquent, les tissus normaux des mammifères présentent, à leur surface cellulaire, une mosaïque riche, entremêlée et hautement fonctionnelle composée à la fois de Neu5Ac et de Neu5Gc.[6,7]
| Fonctionnalité | Acide N-acétylneuraminique (Neu5Ac) | Acide N-glycolylneuraminique (Neu5Gc) |
| Structure porteuse | monosaccharide à 9 atomes de carbone | monosaccharide à 9 atomes de carbone |
| Différence chimique | Possède un groupe N-acétyle | Possède un groupe N-glycolyle (ajout d'un atome d'oxygène) |
| Origine biosynthétique | Synthétisé de novo chez tous les vertébrés | Synthétisé à partir du Neu5Ac par l'enzyme CMAH |
| Situation chez l'homme | L'acide sialique endogène prédominant chez l'être humain | Absent sur le plan génétique ; considéré comme “ étranger ” xéno-antigène |
| Répartition des mammifères | Omniprésent chez toutes les espèces de mammifères | Omniprésent chez les mammifères non humains ; absent chez l'être humain |
L'événement de pseudogénisation médiée par l'Alu
Les êtres humains constituent toutefois une anomalie flagrante et lourde de conséquences au sein de la lignée des mammifères. Les tissus humains normaux et sains sont génétiquement et fondamentalement incapables de synthétiser le Neu5Gc.[5] Cette troncature biochimique ne résulte pas d'une suppression régulatrice, mais est la conséquence directe d'une mutation irréversible, spécifique à l'espèce, au sein même du gène CMAH.[1,3]
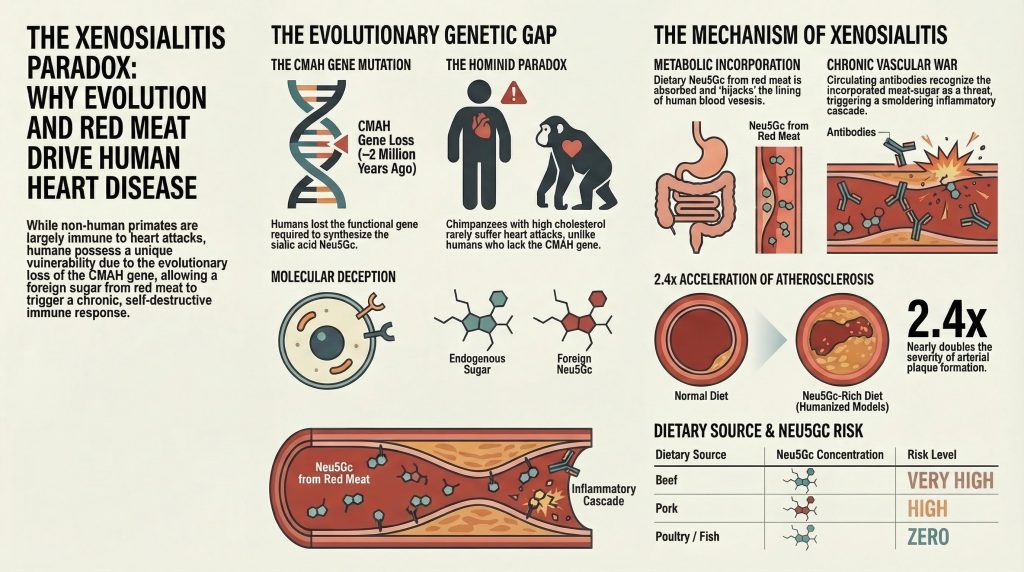
Les estimations paléogénomiques et les analyses phylogénétiques comparatives indiquent qu’il y a environ 2 à 3 millions d’années — une période correspondant à l’apparition du genre Homo de nos ancêtres hominidés, un événement génomique décisif s’est produit.[1,9,12] Un Élément transposable Alu, un type de “ gène sauteur ” courant dans les génomes des primates, s'est inséré dans le locus génétique CMAH. Cette insertion a entraîné une délétion catastrophique avec décalage du cadre de lecture d'un exon essentiel de 92 paires de bases au sein du gène CMAH, ce qui a provoqué l'apparition d'un codon d'arrêt prématuré et la perte totale pseudogénisation (inactivation complète) du locus.[9,12] La réaction enzymatique menant du CMP-Neu5Ac au CMP-Neu5Gc étant strictement unidirectionnelle et dépendant entièrement de la CMAH, la perte de cette seule enzyme a définitivement interrompu la voie de biosynthèse.[1,3] En conséquence directe, les humains modernes ne produisent que le précurseur, le Neu5Ac, ce qui prive totalement la surface de leurs cellules de Neu5Gc endogène et modifie radicalement le paysage biochimique de l'organisme humain.[1,3]
Pressions de sélection évolutive : agents pathogènes et isolement reproductif
La fixation d’une mutation entraînant une perte de fonction dans un gène responsable de la synthèse d’une molécule primaire et omniprésente à la surface cellulaire constitue un événement évolutif extraordinaire. Une altération aussi radicale et soudaine du glycocalyx de l'hôte a dû être induite par des pressions de sélection évolutive d'une intensité phénoménale, car il est hautement improbable que la dérive génétique stochastique à elle seule puisse expliquer la fixation complète, à l'échelle de toute la population, d'un changement biochimique aussi fondamental.[12] La biologie évolutive actuelle propose un modèle multifactoriel expliquant la fixation rapide de l'allèle nul CMAH au sein de la population ancestrale des hominidés.
L'hypothèse la plus courante, et celle qui a fait l'objet des recherches les plus approfondies, repose sur une course à l'armement évolutive acharnée entre l'hôte et l'agent pathogène, impliquant plus précisément les ancêtres du parasite responsable du paludisme Plasmodium parasites.[9,12] Les acides sialiques présents à la surface des cellules mammifères constituent les principaux récepteurs d'ancrage et motifs de reconnaissance pour divers agents pathogènes viraux, bactériens et parasitaires.[6,7] D'après les signatures génomiques de la sélection, il est hautement probable que les hominidés ancestraux aient été décimés par une souche très virulente de paludisme chez les “ hominidés non humains ” (NHH), qui se liait de préférence aux érythrocytes riches en Neu5Gc pour pénétrer dans les cellules.[9,12] La perte du gène CMAH induite par les éléments Alu, bien que potentiellement néfaste à d’autres égards, a conféré un avantage de survie soudain et vital aux rares individus porteurs de cette mutation. En privant efficacement l’hôte du récepteur de surface cellulaire préféré de l’agent pathogène, les hominidés déficients en CMAH ont pu échapper au fléau paludique qui sévissait, ce qui a conduit à un balayage sélectif massif qui a fixé la mutation nulle au sein de la population survivante.[9,12] Cette victoire évolutive n'a toutefois été que temporaire à l'échelle du temps géologique. Plasmodium falciparum—l’agent extrêmement mortel responsable du paludisme malin chez l’homme moderne—a fini par développer la capacité de se lier de manière préférentielle aux érythrocytes riches en Neu5Ac, désormais omniprésents et spécifiques à l’être humain, rétablissant ainsi la dynamique hôte-agent pathogène.[6,7,12]
Une hypothèse secondaire, mais tout aussi convaincante et complémentaire, fait intervenir l'isolement reproductif et la “ sélection catastrophique ” induite par le système immunitaire féminin.[12] Les spermatozoïdes des mammifères sont fortement sialylés et utilisent des glycanes de surface complexes pour améliorer leur survie, masquer les protéines immunogènes et optimiser leur fonctionnement tout au long de leur périlleux parcours à travers l'appareil reproducteur féminin jusqu'au site de fécondation dans l'oviducte.[12] Une hominidène porteuse de la mutation rare CMAH-null développerait naturellement des anticorps anti-Neu5Gc circulants en cas d’exposition postnatale à du Neu5Gc d’origine environnementale ou alimentaire, car son système immunitaire reconnaîtrait cette molécule comme étrangère.[10,12,18] Si cette femelle mutante s'accouplait par la suite avec un mâle de type sauvage (CMAH-positif), ses anticorps circulants cibleraient et neutraliseraient de manière agressive les spermatozoïdes paternels riches en Neu5Gc, ce qui réduirait considérablement son succès reproductif et compromettrait de fait la viabilité du couple.[12] Au fil de milliers de générations, cette sélection immunitaire féminine contre le Neu5Gc paternel aurait créé une barrière reproductive intense et infranchissable entre les populations mutantes et les populations de type sauvage, favorisant la fixation rapide du génotype CMAH-nul et contribuant potentiellement de manière directe au processus de spéciation qui a finalement isolé les ancêtres de l’homme des autres hominidés.[12]
Le déséquilibre alimentaire : digestion et métabolisme microbien des acides sialiques exogènes
La disparition évolutive du gène CMAH fait que le Neu5Gc est, d'un point de vue biochimique, totalement étranger à l'organisme humain moderne.[5] Pourtant, malgré cette grave déficience génétique, l’alimentation moderne — en particulier dans les sociétés occidentalisées — regorge de cette molécule. Le Neu5Gc est présent en forte concentration dans les viandes rouges d’origine mammifère, notamment le bœuf, le porc et l’agneau, qui restent des aliments de base dans le monde entier.[3,8,22] De plus, les produits laitiers issus de ces mammifères contiennent également des quantités mesurables, bien que moindres, de cet acide sialique d'origine non humaine.[8]
Des analyses biochimiques rigoureuses et la chromatographie liquide haute performance ont permis de définir clairement le profil alimentaire de l'exposition au Neu5Gc. Les recherches montrent que la viande de bœuf contient les concentrations les plus élevées de cette molécule, avec environ 30,1 µg/g de Neu5Gc, suivie de près par la viande de porc, avec 25,5 µg/g.[7,8] À l'inverse, les espèces aviaires (telles que la volaille) et divers lignages de poissons se sont séparés de l'arbre phylogénétique des mammifères bien avant l'évolution du gène CMAH, ou l'ont perdu de manière indépendante, et sont donc totalement et naturellement dépourvus de Neu5Gc.[7,8] Cette dichotomie biochimique stricte rend l'exposition alimentaire au Neu5Gc très spécifique à la consommation de viande rouge de mammifères.[7,8]
| Source alimentaire | Classification de la teneur en Neu5Gc | Concentration spécifique en Neu5Gc |
| Bœuf | Très élevé | ~ 30,1 µg/g |
| Viande de porc | Haut | ~ 25,5 µg/g |
| Agneau / Lapin | Haut | Comparable au bœuf/porc |
| Produits laitiers | Modéré | Variable, présente dans les glycoprotéines du lait |
| Volaille (poulet, dinde) | Zéro (absent sur le plan biochimique) | 0,0 µg/g |
| Poissons et fruits de mer | Zéro (absent sur le plan biochimique) | 0,0 µg/g |
Le rôle essentiel du microbiote intestinal
La transformation du Neu5Gc alimentaire, qui passe du statut d’aliment consommé présent dans la lumière gastrique à celui d’entité biochimique absorbée et active au niveau systémique, est étroitement régulée par le microbiome gastro-intestinal de l’hôte. Le Neu5Gc alimentaire n'est généralement pas ingéré sous forme de monosaccharide libre ; il est plutôt consommé principalement sous une forme liée par des liaisons glycosidiques, profondément intégrée dans les glycoprotéines, les mucines et les glycolipides complexes qui composent les tissus mammifères (tels que la mucine sous-maxillaire porcine).[8,17] Cette distinction entre l'acide sialique lié et l'acide sialique libre revêt une importance physiologique capitale. Bien que le Neu5Gc libre, non lié, puisse techniquement être absorbé à travers la barrière intestinale, il est reconnu par l'organisme comme une petite molécule hautement soluble et non utilisable. Par conséquent, le Neu5Gc libre est rapidement éliminé par le système rénal et excrété efficacement dans l'urine, sans provoquer aucune accumulation tissulaire à long terme ni aucune pathologie.[11,16] Seul le Neu5Gc lié à une structure, présent sous forme de réseaux macromoléculaires complexes, subit le processus dangereux d'incorporation métabolique.[11,16,17]
Progrès récents en matière de séquençage métagénomique chez l'homme et chez la souris microbiote intestinal ont révélé que la flore microbienne résidente réagit de manière dynamique et rapide à un régime alimentaire riche en Neu5Gc.[17] Plus précisément, les populations appartenant aux ordres Bactéroïdes et Clostridiales subissent une expansion phénotypique importante lorsqu'ils sont exposés à des facteurs associés à la consommation de viande rouge glucides.[17] Ces clades bactériens spécifiques ont évolué pour exprimer des sialidases bactériennes (neuraminidases) hautement spécialisées, conçues spécifiquement pour cliver les acides sialiques terminaux des mucines des muqueuses de l'hôte et, surtout, des glycoprotéines alimentaires.[17,20,21]
Historiquement, on supposait que les sialidases bactériennes privilégiaient exclusivement le Neu5Ac endogène de l’hôte, car il s’agit du substrat le plus abondant dans l’intestin humain. Cependant, des études structurales approfondies recourant à la cristallographie aux rayons X de pointe ont mis en évidence, au sein de certaines sialidases bactériennes, des configurations d'acides aminés spécifiques et jusqu'alors inobservées, qui confèrent à ces enzymes une préférence de substrat à affinité exceptionnellement élevée pour les glycanes contenant du Neu5Gc.[17] Ces microbes intestinaux spécialisés orchestrent une dynamique complexe d’alimentation croisée au sein du microbiome, dans laquelle ils utilisent la voie métabolique Nan pour cataboliser activement les acides sialiques clivés afin d’en tirer de l’énergie et du carbone.[20,21] Il est intéressant de noter que le catabolisme en aval du Neu5Ac produit de l'acide acétique comme sous-produit, tandis que le métabolisme bactérien du Neu5Gc génère de l'acide glycolique.[20,21] Ces différences au niveau des sous-produits métaboliques peuvent modifier subtilement le pH local et le profil métabolique de l'épithélium colique, contribuant ainsi à l'environnement inflammatoire général.[20,21]
On soupçonne fortement que la libération enzymatique du Neu5Gc par ces sialidases microbiennes, à partir des glycoprotéines massives de la viande, sous forme de fragments oligosaccharidiques plus petits et spécifiques (tels que le GalNGc), constitue la première étape indispensable à l'absorption intestinale et à la distribution systémique ultérieures de ce sucre non humain.[8,17]
Détournement cellulaire : le mécanisme d'incorporation métabolique
Une fois que le Neu5Gc d'origine alimentaire, lié par des liaisons glycosidiques (ou ses intermédiaires oligosaccharidiques libérés par le microbiote), traverse l'épithélium intestinal complexe, il pénètre dans la circulation systémique. Des données montrent qu’après un repas à base de viande rouge, ces xénoglycanes apparaissent dans la circulation sanguine humaine à un niveau d’équilibre qui persiste pendant plusieurs heures, offrant ainsi de nombreuses occasions d’interaction avec les tissus.[11,15,16] Le phénomène par lequel cette molécule alimentaire totalement étrangère s'intègre de manière permanente dans les tissus humains constitue une vulnérabilité fascinante et extrêmement dangereuse de la biochimie humaine. Le problème fondamental réside dans une « supercherie moléculaire » : notre mécanisme de glycosylation intracellulaire, hautement conservé, est tout simplement incapable de faire la distinction entre le précurseur endogène (Neu5Ac) et l’analogue exogène non humain (Neu5Gc).[3,5,11] Ces molécules, qui ne diffèrent que par un seul et minuscule atome d'oxygène, semblent identiques aux enzymes responsables de la construction cellulaire.[3,5]
La voie endocytaire et lysosomale
Les cellules humaines ne disposant d'aucun transporteur membranaire spécifique destiné à l'absorption des acides sialiques libres provenant de l'espace extracellulaire, l'internalisation des glycoconjugués Neu5Gc circulants doit se faire par d'autres voies.[11,13,16] Cette absorption est principalement assurée par l'endocytose en phase liquide et la macropinocytose, des processus au cours desquels la cellule “ boit ” pour ainsi dire le liquide extracellulaire environnant et les substances qui y sont dissoutes.[11,12,16]
Une fois internalisées, ces molécules exogènes sont encapsulées dans des endosomes et acheminées avec soin vers l'environnement hautement acide et dégradatif du lysosome.[11,16] Au sein du lysosome, les sialidases lysosomales d’origine hôte clivent par voie enzymatique les glycoconjugués alimentaires complexes, libérant ainsi des monosaccharides Neu5Gc libres au plus profond de la cellule.[11,16]
Le transporteur lysosomal de l'acide sialique, une protéine appelée sialine (codée par le gène SLC17A5 gène).[11,13,16] La sialine est une protéine transmembranaire hautement conservée dont le rôle physiologique normal consiste à récupérer et à recycler le Neu5Ac endogène de l'hôte provenant de glycoprotéines dégradées dans le lysosome, en les réinjectant dans le cytosol en vue de leur réutilisation.[11,16] Cependant, la sialine n'est pas parfaitement sélective ; elle se lie facilement aux molécules libres de Neu5Gc issues de la viande rouge et les transporte activement dans l'espace cytosolique, franchissant ainsi la dernière barrière interne de la cellule.[11,12,16]
Synthèse de novo et expression endothéliale
Une fois à l’abri dans le cytosol, le Neu5Gc exogène s’intègre dans la voie de synthèse de novo de l’acide sialique de la cellule hôte, déclenchant ainsi les dernières étapes de ce détournement biochimique. La molécule est transformée par la cytidine monophosphate (CMP)-sialate synthase, une enzyme qui active le monosaccharide en y fixant un nucléotide CMP à haute énergie, formant ainsi le complexe donneur CMP-Neu5Gc.[6,7] Ce donneur de nucléotides de sucre activé est ensuite transporté de manière active dans la lumière de l'appareil de Golgi, qui constitue le centre névralgique du tri et de la modification au sein de la cellule.[6,7]
Au sein de l'appareil de Golgi, les glycosyltransférases humaines — ces enzymes qui sont précisément chargées de construire les structures glycaniques complexes et ramifiées sur les protéines et les lipides nouvellement synthétisés — utilisent aveuglément les donneurs abondants de CMP-Neu5Gc comme s'il s'agissait du CMP-Neu5Ac endogène approprié.[3,5,11] Par conséquent, le Neu5Gc est lié de manière covalente et permanente aux glycoprotéines et glycolipides nouvellement synthétisés. Ces molécules nouvellement assemblées et xéno-sialylées sont ensuite acheminées par des vésicules sécrétoires vers la surface cellulaire, où elles s’intègrent à la membrane plasmique.[3,5]
Par le biais de cette voie biochimique complexe, les cellules humaines détournent en quelque sorte un composé alimentaire et transforment, à leur insu, leurs propres surfaces cellulaires en armes. Bien que l’accumulation de Neu5Gc ait été observée dans divers tissus humains, y compris les épithéliums tapissant les organes creux (ce qui explique son lien épidémiologique étroit avec divers carcinomes), elle présente un tropisme profond et hautement sélectif pour l’endothélium vasculaire — la fine paroi interne de tous les vaisseaux sanguins.[5,22] Des analyses immunohistochimiques rigoureuses réalisées sur des échantillons prélevés lors d'autopsies humaines, à l'aide à la fois d'anticorps de poulet anti-Neu5Gc hautement spécifiques et monospécifiques et de sérums humains purifiés par affinité, ont démontré de manière définitive une expression intense de Neu5Gc dans le tissu humain d'apparence normale aorte, dans la microvascularisation dense du côlon et du placenta, et surtout, dans l'endothélium recouvrant directement les plaques athéroscléreuses actives.[5]
La genèse immunologique : stimulation par les commensaux et auto-anticorps xéno-immuns
La présence d’une molécule non humaine liée de manière covalente à des tissus humains constitue un paradoxe immunologique particulièrement dangereux, officiellement qualifié dans la littérature de “ xéno-autoantigène ”.[5] Le Neu5Gc étant biologiquement étranger (“ xéno ”) en raison de notre histoire évolutive, le système immunitaire humain le reconnaît comme étranger, même s’il est physiquement intégré au sein même des motifs moléculaires propres à l’hôte, présents à la surface endothéliale.[5,6]
L'ontogenèse de la réponse immunitaire
Une surveillance immunologique approfondie et des analyses épidémiologiques révèlent un fait surprenant : pratiquement tous les adultes en bonne santé présentent dans leur circulation des anticorps polyclonaux anti-Neu5Gc hautement actifs.[5,6,10] Ces répertoires d’anticorps extrêmement diversifiés comprennent des isotypes d’immunoglobulines G (IgG), IgA et IgM, qui ciblent une grande variété d’épitopes contenant du Neu5Gc que l’on trouve couramment sur les cellules humaines cellules endothéliales.[5,6,10] Il est essentiel de noter que ces anticorps ne sont pas des anticorps “ naturels ” codés par la lignée germinale (tels que ceux qui déterminent le système des groupes sanguins ABO, qui sont présents indépendamment de toute exposition spécifique).[5,10,18] Elles nécessitent en effet une stimulation antigénique postnatale spécifique et subissent une maturation d'affinité classique pour atteindre leur capacité de liaison élevée.[10,18]
Des analyses approfondies du sang de cordon ombilical des nourrissons montrent une absence totale et absolue d'anticorps anti-Neu5Gc (en particulier les IgM) au moment de la naissance.[10,18] Les titres d'anticorps restent indétectables au cours des premiers mois de vie, ce qui contredit fortement l'hypothèse selon laquelle le transfert transplacentaire serait la principale source d'immunité à long terme.[10,18] Cependant, ces titres d'anticorps commencent à augmenter fortement et de manière constante vers l'âge de six mois.[10,18] Ce calendrier précis coïncide parfaitement avec l’introduction des préparations à base de lait de vache, des produits laitiers et du processus général de sevrage vers une alimentation solide, marquant ainsi la toute première exposition systémique du nourrisson au Neu5Gc alimentaire.[8,10,18] Par ailleurs, des études épidémiologiques portant sur des expositions environnementales plus larges ont montré que les enfants élevés dans des exploitations agricoles en activité, qui sont vraisemblablement exposés à des concentrations ambiantes nettement plus élevées d'antigènes d'origine animale, présentent des taux statistiquement plus élevés d'IgG anti-Neu5Gc circulantes que les enfants vivant en milieu urbain et ne provenant pas de milieux agricoles.[8,18]
Amorçage bactérien via Haemophilus influenzae
Une question fondamentale d'ordre mécanistique se pose : comment le système immunitaire humain parvient-il à déclencher une réponse anticorps aussi solide, durable et à affinité mûre contre un simple sucre alimentaire, d'autant plus que le Neu5Gc libre, lorsqu'il est isolé, n'est en soi que faiblement immunogène ?
La réponse réside dans le phénomène insidieux du mimétisme moléculaire microbien et du camouflage bactérien. Alors que la synthèse génétique du Neu5Gc endogène n’a jamais été mise en évidence chez aucun microbe bactérien, viral ou fongique à travers l’arbre de la vie, certains agents pathogènes commensaux de l’homme, hautement adaptés, agissent comme d’efficaces « récupérateurs » moléculaires.[14,21] Non typable Haemophilus influenzae (NTHi), une bactérie commensale omniprésente et spécifique à l’être humain, qui est également un agent pathogène respiratoire opportuniste responsable d’otites moyennes et d’exacerbations respiratoires, possède un transporteur tripartite périplasmique indépendant de l’ATP (TRAP) hautement spécialisé.[14,21] Ce système de transport spécifique élimine efficacement les traces de Neu5Gc d'origine alimentaire présentes dans l'environnement muqueux de l'hôte.[14,21]
Une fois capturé chez l’hôte, le NTHi intègre métaboliquement ce Neu5Gc directement dans ses propres lipooligosaccharides (LOS) de surface cellulaire.[14,19,21] Cette sialylation bactérienne confère à l'organisme un avantage de survie considérable, quasi insurmontable. L'intégration du Neu5Gc dans son biofilm protecteur renforce considérablement la résistance de la bactérie à la destruction médiée par le complément du système immunitaire inné de l'hôte.[14,21] Il y parvient principalement en bloquant la voie classique d’activation du complément, empêchant ainsi activement les anticorps IgM de l’hôte de se lier à la surface bactérienne et de déclencher la lyse.[14,21]
Cependant, ce mécanisme sophistiqué de camouflage bactérien a des conséquences graves et chroniques pour l'hôte humain. La présentation de l'antigène Neu5Gc sur la surface hautement inflammatoire et associée à l'agent pathogène d'une bactérie pathogène agit comme un adjuvant immunologique naturel puissant.[10,14,21] Lorsque le système immunitaire humain déclenche inévitablement une réponse vigoureuse et systémique contre la bactérie NTHi afin d'éliminer l'infection, il génère simultanément un vaste répertoire d'anticorps anti-Neu5Gc à réaction croisée.[10,14,21] Il est désormais largement admis dans le milieu scientifique que cette « sensibilisation » postnatale, induite par des agents pathogènes et agissant en synergie constante avec la consommation quotidienne de viande rouge, fournit le signal hautement inflammatoire nécessaire à la production et au maintien, tout au long de la vie, d'auto-anticorps xéno-spécifiques.[5,10,14,18]
Xénosialite : les mécanismes de l'athérogenèse
La convergence désastreuse entre l'incorporation métabolique (à l'origine de la présence généralisée de l'antigène endothélial) et la sensibilisation microbienne (à l'origine de la présence d'anticorps circulants à haute affinité) aboutit à un état vasculaire chronique et latent de inflammation officiellement appelée “ xénosialite ”.[5] Ce processus pathologique est particulièrement insidieux, car l'antigène est continuellement renouvelé à chaque repas à base de viande rouge consommé tout au long de la vie, ce qui empêche le cycle inflammatoire de trouver une issue biologique.
La physiopathologie précise de la xénosialite, notamment dans le contexte direct d'une accélération de l'athérosclérose, se déroule selon une cascade séquentielle et minutieusement orchestrée de destruction cellulaire :[5]
- Ligation antigène-anticorps : Les anticorps polyclonaux humains anti-Neu5Gc circulants (principalement des isotypes IgG et IgA) scrutent en permanence l’endothélium vasculaire au fur et à mesure que le sang circule dans l’arbre artériel. Lorsqu’ils rencontrent un épitope Neu5Gc incorporé par voie métabolique et présenté sur le glycocalyx endothélial fragile, ces anticorps se lient avec une forte affinité, formant un réseau dense in situ complexe immunitaire directement sur la paroi vasculaire.[5]
- Activation de la cascade du complément : Le regroupement spatial des molécules d’IgG et d’IgA à la surface endothéliale expose leurs régions Fc (fragment cristallisable) à la circulation sanguine. Cet ensemble exposé constitue un site de liaison idéal pour le complexe protéique C1q, qui déclenche le système du complément.[5,15] Cela déclenche la cascade classique du complément, entraînant un dépôt agressif et sublytique de protéines du complément (telles que le C3b et le complexe d'attaque membranaire) directement sur l'endothélium intact et par ailleurs sain.[5]
- Activation endothéliale profonde : Le dépôt massif de protéines du complément, associé à la réticulation mécanique des récepteurs de surface par les anticorps, fait basculer brutalement la cellule endothéliale de son état normal, quiescent et non thrombogène vers un phénotype hautement activé et pro-inflammatoire.[5] Raffiné in vitro Des modèles montrent que la simple incubation de sérums humains à titre élevé avec des cellules endothéliales nourries au Neu5Gc provoque directement des modifications massives de la signalisation intracellulaire, entraînant l'exocytose rapide des corps de Weibel-Palade et la de novo transcription des gènes inflammatoires.[5]
- Sécrétion de cytokines et surexpression des sélectines : L'endothélium nouvellement activé commence à sécréter de grandes quantités de cytokines pro-inflammatoires, créant ainsi un gradient chimiotactique localisé destiné à attirer les cellules immunitaires.[5] Parallèlement, les cellules augmentent rapidement l'expression en surface de molécules d'adhésion essentielles, notamment l'E-sélectine et la P-sélectine.[5] La P-sélectine, en particulier, est un médiateur puissant et largement reconnu des thromboembolies récurrentes et des troubles cardiovasculaires ; elle facilite l'adhésion initiale par roulement des leucocytes circulants à la paroi vasculaire.[23]
- Extravasation leucocytaire et formation de plaques : La forte présence de sélectines et la perturbation du glycocalyx entraînent une liaison des monocytes dépendante du Neu5Gc.[5] Les monocytes circulants roulent le long de l'endothélium activé, y adhèrent fermement grâce à des interactions avec les intégrines, puis pénètrent activement par diapédèse (compression) dans le espace sous-endothélial (la tunique intima). Une fois piégés dans la paroi artérielle, ces monocytes hyperactifs se transforment en cellules résidentes macrophages, commencent à phagocyter de manière intensive les lipoprotéines de basse densité oxydées (LDL), et se transforment en gigantesques cellules spumeuses. L'accumulation et la mort apoptotique qui s'ensuit de ces cellules spumeuses constituent la base d'un processus hautement thrombogène cœur nécrotique de la plaque athéroscléreuse.[5]
- Boucles d'amplification synergiques : Cette cascade destructrice ne se produit pas dans le vide ; elle est encore amplifiée par des états inflammatoires systémiques. La présence du facteur de nécrose tumorale alpha (TNF-α), une cytokine pro-inflammatoire omniprésente et très puissante dont l’expression est généralement accrue lors des poussées de lésions vasculaires généralisées ou syndrome métabolique, renforce de manière sélective et puissante la réactivité des anticorps anti-Neu5Gc humains, créant ainsi une boucle de rétroaction positive qui aggrave la destruction vasculaire.[5] De plus, fer héminique, présent en forte concentration dans la viande rouge, exerce ses propres effets pro-inflammatoires et oxydatifs, qui aggravent la détresse endothéliale provoquée par les glycanes.[22,23]
| Stade de la pathogenèse | Acteur cellulaire/moléculaire | Action et conséquence |
| 1. Identification de la cible | Neu5Gc endothélial et IgG/IgA circulantes | Formation de complexes immuns in situ sur la paroi artérielle, par ailleurs saine. |
| 2. Déclenchement en cascade | Protéine C1q du complément | Se lie aux régions Fc des anticorps, déclenchant ainsi le dépôt classique du complément. |
| 3. Changement cellulaire | Cellule endothéliale | Passage d'un état de repos à un phénotype activé et pro-inflammatoire. |
| 4. Altération de la surface | E-sélectine et P-sélectine | Expression massivement accrue à la surface cellulaire, où ces molécules agissent comme des points d'ancrage pour les cellules immunitaires. |
| 5. Infiltration | Monocytes / Macrophages | Ancrage, diapédèse dans la tunique intime, puis transformation en cellules spumeuses chargées de lipides. |
| 6. Maturation de la plaque dentaire | Cellules spumeuses et cytokines | L'accumulation entraîne la formation d'un noyau nécrotique ; la libération de cytokines (TNF-α) amplifie encore davantage la réactivité des anticorps. |
Quantification du risque : des preuves irréfutables issues de modèles murins humanisés
Afin d'isoler, de vérifier et de quantifier de manière rigoureuse la contribution spécifique de la perte évolutive de la CMAH aux maladies cardiovasculaires — en la distinguant clairement de la multitude de facteurs de confusion liés au mode de vie inhérents à l'existence humaine moderne (tels que tabagisme, la sédentarité et la consommation de sucre raffiné) — les chercheurs ont mis au point un modèle animal transgénique très sophistiqué et hautement spécifique : le modèle semblable à l’humain Cmah^-/- LDL^-/- souris.[1]
Souris de laboratoire de type sauvage (Cmah^+/+) produisent naturellement et en abondance du Neu5Gc et, comme pratiquement tous les autres mammifères, ne souffrent pas de xénosialite.[1] Afin de reproduire fidèlement la condition humaine, les chercheurs ont eu recours au génie génétique pour inactiver à la fois le Cmah gène (qui reproduit parfaitement la perte évolutive survenue chez l'être humain il y a 2 à 3 millions d'années) et le LDL Gène du récepteur des lipoprotéines de basse densité. Le LDL Le « knockout » est une procédure standard nécessaire pour induire chez la souris une prédisposition de base à l'athérosclérose d'origine alimentaire, ce qui permet aux chercheurs de mesurer les variations de la formation de plaques sur des durées expérimentales raisonnables.[1]
Les données expérimentales issues de ces modèles ont permis d'obtenir deux mesures distinctes et hautement significatives de la progression de la maladie, séparant clairement le risque en deux composantes : le multiplicateur de risque intrinsèque (la pénalité génétique liée au fait d'être humain) et le multiplicateur de risque extrinsèque (la pénalité alimentaire liée à la consommation de viande rouge).
Le risque intrinsèque (la sanction humaine de référence)
Au cours de la première phase de l'expérience, menée dans des conditions rigoureusement contrôlées, les chercheurs ont nourri à la fois le groupe témoin de type sauvage Cmahles souris ^+/+ et les modèles proches de l'humain Cmah^-/- ont reçu un régime riche en graisses identique et strictement contrôlé, totalement dépourvu de tout acide sialique (un régime sans Sias).[1] Les résultats étaient stupéfiants : même en l'absence totale et absolue de Neu5Gc dans l'alimentation, le système immunitaire de type humain CmahLes souris ^-/- ont présenté une augmentation hautement significative de l'athérogenèse, multipliée par 1,9, par rapport aux témoins de type sauvage.[1]
Ce quasi-doublement de la formation de plaque dans un environnement contrôlé a permis d'isoler le coût biologique intrinsèque de la mutation CMAH.[1] Des analyses histologiques et biochimiques approfondies ont révélé que la perte de ce gène avait profondément modifié la physiologie de base de l'organisme. Le CmahLes souris ^-/- présentaient une expression très élevée de cytokines par les macrophages, ce qui rendait leurs globules blancs intrinsèquement hyperactifs, hypersensibles et enclins à des réactions inflammatoires excessives, même en l'absence d'un déclencheur antigénique spécifique.[1] De plus, cette mutation a directement entraîné une augmentation de hyperglycémie et une forte prédisposition métabolique au diabète, ce qui augmente considérablement leur HOMA-IR (Évaluation du modèle homéostatique pour Résistance à l'insuline) résultats.[1] Ce dysfonctionnement systémique intrinsèque de base explique de manière élégante pourquoi même les végétariens et végétaliens stricts — qui ne consomment absolument aucune viande rouge et ne présentent souvent aucun des facteurs de risque traditionnels, comme un taux de cholestérol élevé — restent nettement plus exposés aux crises cardiaques inexpliquées et cajoleries que les chimpanzés en captivité dont l'alimentation est insuffisante.[1,2] Nous sommes génétiquement prédisposés à un niveau d'inflammation plus élevé.
Le risque extrinsèque (la « pénalité de la viande rouge »)
Au cours de la deuxième phase cruciale de l'étude, les chercheurs ont cherché à reproduire l'ensemble du mécanisme complexe liant la consommation de viande rouge chez l'homme et la xénosialite. Ils ont d'abord immunisé les modèles prébiologiques Cmah^-/- chez des souris présentant des antigènes spécifiques portant du Neu5Gc (en utilisant l'adjuvant complet de Freund) afin de générer des anticorps anti-Neu5Gc circulants et à affinité maturée, reproduisant parfaitement le profil immunitaire humain qui se développe après le sevrage.[1] Par la suite, ces souris immunisées et humanisées ont été nourries avec un régime riche en graisses, spécialement enrichi en Neu5Gc (imitant une alimentation riche et régulière en viande rouge).[1]
Les résultats pathologiques étaient spectaculaires et sans équivoque. Les souris immunisées et nourries avec du Neu5Gc ont présenté une aggravation massive de l’athérosclérose, multipliée par 2,4 par rapport aux souris témoins nourries soit avec un régime riche en Neu5Ac, soit avec un régime riche en graisses mais totalement exempt de Sias.[1] Une quantification rigoureuse de l'athérosclérose aortique a été réalisée : les souris ont été euthanasiées, perfusées, puis leurs aortes ont été disséquées et étalées à plat. La coloration au Soudan IV, destinée à mesurer la charge lipidique totale, ainsi que des coupes cryogéniques en série du sinus aortique colorées au trichrome de Masson, ont révélé un stade nettement plus avancé lésions, des zones nécrosées centrales très étendues et du collagène pathologique dense fibre déposition.[1]
Il est important de noter que cette accélération spectaculaire (2,4 fois) de la formation de plaque ne pouvait s'expliquer par des modifications en aval des taux de lipoprotéines sanguines, cholestérol total paramètres, ou glucose indicateurs.[1] Les lipides sanguins sont restés pratiquement identiques entre les cohortes expérimentales ; la destruction cardiovasculaire massive était entièrement et clairement due à la destruction inflammatoire localisée de l’endothélium, médiée par des anticorps — manifestation pure et sans équivoque de la xénosialite.[1]
Corrélats cliniques et pathologies systémiques plus générales
La nature insidieuse de l'intégration du Neu5Gc et de la xénosialite qui en découle dépasse largement les paramètres microscopiques des modèles murins isolés ; elle se manifeste de manière générale par des phénomènes cliniques observables et contribue à un large éventail de pathologies systémiques chez l'homme. Ce mécanisme ne se limite pas aux principales artères coronaires mais touche l'ensemble de l'arbre vasculaire.
Indicateurs diagnostiques : le signe de Frank et la dégradation microvasculaire
La nature systémique et omniprésente des lésions endothéliales provoquées par la xénosialite pourrait en effet se refléter dans les lits microvasculaires externes, très visibles. Sur le plan clinique, la présence d’un pli diagonal du lobe de l’oreille (DELC) — connu sous le nom éponyme de « signe de Frank » dans la littérature médicale — a été solidement et à maintes reprises établie comme un facteur prédictif indépendant de maladie coronarienne et les maladies vasculaires périphériques.[25,26] Cette corrélation reste valable indépendamment des facteurs de risque couramment connus, tels que l’hypertension, le diabète, l’hyperlipidémie et le tabagisme.[25,26]
Selon de nombreuses hypothèses, l'étiologie sous-jacente du signe de Frank résiderait dans un processus parallèle associant une atteinte microvasculaire systémique et l'affaiblissement accéléré, lié à l'âge, de élastine et des fibres de collagène présentes simultanément tant dans le lit vasculaire du lobe de l'oreille que dans celui des artères coronaires.[25,26] Compte tenu de la large répartition systémique du Neu5Gc dans le glycocalyx humain, en particulier au sein de la microvascularisation dense, l’inflammation chronique de faible intensité associée à la xénosialite accélère probablement ce mécanisme précis de dégradation microvasculaire.[5] La formation continue de complexes immuns et le dépôt de complément altèrent le rapport délicat entre le collagène et l'élastine, ce qui constitue un lien biochimique unificateur et hautement plausible avec ce marqueur diagnostique visible et macroscopique.[25,26]
Anticorps circulants et vascularite systémique aiguë
Le potentiel pathogène des anticorps anti-Neu5Gc est également mis en évidence dans le cadre de maladies vasculaires humaines aiguës et dévastatrices. Des titres élevés d’anticorps anti-Neu5Gc sont observés de manière marquée et systématique dans la maladie de Kawasaki, une vascularite systémique infantile aiguë, fébrile et souvent grave qui touche principalement les artères coronaires.[24] Il convient notamment de noter que l'on observe des taux d'anticorps circulants plus élevés chez les patients présentant des artères coronaires morphologiquement normales que chez ceux souffrant de complications graves à un stade avancé, telles que des anévrismes massifs ou une dilatation des artères coronaires.[24] Cette corrélation apparemment inverse suggère une pathogenèse de type « consommatoire » : au cours des phases inflammatoires aiguës et massives, de grands volumes d’anticorps anti-Neu5Gc circulants pourraient être rapidement consommés, en se liant fortement et en se séquestrant au niveau des sites de lésions vasculaires actives dans les parois coronariennes. Cela réduit effectivement le titre circulant mesurable lors du prélèvement sanguin, tandis que les anticorps favorisent activement la pathologie en profondeur dans la paroi artérielle.[24]
Par ailleurs, des taux élevés d’anticorps de classe IgA dirigés spécifiquement contre des antigènes alimentaires ont été directement mis en évidence dans le sérum de sujets présentant une athérosclérose sévère, par rapport à un groupe témoin de sujets sains rigoureusement sélectionnés.[27] Cette découverte met en évidence le lien étroit et indissociable entre les antigènes alimentaires d'origine intestinale, l'hypersensibilité immunitaire systémique et, en fin de compte, plaque artérielle fardeau.[27] Ce mécanisme ne se limite pas aux maladies cardiovasculaires ; l'incorporation du Neu5Gc joue également un rôle prépondérant dans la biologie du cancer. Comme le Neu5Gc s’accumule préférentiellement dans les tissus malins en raison des taux de croissance tumorale rapides, des taux accrus de micropinocytose et de la régulation à la hausse du transporteur de la sialine sous l’effet de l’hypoxie, la xénosialite crée un microenvironnement tumoral inflammatoire chronique qui favorise directement la carcinogenèse, angiogenèse, et les métastases.[8,22]
La menace imminente de la réactivité croisée virale
Un domaine de recherche émergent et d’une importance capitale porte sur l’interaction entre le paradigme préexistant de la xénosialite et les infections virales aiguës graves. Lorsque l’organisme humain déclenche des réponses anticorps massives et désespérées contre des agents pathogènes viraux enveloppés (tels que le SARS-CoV-2 ou le virus de la grippe A), les anticorps antiviraux neutralisants qui en résultent peuvent, sans le vouloir, aggraver une maladie vasculaire sous-jacente.[15] Étant donné que les virus à enveloppe utilisent le mécanisme de glycosylation cellulaire de l’hôte pour synthétiser leur enveloppe virale, les virions nouvellement formés se retrouvent recouverts des acides sialiques exprimés par la cellule hôte.[15] Chez un être humain consommant de la viande rouge, ces enveloppes virales seront imprégnées de Neu5Gc.[15]
Par conséquent, la vague massive d’anticorps antiviraux neutralisants produite au cours de l’infection peut entraîner des réactions croisées aveugles avec des épitopes xénosialylés (contenant du Neu5Gc) disséminés dans les tissus endothéliaux sains de l’hôte.[15] Cette réactivité croisée massive et systémique des anticorps est susceptible d'exacerber l'état de xénosialite préexistant.[15] La tempête hyperinflammatoire qui en résulte entraîne des coagulopathies graves et disséminées, des tempêtes de cytokines mortelles et des lésions endothéliales profondes et généralisées.[15] Cette hypothèse explique avec brio pourquoi l'état de santé cardiovasculaire initial et les habitudes alimentaires constituent des facteurs déterminants si importants et prépondérants de la mortalité lors de syndromes respiratoires viraux aigus, dans la mesure où l’infection virale ne fait qu’allumer la mèche de cette poudrière latente qu’est la xénosialite d’origine alimentaire.[15]
Interventions thérapeutiques et perspectives scientifiques futures
La compréhension des mécanismes complexes de l'intégration du Neu5Gc permet non seulement de résoudre une énigme majeure sur le plan évolutif et épidémiologique, mais ouvre également la voie à des approches thérapeutiques tout à fait novatrices et applicables. Ces interventions visent à réduire activement le risque cardiovasculaire au-delà du paradigme actuel de la médecine traditionnelle statine traitement, inhibition plaquettaire et tension artérielle gestion.
Interventions alimentaires à base d'acide sialique et inhibition compétitive
L'intervention la plus immédiate et la plus fondée sur le plan biologique consiste à moduler directement le profil en acide sialique de l'alimentation. Les données expérimentales démontrent sans équivoque qu'une intervention sur cette voie biochimique peut rapidement stopper, voire inverser, l'accélération de l'athérosclérose.[4] Dans l'étude ayant fait l'objet de nombreuses validations Cmah^-/- Dans un modèle murin analogue à l'être humain, le simple fait de faire passer les sujets d'un régime riche en graisses et en Neu5Gc à un régime riche en graisses mais sans Neu5Gc a permis de les protéger activement contre l'athérogenèse accélérée.[4]
Il est remarquable de constater que l'ajout d'une quantité massive de Neu5Ac (un acide sialique endogène humain inoffensif), cinq fois supérieure à la normale, à un régime riche en graisses a permis de supplanter efficacement le dangereux Neu5Gc en termes d'absorption et d'utilisation cellulaires, atténuant ainsi efficacement le risque inflammatoire.[4] De plus, l'administration d'un régime enrichi en Neu5Ac a intrinsèquement protégé contre l'athérosclérose chez LDLles souris ^-/- même en l'absence totale de Neu5Gc dans leur alimentation, à condition que l'hôte possède le gène similaire à celui de l'être humain Cmah- un fond génétique “ null ”, ce qui suggère que le fait de saturer le système avec le « bon » sucre stabilise activement l'endothélium humain.[4]
Les sources de Neu5Ac hautement concentré et biodisponible font actuellement l'objet de recherches intensives. Collocalia Les extraits mucoïdes, communément appelés « nids d'oiseaux comestibles », sont extrêmement riches en Neu5Ac naturel.[4] Des études biochimiques sur la digestion montrent qu’une préparation culinaire adéquate, notamment le contrôle de la température de cuisson, optimise la dégradation des glycopeptides de haut poids moléculaire présents dans le nid en fragments de Neu5Ac libres, de faible poids moléculaire et hautement assimilables.[4] Cela optimise sa biodisponibilité, ce qui lui permet de pénétrer dans la circulation sanguine à des concentrations élevées afin d'agir comme inhibiteur compétitif face au Neu5Gc d'origine alimentaire.[4]
Ingénierie du microbiome et clivage enzymatique industriel
Une deuxième piste thérapeutique très innovante consiste à agir directement sur l'alimentation en exploitant les mécanismes biochimiques mêmes développés par le microbiote intestinal. La découverte récente de sialidases bactériennes spécifiques (issues de Bactéroïdes et Clostridiales) qui présentent une préférence enzymatique écrasante et très spécifique pour la coupure du Neu5Gc plutôt que celle du Neu5Ac constituent une opportunité industrielle et médicale considérable.[17]
Ces enzymes puissantes, capables de libérer efficacement le Neu5Gc lié aux glycoprotéines complexes de la viande rouge, pourraient être utilisées dans la transformation industrielle des produits carnés avant leur mise en vente au détail.[17] En traitant préalablement la viande rouge de mammifères avec ces sialidases bactériennes recombinantes spécifiques, il serait possible d“” éliminer » efficacement le Neu5Gc lié à la viande.[17] Étant donné que le Neu5Gc libre et non lié est mal absorbé par l'intestin et qu'il est éliminé rapidement et sans danger par le système rénal via l'urine, la conversion du Neu5Gc lié, dangereux, en Neu5Gc libre, inoffensif, s'effectue directement dans le matrice alimentaire pourrait réduire considérablement le risque de maladies inflammatoires.[11,16] Cette approche permettrait de rompre efficacement la chaîne biochimique à l'origine de la xénosialite sans imposer à l'ensemble de la population une abstinence alimentaire totale de viande rouge.[17,20]
Conclusion
L'interaction profonde entre la biologie évolutive, les mécanismes de glycosylation intracellulaire, l'immunologie et les habitudes alimentaires modernes apporte une explication exhaustive et précise sur le plan moléculaire à la prédisposition propre à l'être humain aux maladies cardiovasculaires. Le système cardiovasculaire humain fonctionne sous l’effet d’un handicap génétique intrinsèque et permanent : l’héritage indélébile de la pseudogénisation du gène CMAH induite par les éléments Alu, survenue il y a des millions d’années. Si cette mutation spectaculaire a probablement sauvé nos ancêtres hominidés d’une extinction catastrophique due à un parasite vecteur du paludisme, elle a toutefois laissé le glycocalyx humain moderne définitivement altéré et extrêmement vulnérable.
La consommation régulière de viande rouge de mammifères introduit directement dans le tractus gastro-intestinal humain des quantités massives et non naturelles d’acide sialique “ perdu ”, le Neu5Gc. Là, des sialidases bactériennes spécialisées libèrent la molécule, permettant ainsi son absorption. Par un tragique cas de mimétisme moléculaire, l’appareil cellulaire humain intègre sans discernement ce glycan étranger via le transporteur de la sialine, le présentant de manière covalente à la surface luminale de l’endothélium vasculaire. Préparé par une exposition alimentaire précoce et un piégeage moléculaire continu par des pathogènes commensaux tels que les bactéries non typables Haemophilus influenzae, le système immunitaire humain perçoit l’endothélium altéré comme une menace étrangère. Le déluge incessant et permanent d’anticorps polyclonaux de type IgG et IgA qui en résulte déclenche un dépôt classique du complément, une expression massive de sélectines, une extravasation des monocytes et la formation continue et latente de plaques.
Ce mécanisme largement validé, appelé « xénosialite », explique de manière éclatante et exhaustive les 15% cas d’athérosclérose clinique survenant chez des patients totalement dépourvus de facteurs de risque traditionnels. Il rend parfaitement compte de l'accélération massive (multipliée par 2,4) de l'athérogenèse observée dans des modèles animaux contrôlés suite à la consommation de viande rouge, et il explique pourquoi les chimpanzés — nos plus proches parents évolutifs, dotés de profils lipidiques identiques — restent à l'abri de l'athérosclérose coronarienne. À l’avenir, les interventions ciblant une supplémentation compétitive en Neu5Ac et le clivage enzymatique industriel du Neu5Gc dans la chaîne alimentaire offrent la perspective sans précédent d’annuler ce compromis évolutif ancestral, modifiant ainsi fondamentalement le paysage de la médecine préventive cardiovasculaire et redéfinissant notre compréhension des pathologies d’origine alimentaire.
Références
- Kawanishi K, Dhar C, Do R, Varki N, Gordts PLSM, Varki A. Human species-specific loss of CMP-N-acetylneuraminic acid hydroxylase enhances atherosclerosis via intrinsic and extrinsic mechanisms. Proc Natl Acad Sci U S A. 2019;116(32):16036-16045. doi:10.1073/pnas.1902902116
- Baldessari A, Snyder J, Ahrens J, Murnane R. Fatal myocardial fibrosis in an aged chimpanzee (Pan troglodytes).
- Banda K, Gregg CJ, Chow R, Varki NM, Varki A. Metabolism of vertebrate amino sugars with N-glycolyl groups: mechanisms underlying gastrointestinal incorporation of the non-human sialic acid xeno-autoantigen N-glycolylneuraminic acid.
- Kawanishi K, Coker JK, Grunddal KV, et al. Dietary Neu5Ac Intervention Protects Against Atherosclerosis Associated With Human-Like Neu5Gc Loss-Brief Report.
- Dhar C, Sasmal A, Varki A. From “Serum Sickness” to “Xenosialitis”: Past, Present, and Future Significance of the Non-human Sialic Acid Neu5Gc.
- Lewis AL, Chen X, Schnaar RL, Varki A. Sialic Acids and Other Nonulosonic Acids. In: Varki A, Cummings RD, Esko JD, et al., eds.
- Varki A. Sialic acids in human health and disease.
- Altman MO, Gagneux P. Absence of Neu5Gc and Presence of Anti-Neu5Gc Antibodies in Humans-An Evolutionary Perspective. Front Immunol. 2019;10:789. Published 2019 Apr 30. doi:10.3389/fimmu.2019.00789
- Varki A. Colloquium paper: uniquely human evolution of sialic acid genetics and biology. Proc Natl Acad Sci U S A. 2010;107 Suppl 2(Suppl 2):8939-8946. doi:10.1073/pnas.0914634107
- Padler-Karavani V, Yu H, Cao H, et al. Diversity in specificity, abundance, and composition of anti-Neu5Gc antibodies in normal humans: potential implications for disease. Glycobiology. 2008;18(10):818-830. doi:10.1093/glycob/cwn072
- Bardor M, Nguyen DH, Diaz S, Varki A. Mechanism of uptake and incorporation of the non-human sialic acid N-glycolylneuraminic acid into human cells. J Biol Chem. 2005;280(6):4228-4237. doi:10.1074/jbc.M412040200
- Varki A. Multiple changes in sialic acid biology during human evolution. Glycoconj J. 2009;26(3):231-245. doi:10.1007/s10719-008-9183-z
- Dubois L, Pietrancosta N, Cabaye A, et al. Amino Acids Bearing Aromatic or Heteroaromatic Substituents as a New Class of Ligands for the Lysosomal Sialic Acid Transporter Sialin. J Med Chem. 2020;63(15):8231-8249. doi:10.1021/acs.jmedchem.9b02119
- Apicella MA. Nontypeable Haemophilus influenzae: the role of N-acetyl-5-neuraminic acid in biology. Front Cell Infect Microbiol. 2012;2:19. Published 2012 Mar 13. doi:10.3389/fcimb.2012.00019
- Taylor RE, Gregg CJ, Padler-Karavani V, et al. Novel mechanism for the generation of human xeno-autoantibodies against the nonhuman sialic acid N-glycolylneuraminic acid. J Exp Med. 2010;207(8):1637-1646. doi:10.1084/jem.20100575
- Verheijen FW, Verbeek E, Aula N, et al. A new gene, encoding an anion transporter, is mutated in sialic acid storage diseases. Nat Genet. 1999;23(4):462-465. doi:10.1038/70585
- Zaramela LS, Martino C, Alisson-Silva F, et al. Gut bacteria responding to dietary change encode sialidases that exhibit preference for red meat-associated carbohydrates. Nat Microbiol. 2019;4(12):2082-2089. doi:10.1038/s41564-019-0564-9
- Padler-Karavani V, Hurtado-Ziola N, Pu M, et al. Human xeno-autoantibodies against a non-human sialic acid serve as novel serum biomarkers and immunotherapeutics in cancer. Cancer Res. 2011;71(9):3352-3363. doi:10.1158/0008-5472.CAN-10-4102
- Vimr ER, Kalivoda KA, Deszo EL, Steenbergen SM. Diversity of microbial sialic acid metabolism. Microbiol Mol Biol Rev. 2004;68(1):132-153. doi:10.1128/MMBR.68.1.132-153.2004
- Tailford LE, Crost EH, Kavanaugh D, Juge N. Mucin glycan foraging in the human gut microbiome. Front Genet. 2015;6:81. Published 2015 Mar 19. doi:10.3389/fgene.2015.00081
- Samraj AN, Pearce OM, Läubli H, et al. A red meat-derived glycan promotes inflammation and cancer progression. Proc Natl Acad Sci U S A. 2015;112(2):542-547. doi:10.1073/pnas.1417508112
- Hull SC, Mszar R, Ostfeld RJ, et al. Diet and Prevention of Cardiovascular Disease and Cancer: JACC: CardioOncology State-of-the-Art Review. JACC CardioOncol. 2025;7(6):649-667. doi:10.1016/j.jaccao.2025.07.008
- Evrengül H, Dursunoğlu D, Kaftan A, et al. Bilateral diagonal earlobe crease and coronary artery disease: a significant association. Dermatology. 2004;209(4):271-275. doi:10.1159/000080847
- Padler-Karavani V, Tremoulet AH, Yu H, Chen X, Burns JC, Varki A. A simple method for assessment of human anti-Neu5Gc antibodies applied to Kawasaki disease. PLoS One. 2013;8(3):e58443. doi:10.1371/journal.pone.0058443
- Shmilovich H, Cheng VY, Rajani R, et al. Relation of diagonal ear lobe crease to the presence, extent, and severity of coronary artery disease determined by coronary computed tomography angiography. Am J Cardiol. 2012;109(9):1283-1287. doi:10.1016/j.amjcard.2011.12.024
- Gakovic B, Neskovic SA, Vranic I, et al. The relationship of diagonal earlobe crease (Frank’s sign) and obstructive coronary artery disease in patients undergoing coronary angiography. Wien Klin Wochenschr. 2023;135(23-24):667-673. doi:10.1007/s00508-023-02297-y
- Muscari A, Volta U, Bonazzi C, et al. Association of serum IgA antibodies to milk antigens with severe atherosclerosis. Atherosclerosis. 1989;77(2-3):251-256. doi:10.1016/0021-9150(89)90088-9