Doença cardiovascular (DCV) continua sendo o desafio de saúde pública mais formidável da era moderna, destacando-se como a principal causa de mortalidade global e sendo responsável por aproximadamente um terço de todas as mortes no mundo.[1] A compreensão canônica de aterosclerose—o estreitamento progressivo e insidioso e o endurecimento dos vasos arteriais por meio de tecido fibro-gorduroso placa deposição — atribui a patogênese a uma constelação de fatores bem estabelecidos, predominantemente modificáveis fatores de risco. Estes determinantes clássicos incluem sistêmicos hipertensão, dislipidemia (especificamente o colesterol de baixa densidade elevado lipoproteína colesterol), tipo 2 diabetes mellitus, obesidade, inatividade física, avanço da idade e consumo de tabaco.1No entanto, uma persistente e profundamente confundível O paradoxo epidemiológico há muito tempo questiona a abrangência absoluta desse paradigma tradicional: aproximadamente 15% dos primeiros episódios de doenças cardiovasculares, incluindo os catastróficos infartos do miocárdio e acidentes vasculares cerebrais, ocorrem em pacientes que apresentam uma ausência completa e absoluta desses fatores de risco estabelecidos.1]
Essa anomalia clínica profunda é ainda mais complicada e iluminada pelo campo da cardiologia comparativa entre espécies. Ao observar o reino mamífero mais amplo, tromboses coronarianas e infartos do miocárdio de ocorrência natural, impulsionados por ateromas ruptura de placa são praticamente inexistentes em espécies além dos humanos.1] Essa resistência permanece notavelmente verdadeira até mesmo em nossos parentes evolutivos mais próximos, os hominídeos não humanos. Chimpanzés em cativeiro frequentemente compartilham estilos de vida sedentários semelhantes aos humanos e exibem distúrbios fisiológicos impressionantemente análogos, incluindo hiperlipidemia profunda, idade avançada e hipertensão sistêmica.[1No entanto, apesar de possuir sangue com propensão a risco cardiovascular semelhante ao humano perfis lipídicos e evidência de aterosclerose leve em estágio inicial, esses primatas raramente sofrem de eventos terminais de DCV aterosclerótica.2] Quando catastrófico eventos cardíacos ocorrem em populações de chimpanzés, rigorosas análises post-mortem revelam que suas ataques cardíacos são predominantemente impulsionados por um fator ainda inexplicável fibrose miocárdica intersticial—uma cicatrização difusa do músculo cardíaco — em vez da ruptura da placa ateromatosa canônica e subsequente trombose visto em pacientes humanos.2Além disso, embora pesado carne vermelha o consumo é um amplificador epidemiológico universalmente reconhecido do risco de DCV em populações humanas, este padrão alimentar exato não provoca aterogênese em outros mamíferos carnívoros ou onívoros.2]
Essa divergência profunda aponta inexoravelmente para uma predisposição genética intrínseca e específica da espécie para a aterosclerose em humanos.1O cerne dessa vulnerabilidade única não reside estritamente no metabolismo lipídico, no estresse de cisalhamento hemodinâmico ou em variáveis comportamentais isoladamente, mas em uma antiga anomalia genética evolutiva que envolve a biologia fundamental da superfície celular glicanos. Especificamente, a suscetibilidade cardiovascular humana está inextricavelmente ligada a uma perda evolutiva da capacidade de sintetizar Ácido N-glicolilneuramínico (Neu5Gc), um ácido siálico de mamíferos onipresente.1] Apesar dessa profunda deficiência genética, o consumo humano de carne vermelha rica em Neu5Gc resulta na incorporação metabólica desse glicano não humano diretamente nos tecidos humanos, mais notavelmente no sistema vascular endotélio.[3,4] O reconhecimento imunológico subsequente desse açúcar incorporado como um “xeno-autoantígeno” desencadeia uma cascata inflamatória crônica e latente chamada “xenossialite.”[5]
Este relatório de pesquisa exaustivo elucida os mecanismos evolutivos, bioquímicos e imunológicos altamente intrínsecos que fundamentam a hipótese da xenosialite. Ao explorar a deleção genômica da gene CMAH, a complexa digestão da dieta mediada pelo microbioma Neu5Gc, o sequestro molecular das vias de glicosilação intracelular humana e a resultante destruição endotelial mediada por anticorpos policlonais, esta análise fornece uma compreensão abrangente de por que os humanos são unicamente suscetíveis à aterosclerose associada à carne vermelha e exatamente como esse mecanismo eleva quantificavelmente o risco cardiovascular ao longo da vida.
O Paradigma Evolucionário: A Mutações do Gene CMAH e as Origens Humanas
A Biologia Fundamental dos Ácidos Siálicos
Para compreender com precisão a magnitude e a consequência do defeito genético humano, deve-se primeiro estabelecer o papel fisiológico e estrutural de ácidos siálicos dentro da biologia dos vertebrados. As superfícies de todas as células de vertebrados são intimamente decoradas com uma matriz densa, complexa e altamente regulada de cadeias de açúcares, que estão predominantemente ligadas a membranas integrais proteínas e lipídeos de superfície para formar o glicocálice.[6,7] A maioria das proteínas secretadas solúveis que transitam pela circulação humana também é similarmente decorada com tais glicanos especializados.[6,7] Os ácidos siálicos constituem uma família diversificada de monossacarídeos altamente modificados, com uma estrutura principal de nove átomos de carbono, e são normalmente encontrados nas extremidades terminais, mais externas, dessas cadeias de glicanas.[6,7]
Devido à sua localização distal nas glicoproteínas e nos glicolipídios, aliada à sua forte carga eletronegativa em pH fisiológico, os ácidos siálicos desempenham papéis indispensáveis e multifacetados na mediação da adesão célula a célula, na modulação das interações receptor-ligante e na estabilização do glicocálice endotelial barreira e regulando o reconhecimento imunológico do próprio organismo por meio de lectinas específicas que se ligam ao ácido siálico (Siglecs).[6,8]
Na grande maioria das espécies de mamíferos e, de fato, na maioria dos vertebrados terrestres, as duas formas predominantes de ácido siálico são o ácido N-acetilneuramínico (Neu5Ac) e seu derivado hidroxilado direto, o ácido N-glicolilneuramínico (Neu5Gc).[6,7] Essas duas moléculas são estruturalmente quase idênticas, diferindo apenas pela presença de um único átomo de oxigênio.[5] A transição bioquímica do precursor Neu5Ac para o derivado Neu5Gc é catalisada exclusivamente por uma única enzima altamente específica: a citidina monofosfato-N-acetilneuramínico hidrolase (CMAH).[1,3] Essa enzima essencial atua sobre o doador de nucleotídeo-açúcar CMP-Neu5Ac no citosol celular, facilitando uma reação de monooxigenase que adiciona um grupo hidroxila para gerar CMP-Neu5Gc.[6,7] Tanto o CMP-Neu5Ac quanto o CMP-Neu5Gc são, posteriormente, transportados do citosol para o lúmen do aparelho de Golgi, onde atuam como os principais doadores de nucleotídeos e açúcares para adição às proteínas recém-sintetizadas glicoconjugados.[6,7] Consequentemente, os tecidos normais dos mamíferos apresentam um mosaico rico, intercalado e altamente funcional de Neu5Ac e Neu5Gc em suas superfícies celulares.[6,7]
| Recurso | Ácido N-acetilneuramínico (Neu5Ac) | Ácido N-glicolilneuramínico (Neu5Gc) |
| Estrutura Central | monossacarídeo com 9 átomos de carbono | monossacarídeo com 9 átomos de carbono |
| Diferença química | Possui um grupo N-acetil | Possui um grupo N-glicolil (adição de um átomo de oxigênio) |
| Origem biossintética | Sintetizado de novo em todos os vertebrados | Sintetizado a partir do Neu5Ac por meio da enzima CMAH |
| Situação em seres humanos | O ácido siálico humano endógeno predominante | Geneticamente ausente; considerado “estranho” xenoantígeno |
| Distribuição dos mamíferos | Onipresente em todas as espécies de mamíferos | Onipresente em mamíferos não humanos; ausente em humanos |
O evento de pseudogenização mediado por Alu
Os seres humanos, no entanto, representam uma anomalia marcante e significativa dentro da linhagem dos mamíferos. Os tecidos humanos normais e saudáveis são genética e fundamentalmente incapazes de sintetizar o Neu5Gc.[5] Esse truncamento bioquímico não é uma supressão regulatória, mas a consequência direta de uma mutação irreversível e específica da espécie no próprio gene CMAH.[1,3]
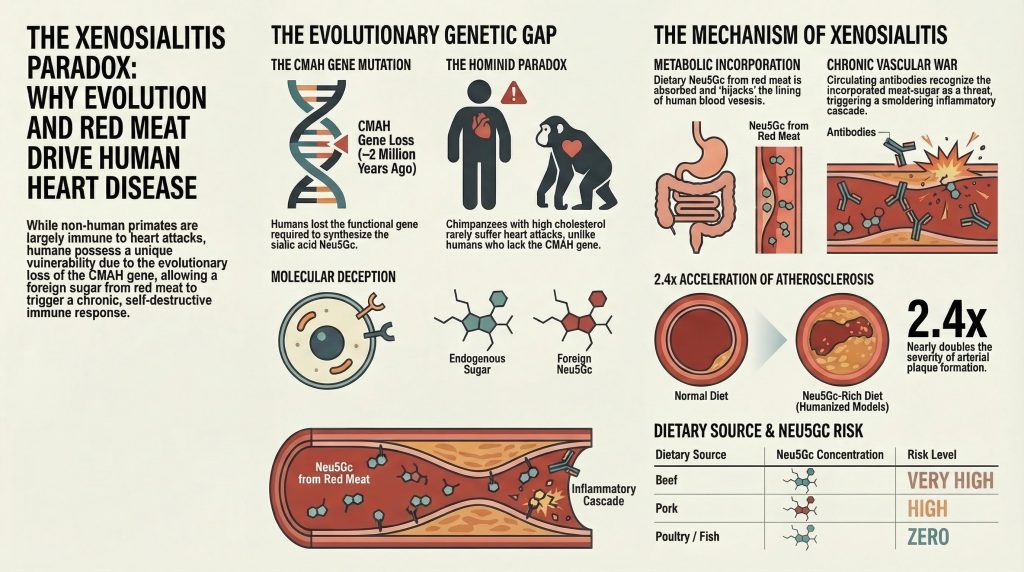
Estimativas paleogenômicas e análises filogenéticas comparativas indicam que, há aproximadamente 2 a 3 milhões de anos — um período que corresponde ao surgimento do gênero Homo de nossos ancestrais hominídeos — ocorreu um evento genômico crucial.[1,9,12] Um Elemento transponível Alu, um tipo de “gene saltitante” comum nos genomas dos primatas, inseriu-se no locus genético do CMAH. Essa inserção mediou uma deleção catastrófica com deslocamento de quadro de um exão crítico de 92 pares de bases dentro do gene CMAH, resultando em um códon de parada prematura e na perda total pseudogenização (inativação total) do locus.[9,12] Como a reação enzimática de CMP-Neu5Ac para CMP-Neu5Gc é estritamente unidirecional e depende inteiramente da CMAH, a perda dessa única enzima interrompeu permanentemente a via biossintética.[1,3] Como resultado direto disso, os seres humanos modernos produzem apenas o precursor, o Neu5Ac, deixando as superfícies celulares completamente desprovidas de Neu5Gc endógeno e alterando drasticamente o panorama bioquímico do organismo humano.[1,3]
Pressões de seleção evolutiva: patógenos e isolamento reprodutivo
A fixação de uma mutação com perda de função em um gene responsável pela síntese de uma molécula primária e onipresente na superfície celular é um evento evolutivo extraordinário. Uma alteração tão drástica e repentina no glicocalixo do hospedeiro deve ter sido impulsionada por pressões de seleção evolutiva fenomenalmente intensas, já que é altamente improvável que apenas a deriva genética estocástica seja responsável pela fixação completa, em toda a população, de uma mudança bioquímica tão fundamental.[12] A biologia evolutiva atual propõe um modelo multifatorial para a rápida fixação do alelo nulo do CMAH na população ancestral de hominídeos.
A hipótese mais aceita — e que tem sido objeto das pesquisas mais intensas — envolve uma brutal corrida armamentista evolutiva entre hospedeiro e patógeno, envolvendo especificamente os ancestrais do parasita causador da malária Plasmodium parasitas.[9,12] Os ácidos siálicos da superfície celular dos mamíferos atuam como os principais receptores de ligação e motivos de reconhecimento para diversos patógenos virais, bacterianos e parasitários.[6,7] É altamente provável, com base nas assinaturas genômicas de seleção, que os hominídeos ancestrais tenham sido dizimados por uma cepa altamente virulenta da malária dos “hominídeos não humanos” (NHH), que se ligava preferencialmente a eritrócitos ricos em Neu5Gc para conseguir entrar nas células.[9,12] A perda do gene CMAH mediada pelo Alu, embora potencialmente prejudicial em outros aspectos, proporcionou uma vantagem de sobrevivência repentina e vital aos raros indivíduos portadores da mutação. Ao privar efetivamente o hospedeiro do receptor de superfície celular preferido do patógeno, os hominídeos com deficiência de CMAH conseguiram escapar do flagelo malárico predominante, levando a uma varredura seletiva em grande escala que fixou a mutação nula em toda a população sobrevivente.[9,12] Essa vitória evolutiva, no entanto, foi temporária no contexto mais amplo do tempo geológico. Plasmodium falciparum—o agente altamente letal responsável pela malária maligna em humanos modernos—acabou por desenvolver a capacidade de se ligar preferencialmente aos eritrócitos ricos em Neu5Ac, agora onipresentes e específicos do ser humano, restabelecendo a dinâmica hospedeiro-patógeno.[6,7,12]
Uma hipótese secundária, mas igualmente convincente e complementar, envolve o isolamento reprodutivo e a “seleção catastrófica” mediada pelo sistema imunológico feminino.[12] Os espermatozoides dos mamíferos são fortemente sialilados, utilizando glicanos de superfície complexos para aumentar a sobrevivência dos espermatozoides, mascarar proteínas imunogênicas e otimizar sua função ao longo da perigosa jornada pelo trato reprodutor feminino até o local da fertilização no oviduto.[12] Uma hominídea portadora da rara mutação CMAH-null desenvolveria naturalmente anticorpos anti-Neu5Gc circulantes após a exposição pós-natal ao Neu5Gc presente no ambiente ou na alimentação, uma vez que seu sistema imunológico reconheceria a molécula como estranha.[10,12,18] Se essa fêmea mutante posteriormente acasalasse com um macho do tipo selvagem (CMAH-positivo), seus anticorpos circulantes atacariam agressivamente e neutralizariam os espermatozoides paternos ricos em Neu5Gc, reduzindo drasticamente o sucesso reprodutivo dele e destruindo efetivamente a viabilidade do acasalamento.[12] Ao longo de milhares de gerações, essa seleção imunomediada pelas mulheres contra o Neu5Gc paterno criaria uma barreira reprodutiva intensa e inflexível entre as populações mutantes e as de tipo selvagem, impulsionando a rápida fixação do genótipo CMAH-nulo e, potencialmente, contribuindo diretamente para o evento de especiação que, por fim, isolou os ancestrais humanos de outros hominídeos.[12]
O desequilíbrio alimentar: digestão e processamento microbiano de ácidos siálicos exógenos
A perda evolutiva do gene CMAH faz com que o Neu5Gc seja bioquimicamente totalmente estranho ao organismo humano moderno.[5] No entanto, apesar dessa profunda deficiência genética, as dietas humanas modernas — especialmente nas sociedades ocidentalizadas — estão repletas dessa molécula. O Neu5Gc está altamente concentrado em carnes vermelhas de origem mamífera, especificamente carne bovina, suína e ovina, que continuam sendo alimentos básicos do consumo global.[3,8,22] Além disso, os laticínios derivados desses mamíferos também contêm quantidades mensuráveis, embora menores, do ácido siálico não humano.[8]
Ensaios bioquímicos rigorosos e cromatografia líquida de alta eficiência definiram claramente o panorama alimentar da exposição ao Neu5Gc. Pesquisas demonstram que a carne bovina contém os níveis mais elevados dessa molécula, com aproximadamente 30,1 µg/g de Neu5Gc, seguida de perto pela carne suína, com 25,5 µg/g.[7,8] Por outro lado, as espécies aviárias (como as aves de corte) e diversas linhagens de peixes divergiram da árvore filogenética dos mamíferos muito antes da evolução do gene CMAH, ou o perderam de forma independente, e, portanto, são completa e naturalmente desprovidas de Neu5Gc.[7,8] Essa dicotomia bioquímica rigorosa torna a exposição alimentar ao Neu5Gc altamente específica ao consumo de carne vermelha de mamíferos.[7,8]
| Fonte alimentar | Classificação do conteúdo de Neu5Gc | Concentração específica de Neu5Gc |
| Carne bovina | Muito alto | ~ 30,1 µg/g |
| Carne de porco | Alto | ~ 25,5 µg/g |
| Cordeiro / Coelho | Alto | Comparável à carne bovina/suína |
| Produtos lácteos | Moderado | Variável, presente nas glicoproteínas do leite |
| Aves (frango, peru) | Zero (ausência bioquímica) | 0,0 µg/g |
| Peixes e frutos do mar | Zero (ausência bioquímica) | 0,0 µg/g |
O papel fundamental da microbiota intestinal
A transição do Neu5Gc alimentar — de um alimento consumido que se encontra no lúmen gástrico — para uma entidade bioquímica absorvida e sistemicamente ativa é rigidamente regulada pelo microbioma gastrointestinal do hospedeiro. O Neu5Gc alimentar geralmente não é ingerido como um monossacarídeo livre; em vez disso, é consumido principalmente na forma ligada por ligações glicosídicas, profundamente integrado às glicoproteínas complexas, mucinas e glicolipídios que compõem o tecido dos mamíferos (como a mucina submaxilar suína).[8,17] Essa distinção entre ácido siálico ligado e livre reveste-se de suma importância fisiológica. Embora o Neu5Gc livre, não ligado, possa tecnicamente ser absorvido através da barreira intestinal, ele é reconhecido pelo organismo como uma molécula pequena, altamente solúvel e não utilizável. Consequentemente, o Neu5Gc livre é rapidamente eliminado pelo sistema renal e excretado de forma eficiente na urina, não causando, de forma alguma, acúmulo tecidual de longo prazo ou patologias.[11,16] Somente o Neu5Gc ligado estruturalmente, apresentado em arranjos macromoleculares complexos, passa pelo perigoso processo de incorporação metabólica.[11,16,17]
Avanços recentes no sequenciamento metagenômico do ser humano e do camundongo microbiota intestinal revelaram que a flora microbiana residente responde de forma dinâmica e rápida a uma dieta rica em Neu5Gc.[17] Especificamente, as populações pertencentes às ordens Bacteroidales e Clostridiales sofrem uma expansão fenotípica significativa quando expostos a fatores associados à carne vermelha carboidratos.[17] Esses clados bacterianos específicos evoluíram para expressar sialidases bacterianas altamente especializadas (neuraminidases), projetadas especificamente para clivar os ácidos siálicos terminais das mucinas da mucosa do hospedeiro e, fundamentalmente, das glicoproteínas da alimentação.[17,20,21]
Historicamente, supunha-se que as sialidases bacterianas preferissem exclusivamente o Neu5Ac endógeno do hospedeiro, uma vez que esse é o substrato mais abundante no intestino humano. No entanto, estudos estruturais aprofundados, utilizando cristalografia avançada de raios X, identificaram configurações específicas de aminoácidos, até então não observadas, em certas sialidases bacterianas, que conferem uma preferência de substrato de afinidade excepcionalmente alta por glicanos contendo Neu5Gc.[17] Essas bactérias intestinais especializadas orquestram uma complexa dinâmica de alimentação cruzada dentro do microbioma, na qual utilizam a via genética Nan para catabolizar ativamente os ácidos siálicos clivados, a fim de obter energia e carbono.[20,21] Curiosamente, o catabolismo posterior do Neu5Ac produz ácido acético como subproduto, enquanto o metabolismo bacteriano do Neu5Gc gera ácido glicólico.[20,21] Essas diferenças nos subprodutos metabólicos podem alterar sutilmente o pH local e o panorama metabólico do epitélio do cólon, contribuindo para o ambiente inflamatório mais amplo.[20,21]
Suspeita-se fortemente que a liberação enzimática de Neu5Gc por essas sialidases microbianas, a partir das grandes glicoproteínas da carne, em fragmentos oligosacarídicos menores e específicos (como o GalNGc), seja o primeiro passo necessário para a subsequente absorção intestinal e distribuição sistêmica desse açúcar não humano.[8,17]
Sequestro celular: o mecanismo de incorporação metabólica
Assim que o Neu5Gc de origem alimentar, ligado por ligações glicosídicas (ou seus oligossacarídeos intermediários liberados pelo microbioma), atravessa o complexo epitélio intestinal, ele entra na circulação sistêmica. Evidências demonstram que, após uma refeição à base de carne vermelha, esses xenoglicanos aparecem na circulação humana em um nível de equilíbrio que persiste por várias horas, proporcionando ampla oportunidade para interação com os tecidos.[11,15,16] O fenômeno pelo qual essa molécula alimentar totalmente estranha é integrada permanentemente aos tecidos humanos representa uma vulnerabilidade fascinante e altamente perigosa na bioquímica humana. A questão fundamental é de engano molecular: nosso mecanismo de glicosilação intracelular, altamente conservado, simplesmente não consegue distinguir entre o precursor endógeno (Neu5Ac) e o análogo exógeno, não humano (Neu5Gc).[3,5,11] As moléculas, que diferem apenas por um único e minúsculo átomo de oxigênio, parecem idênticas às enzimas responsáveis pela construção celular.[3,5]
A via endocítica e lisossomal
Como as células humanas carecem totalmente de um transportador específico da membrana plasmática, projetado especialmente para a captação de ácidos siálicos livres do espaço extracelular, a internalização dos glicoconjugados de Neu5Gc circulantes deve ocorrer por vias alternativas.[11,13,16] Essa absorção é impulsionada principalmente pela endocitose em fase líquida e pela macropinocitose — processos nos quais a célula basicamente “bebe” o fluido extracelular circundante e seu conteúdo dissolvido.[11,12,16]
Após a internalização, essas moléculas exógenas são encapsuladas em endossomos e transportadas cuidadosamente até o ambiente altamente ácido e degradativo do lisossomo.[11,16] Dentro do lisossomo, as sialidases lisossomais derivadas do hospedeiro clivam enzimaticamente os complexos glicoconjugados da dieta, liberando, por fim, monossacarídeos Neu5Gc livres nas profundezas da célula.[11,16]
O ponto de entrada fundamental e insubstituível para a subsequente incorporação dessa molécula é o transportador lisossomal de ácido siálico, uma proteína conhecida como sialina (codificada pelo SLC17A5 gene).[11,13,16] A sialina é uma proteína transmembranar altamente conservada cuja função fisiológica normal consiste na recuperação e reciclagem do Neu5Ac endógeno do hospedeiro a partir de glicoproteínas degradadas no lisossomo, bombeando-as de volta para o citosol para reutilização.[11,16] No entanto, a sialina não é perfeitamente seletiva; ela aceita prontamente as moléculas livres de Neu5Gc derivadas da carne vermelha e as transporta ativamente para o espaço citosólico, rompendo efetivamente a barreira interna final da célula.[11,12,16]
Síntese de novo e expressão endotelial
Uma vez dentro da relativa segurança do citosol, o Neu5Gc exógeno entra na via de síntese de novo do ácido siálico da célula-hospedeira, dando início às etapas finais do sequestro bioquímico. A molécula é transformada pela citidina monofosfato (CMP)-ácido siálico sintase, uma enzima que ativa o monossacarídeo ao ligar-lhe um nucleotídeo CMP de alta energia, formando o complexo doador CMP-Neu5Gc.[6,7] Esse doador ativado de nucleotídeo de açúcar é então transportado ativamente para o lúmen do aparelho de Golgi, o centro nevrálgico de triagem e modificação da célula.[6,7]
No aparelho de Golgi, as glicosiltransferases humanas — as enzimas específicas responsáveis pela construção das complexas árvores de glicanos ramificadas nas proteínas e lipídios recém-sintetizados — utilizam cegamente os abundantes doadores de CMP-Neu5Gc como se fossem o CMP-Neu5Ac endógeno correto.[3,5,11] Consequentemente, o Neu5Gc fica ligado de forma covalente e permanente às glicoproteínas e glicolipídios recém-sintetizados. Essas moléculas recém-formadas e xeno-sialiladas são então transportadas por meio de vesículas secretoras até a superfície celular, onde são integradas à membrana plasmática.[3,5]
Por meio dessa complexa via bioquímica, as células humanas basicamente se apropriam de um composto alimentar e, sem perceber, transformam suas próprias superfícies celulares em armas. Embora tenha sido observado acúmulo de Neu5Gc em vários tecidos humanos, incluindo os epitélios que revestem os órgãos ocos (o que explica sua forte ligação epidemiológica com vários carcinomas), ele apresenta um tropismo profundo e altamente seletivo pelo endotélio vascular — o delicado revestimento mais interno de todos os vasos sanguíneos.[5,22] Estudos imuno-histoquímicos rigorosos em amostras de autópsias humanas, utilizando tanto anticorpos anti-Neu5Gc de galinha, altamente específicos e monoespecíficos, quanto soros humanos purificados por afinidade, demonstraram de forma definitiva uma intensa expressão de Neu5Gc no tecido humano de aparência normal aorta, na densa microvasculatura do cólon e da placenta e, principalmente, no endotélio que recobre diretamente as placas ateroscleróticas ativas.[5]
A gênese imunológica: preparação por microrganismos comensais e xenoautoanticorpos
A presença de uma molécula não humana ligada covalentemente a tecidos humanos representa um paradoxo imunológico excepcionalmente perigoso, classificado formalmente na literatura como um “xeno-autoantígeno”.[5] Como o Neu5Gc é biologicamente estranho (“xeno”) devido à nossa história evolutiva, o sistema imunológico humano o reconhece como estranho, mesmo estando fisicamente incorporado no contexto íntimo dos próprios padrões moleculares associados ao hospedeiro na superfície endotelial.[5,6]
A ontogenia da resposta imunológica
Uma ampla vigilância imunológica e testes epidemiológicos revelam um fato surpreendente: praticamente todos os adultos humanos normais e saudáveis possuem anticorpos policlonais anti-Neu5Gc circulantes e altamente ativos.[5,6,10] Esses repertórios de anticorpos altamente diversificados compreendem os isotipos imunoglobulina G (IgG), IgA e IgM, que têm como alvo uma ampla variedade de epítopos contendo Neu5Gc comumente encontrados em humanos células endoteliais.[5,6,10] É importante ressaltar que esses anticorpos não são anticorpos “naturais” codificados na linha germinativa (como aqueles que determinam o sistema de grupos sanguíneos ABO, que estão presentes independentemente de qualquer exposição específica).[5,10,18] Na verdade, elas requerem uma estimulação antigênica pós-natal específica e passam por um processo clássico de maturação de afinidade para atingir sua alta capacidade de ligação.[10,18]
Análises detalhadas do sangue do cordão umbilical de bebês demonstram a ausência total e absoluta de anticorpos anti-Neu5Gc (especificamente IgM) no momento do nascimento.[10,18] Os níveis de títulos permanecem indetectáveis nos primeiros meses de vida, o que constitui um forte argumento contra a hipótese de que a transferência transplacentária seja a principal fonte de imunidade de longo prazo.[10,18] No entanto, esses títulos de anticorpos começam a aumentar acentuada e consistentemente por volta dos seis meses de idade.[10,18] Essa linha do tempo precisa se correlaciona perfeitamente com a introdução de fórmulas à base de leite de vaca, produtos lácteos e o processo geral de desmame para alimentos sólidos, marcando a primeira exposição sistêmica do bebê ao Neu5Gc na alimentação.[8,10,18] Além disso, estudos epidemiológicos que analisaram exposições ambientais mais amplas demonstraram que crianças criadas em fazendas em atividade, que presumivelmente estão expostas a níveis ambientais significativamente mais elevados de antígenos de origem animal, apresentam níveis estatisticamente mais elevados de IgG anti-Neu5Gc circulante em comparação com crianças que não vivem em fazendas e residem em áreas urbanas.[8,18]
Primerização bacteriana por meio de Haemophilus influenzae
Surge uma questão crítica e mecanicista: como o sistema imunológico humano consegue gerar uma resposta de anticorpos tão robusta, duradoura e com afinidade amadurecida contra um simples açúcar alimentar, especialmente considerando que o Neu5Gc livre, quando isolado, é apenas fracamente imunogênico por si só?
A resposta está no fenômeno insidioso da mimetização molecular microbiana e da camuflagem bacteriana. Embora a síntese genética do Neu5Gc endógeno nunca tenha sido documentada em nenhum micróbio bacteriano, viral ou fúngico em toda a árvore da vida, certos patógenos comensais humanos altamente adaptados atuam como eficientes coletores moleculares.[14,21] Não tipificável Haemophilus influenzae (NTHi), uma bactéria comensal onipresente e específica do ser humano, além de ser um patógeno respiratório oportunista responsável por otite média e exacerbações respiratórias, possui um transportador periplasmático tripartido independente de ATP (TRAP) altamente especializado.[14,21] Esse sistema de transporte específico elimina com eficiência quantidades mínimas de Neu5Gc de origem alimentar do ambiente mucoso do hospedeiro.[14,21]
Uma vez captado do hospedeiro, o NTHi incorpora metabolicamente esse Neu5Gc diretamente em seus próprios lipooligossacarídeos (LOS) da superfície celular.[14,19,21] Essa sialilação bacteriana confere ao organismo uma vantagem de sobrevivência enorme, quase impenetrável. A integração do Neu5Gc em seu biofilme protetor aumenta significativamente a resistência da bactéria à destruição mediada pelo complemento pelo sistema imunológico inato do hospedeiro.[14,21] Isso é alcançado principalmente por meio da supressão da via clássica de ativação do complemento, impedindo ativamente que os anticorpos IgM do hospedeiro se liguem à superfície bacteriana e iniciem a lise.[14,21]
No entanto, esse sofisticado mecanismo de camuflagem bacteriana acarreta um custo grave e crônico para o hospedeiro humano. A apresentação do antígeno Neu5Gc na superfície altamente inflamatória e associada ao patógeno de uma bactéria patogênica atua como um adjuvante imunológico natural e intenso.[10,14,21] Quando o sistema imunológico humano, inevitavelmente, desencadeia uma resposta vigorosa e sistêmica contra a bactéria NTHi para eliminar a infecção, ele gera, simultaneamente, um vasto repertório de anticorpos anti-Neu5Gc com reatividade cruzada.[10,14,21] Atualmente, é amplamente aceito na área que essa sensibilização pós-natal, mediada por patógenos, atuando em constante interação com a exposição diária à carne vermelha na alimentação, forneça o sinal altamente inflamatório necessário para a produção e manutenção ao longo da vida de xenoautoanticorpos.[5,10,14,18]
Xenosialite: Os mecanismos da aterogênese
A convergência desastrosa entre a incorporação metabólica (que fornece o antígeno endotelial amplamente disseminado) e a ativação microbiana (que fornece o anticorpo circulante de alta afinidade) culmina em um estado contínuo e latente de inflamação vascular inflamação formalmente denominada “xenosialite”.[5] Esse processo patológico é particularmente insidioso porque o antígeno é continuamente reposto a cada refeição à base de carne vermelha consumida ao longo da vida, garantindo que o ciclo inflamatório nunca chegue a uma resolução biológica.
A fisiopatologia exata da xenosialite, particularmente no contexto direto da aceleração da aterosclerose, se desenrola em uma cascata sequencial e altamente coordenada de destruição celular:[5]
- Ligação antígeno-anticorpo: Os anticorpos policlonais humanos anti-Neu5Gc circulantes (principalmente dos isotipos IgG e IgA) examinam continuamente o endotélio vascular à medida que o sangue flui pela árvore arterial. Ao encontrarem um epítopo de Neu5Gc incorporado metabolicamente e exibido no delicado glicocalix endotelial, os anticorpos se ligam com alta afinidade, formando uma densa in situ complexo imune diretamente na parede do vaso.[5]
- Ativação da cascata do complemento: O agrupamento espacial das moléculas de IgG e IgA na superfície endotelial expõe suas regiões Fc (fragmento cristalizável) à corrente sanguínea. Essa disposição exposta constitui um local de ligação ideal para o complexo proteico C1q, o iniciador do sistema do complemento.[5,15] Isso desencadeia a cascata clássica do complemento, levando à deposição agressiva e sub-lítica de proteínas do complemento (como o C3b e o complexo de ataque à membrana) diretamente sobre o endotélio intacto e, de resto, saudável.[5]
- Ativação endotelial profunda: A forte deposição de proteínas do complemento, combinada com a reticulação mecânica dos receptores de superfície pelos anticorpos, empurra vigorosamente a célula endotelial de seu estado normal, quiescente e não trombogênico para um fenótipo altamente ativado e pró-inflamatório.[5] Sofisticado in vitro Modelos demonstram que a simples incubação de soros humanos de alto título com células endoteliais alimentadas com Neu5Gc provoca diretamente alterações maciças na sinalização intracelular, resultando na rápida exocitose dos corpos de Weibel-Palade e na rápida de novo transcrição de genes inflamatórios.[5]
- Secreção de citocinas e regulação positiva das selectinas: O endotélio recém-ativado começa a secretar quantidades abundantes de citocinas pró-inflamatórias, criando um gradiente quimiotático localizado destinado a atrair células imunológicas.[5] Ao mesmo tempo, as células aumentam rapidamente a expressão superficial de moléculas de adesão essenciais, especificamente a E-selectina e a P-selectina.[5] A P-selectina, em particular, é um mediador potente e amplamente reconhecido da tromboembolia recorrente e de distúrbios cardiovasculares, atuando para facilitar a adesão inicial por rolamento dos leucócitos circulantes à parede vascular.[23]
- Extravasamento de leucócitos e formação de placa: A forte presença de selectinas e a alteração do glicocálix levam à ligação de monócitos dependente de Neu5Gc.[5] Os monócitos circulantes deslizam ao longo do endotélio ativado, aderem firmemente por meio de interações de integrinas e realizam ativamente a diapedese (compressão) para dentro do espaço subendotelial (a túnica íntima). Uma vez retidos na parede arterial, esses monócitos hiperativos se transformam em residentes macrófagos, começam a engolir agressivamente as lipoproteínas de baixa densidade oxidadas (LDL), e se transformam em enormes células espumosas. O acúmulo e a subsequente morte apoptótica dessas células espumosas constituem a base, altamente trombogênica núcleo necrótico da placa aterosclerótica.[5]
- Ciclos de amplificação sinérgica: Essa cascata destrutiva não ocorre isoladamente; ela é ainda mais amplificada por estados inflamatórios sistêmicos. A presença do Fator de Necrose Tumoral alfa (TNF-α), uma citocina pró-inflamatória onipresente e altamente potente, cuja expressão costuma aumentar durante surtos de dano vascular generalizado ou síndrome metabólica, aumenta de forma seletiva e potente a reatividade dos anticorpos humanos anti-Neu5Gc, criando um ciclo de retroalimentação positiva e cumulativa de destruição vascular.[5] Além disso, ferro heme, altamente concentrado na carne vermelha, exerce seus próprios efeitos pró-inflamatórios e oxidativos independentes, que agravam o estresse endotelial desencadeado pelos glicanos.[22,23]
| Estágio da patogênese | Ator celular/molecular | Ação e consequência |
| 1. Identificação do alvo | Neu5Gc endotelial e IgG/IgA circulantes | Formação de complexos imunes in situ na parede arterial, que, de resto, está saudável. |
| 2. Iniciação em cascata | Proteína C1q do complemento | Liga-se às regiões Fc dos anticorpos, desencadeando a deposição clássica do complemento. |
| 3. Mudança celular | Célula endotelial | Transição de um estado quiescente para um fenótipo ativado e pró-inflamatório. |
| 4. Alteração da superfície | E-selectina e P-selectina | Regulação positiva maciça na superfície celular, atuando como pontos de fixação para as células imunológicas. |
| 5. Infiltração | Monócitos / Macrófagos | Adesão, diapedese para a túnica íntima e subsequente transformação em células espumosas carregadas de lipídios. |
| 6. Maturação da placa bacteriana | Células espumosas e citocinas | O acúmulo cria o núcleo necrótico; a liberação de citocinas (TNF-α) amplifica ainda mais a reatividade dos anticorpos. |
Quantificando o risco: evidências incontestáveis a partir de modelos de camundongos humanizados
Para isolar, verificar e quantificar rigorosamente a contribuição específica da perda evolutiva do CMAH para as doenças cardiovasculares — separando-a expressamente da miríade de fatores de confusão relacionados ao estilo de vida inerentes à existência humana moderna (tais como tabagismo, sedentarismo e consumo de açúcar refinado) — os pesquisadores desenvolveram um modelo animal transgênico complexo e altamente específico: o modelo semelhante ao humano Cmah^-/- Ldlr^-/- mouse.[1]
Camundongos de laboratório do tipo selvagem (Cmah^+/+) produzem Neu5Gc de forma natural e abundante e, assim como praticamente todos os outros mamíferos, não sofrem de xenosialite.[1] Para recriar com precisão a condição humana, os pesquisadores utilizaram a engenharia genética para desativar tanto o Cmah gene (que imita perfeitamente a perda evolutiva ocorrida nos seres humanos há 2 a 3 milhões de anos) e o Ldlr Gene do receptor de lipoproteínas de baixa densidade. O Ldlr A inativação gênica é um procedimento padrão necessário para induzir a suscetibilidade basal à aterosclerose induzida pela dieta em camundongos, permitindo que os pesquisadores avaliem as variações na formação de placas ao longo de períodos experimentais razoáveis.[1]
Os dados experimentais derivados desses modelos resultaram em duas quantificações distintas e altamente significativas da progressão da doença, separando de forma clara o risco em dois componentes: o multiplicador de risco intrínseco (a penalidade genética de ser humano) e o multiplicador de risco extrínseco (a penalidade alimentar decorrente do consumo de carne vermelha).
O Risco Intrínseco (A Penalidade Humana de Referência)
Na primeira fase do experimento, cuidadosamente controlada, os pesquisadores alimentaram tanto o grupo de controle do tipo selvagem Cmahcamundongos ^+/+ e os semelhantes aos humanos Cmah^-/- camundongos knockout receberam uma dieta rica em gordura idêntica e altamente controlada, totalmente isenta de todos os ácidos siálicos (uma dieta sem Sias).[1] Os resultados foram impressionantes: mesmo na ausência absoluta e total de Neu5Gc na alimentação, o ser semelhante ao ser humano CmahOs camundongos ^-/- apresentaram um aumento 1,9 vezes maior e altamente significativo na aterogênese, quando comparados diretamente aos controles do tipo selvagem.[1]
Essa quase duplicação da formação de placa em um ambiente controlado permitiu isolar o custo biológico intrínseco da mutação CMAH.[1] Análises histológicas e bioquímicas aprofundadas revelaram que a perda do gene alterou fundamentalmente a fisiologia basal do organismo. O CmahOs camundongos ^-/- apresentaram níveis altamente elevados de expressão de citocinas nos macrófagos, tornando seus glóbulos brancos inerentemente hiperativos, hipersensíveis e propensos a reações inflamatórias exageradas, mesmo sem um antígeno específico que as desencadeasse.[1] Além disso, a mutação induziu diretamente um aumento hiperglicemia e uma forte tendência metabólica à diabetes, elevando significativamente o seu HOMA-IR (Avaliação do Modelo Homeostático para Resistência à Insulina) pontuações.[1] Essa disfunção sistêmica intrínseca de base explica de forma elegante por que mesmo vegetarianos e veganos estritos — que não consomem absolutamente nenhuma carne vermelha e, muitas vezes, não apresentam fatores de risco tradicionais, como colesterol alto — continuam significativamente mais propensos a ataques cardíacos inexplicáveis e derrames do que chimpanzés em cativeiro com alimentação inadequada.[1,2] Estamos geneticamente predispostos a um nível mais elevado de inflamação.
O risco extrínseco (a penalidade da carne vermelha)
Na segunda fase crítica do estudo, os pesquisadores procuraram replicar o mecanismo completo e cumulativo do consumo de carne vermelha humana e da xenosialite. Primeiramente, eles imunizaram o modelo semelhante ao humano Cmah^-/- camundongos com antígenos especializados portadores de Neu5Gc (utilizando o adjuvante completo de Freund) para gerar anticorpos anti-Neu5Gc circulantes e com afinidade amadurecida, imitando perfeitamente o perfil imunológico humano desenvolvido após o desmame.[1] Posteriormente, esses camundongos imunizados e humanizados foram alimentados com uma dieta rica em gordura, especificamente enriquecida com altos níveis de Neu5Gc (simulando uma dieta rica e prolongada à base de carne vermelha).[1]
Os resultados patológicos foram dramáticos e inequívocos. Os camundongos imunizados e alimentados com Neu5Gc apresentaram um aumento maciço de 2,4 vezes na gravidade da aterosclerose em comparação com os camundongos do grupo controle, alimentados com uma dieta rica em Neu5Ac ou com uma dieta rica em gordura totalmente isenta de Sias.[1] Foi realizada uma quantificação rigorosa da aterosclerose aórtica: os camundongos foram sacrificados, submetidos a perfusão, e suas aortas foram dissecadas e fixadas em posição plana. A coloração com Sudão IV para medir a carga lipídica total, juntamente com criossecções em série do seio aórtico coradas com tricrômico de Masson, revelou um estágio substancialmente mais avançado lesões, áreas centrais necróticas altamente expansivas e colágeno patológico denso fibra deposição.[1]
É importante ressaltar que essa aceleração agressiva de 2,4 vezes na formação de placas não pôde ser explicada por alterações subsequentes nos níveis de lipoproteínas no sangue, colesterol total parâmetros, ou glicose métricas.[1] Os lipídios sanguíneos permaneceram praticamente idênticos entre as coortes experimentais; a destruição cardiovascular em grande escala foi inteiramente e explicitamente causada pela destruição inflamatória localizada do endotélio, mediada por anticorpos — a manifestação pura e inalterada da xenosialite.[1]
Correlações clínicas e patologias sistêmicas mais amplas
A natureza insidiosa da integração do Neu5Gc e da subsequente xenosialite vai muito além dos parâmetros microscópicos de modelos isolados em camundongos; ela se manifesta amplamente em fenômenos clínicos observáveis e contribui para um amplo espectro de patologias sistêmicas humanas. O mecanismo não se limita às principais artérias coronárias mas afeta toda a árvore vascular.
Indicadores diagnósticos: Sinal de Frank e degradação microvascular
A natureza sistêmica e onipresente do dano endotelial causado pela xenosialite pode, de fato, se refletir em leitos microvasculares externos altamente visíveis. Clinicamente, a presença de um sulco diagonal no lóbulo da orelha (DELC) — conhecido na literatura médica pelo nome de “sinal de Frank” — foi firmemente e repetidamente estabelecida como um preditor independente de doença arterial coronariana e doença vascular periférica.[25,26] Essa correlação se mantém válida de forma totalmente independente dos fatores de risco comumente conhecidos, como hipertensão, diabetes, hiperlipidemia e tabagismo.[25,26]
Há fortes indícios de que a etiologia subjacente ao sinal de Frank seja um processo paralelo entre a doença microvascular sistêmica e o enfraquecimento acelerado, relacionado à idade, de elastina e fibras de colágeno presentes simultaneamente tanto nos leitos vasculares do lóbulo da orelha quanto nas artérias coronárias.[25,26] Dada a ampla distribuição sistêmica do Neu5Gc no glicocálix humano, particularmente na microvasculatura densa, a inflamação crônica de baixo grau da xenosialite provavelmente acelera exatamente esse mecanismo de degradação microvascular.[5] A formação contínua de complexos imunes e a deposição de complemento prejudicam a delicada proporção entre colágeno e elastina, proporcionando uma ligação bioquímica unificadora e altamente plausível a esse marcador diagnóstico macroscópico visível.[25,26]
Anticorpos circulantes e vasculite sistêmica aguda
O potencial patogênico dos anticorpos anti-Neu5Gc é ainda mais evidenciado em doenças vasculares agudas e devastadoras em seres humanos. Títulos elevados de anticorpos anti-Neu5Gc são observados de forma proeminente e consistente na doença de Kawasaki, uma vasculite sistêmica infantil aguda, febril e frequentemente grave que afeta principalmente as artérias coronárias.[24] Notavelmente, são detectados níveis mais elevados de anticorpos circulantes em pacientes que apresentam artérias coronárias morfologicamente normais, em comparação com aqueles que sofrem de complicações graves em estágio avançado, como aneurismas maciços ou artérias coronárias dilatadas.[24] Essa correlação aparentemente inversa sugere uma patogênese consumptiva: durante as fases inflamatórias agudas e intensas, grandes volumes de anticorpos anti-Neu5Gc circulantes podem ser rapidamente consumidos, ligando-se fortemente e sendo sequestrados nos locais de dano vascular ativo nas paredes coronárias. Isso reduz efetivamente o título circulante mensurável na coleta de sangue, enquanto os anticorpos impulsionam ativamente a patologia nas camadas mais profundas da parede arterial.[24]
Além disso, níveis elevados de anticorpos da classe IgA, direcionados especificamente contra antígenos alimentares, foram identificados diretamente no soro de indivíduos com aterosclerose grave, em comparação com um grupo de controle de indivíduos saudáveis altamente selecionados.[27] Essa descoberta ressalta a ligação íntima e inseparável entre os antígenos alimentares de origem intestinal, a hipersensibilidade imunológica sistêmica e o resultado final placa arterial fardo.[27] O mecanismo não se limita às doenças cardiovasculares; a incorporação de Neu5Gc também está fortemente associada à biologia do câncer. Como o Neu5Gc se acumula preferencialmente em tecidos malignos devido às rápidas taxas de crescimento tumoral, às taxas elevadas de micropinocitose e à regulação positiva hipóxica do transportador de sialina, a xenosialite proporciona um microambiente tumoral inflamatório crônico que promove diretamente a carcinogênese, angiogênese, e metástase.[8,22]
A ameaça iminente da reatividade cruzada viral
Uma área de estudo emergente e de grande importância envolve a interação do paradigma pré-existente da xenosialite com infecções virais agudas e graves. Quando os seres humanos desenvolvem respostas imunológicas maciças e intensas com a produção de anticorpos contra patógenos virais envelopados (como o SARS-CoV-2 ou o vírus da gripe A), os anticorpos antivirais neutralizantes resultantes podem, inadvertidamente, agravar doenças vasculares subjacentes.[15] Como os vírus envelopados utilizam o próprio mecanismo de glicosilação celular do hospedeiro para sintetizar seus envelopes virais, os vírions recém-formados ficam revestidos pelos ácidos siálicos que a célula hospedeira estiver expressando.[15] Em um ser humano que consome carne vermelha, esses envelopes virais estarão repletos de Neu5Gc.[15]
Consequentemente, a enorme onda de anticorpos antivirais neutralizantes produzida durante a infecção pode apresentar reação cruzada indiscriminada com epítopos xenosialilados (que contêm Neu5Gc) espalhados pelos próprios tecidos endoteliais saudáveis do hospedeiro.[15] Essa reatividade cruzada de anticorpos, generalizada e sistêmica, tem o potencial de agravar ainda mais o quadro pré-existente de xenosialite.[15] A tempestade hiperinflamatória resultante leva a coagulopatias graves e disseminadas, tempestades de citocinas fatais e danos endoteliais profundos e generalizados.[15] Essa hipótese explica de forma elegante por que a saúde cardiovascular basal e os hábitos alimentares são determinantes tão profundos e preponderantes da mortalidade durante síndromes respiratórias virais agudas, já que a infecção viral basicamente aciona o barril de pólvora latente da xenosialite induzida pela alimentação.[15]
Intervenções terapêuticas e horizontes científicos futuros
Compreender a complexa mecânica da integração do Neu5Gc não apenas resolve um grande enigma evolutivo e epidemiológico, mas também abre caminhos terapêuticos altamente inovadores e viáveis. Essas intervenções visam mitigar ativamente o risco cardiovascular, indo além do paradigma atual da medicina tradicional estatina terapia, inibição plaquetária e pressão arterial gerenciamento.
Intervenções alimentares com ácido siálico e inibição competitiva
A intervenção mais imediata e biologicamente adequada é a modulação direta do perfil de ácido siálico na alimentação. Dados experimentais demonstram inequivocamente que a intervenção na via bioquímica pode interromper rapidamente ou até mesmo reverter a aceleração da aterosclerose.[4] No estudo amplamente validado Cmah^-/- modelo de camundongo semelhante ao humano: a simples mudança da dieta dos animais de uma dieta rica em gordura e Neu5Gc para uma dieta rica em gordura, mas sem Neu5Gc, protegeu ativamente contra a aterogênese acelerada.[4]
Surpreendentemente, a adição de uma quantidade enorme de Neu5Ac (o ácido siálico endógeno e seguro do ser humano) — cinco vezes maior do que o normal — a uma dieta rica em gordura conseguiu efetivamente suplantar o perigoso Neu5Gc na captação e utilização celular, mitigando assim o risco de inflamação.[4] Além disso, a alimentação com uma dieta enriquecida com Neu5Ac protegeu intrinsecamente contra a aterosclerose em Ldlrcamundongos ^-/- mesmo na ausência total de Neu5Gc na dieta, desde que o hospedeiro possuísse o Cmah- um fundo genético “null”, o que sugere que a injeção em grande quantidade do açúcar “correto” no sistema estabiliza ativamente o endotélio humano.[4]
Atualmente, estão sendo investigadas intensamente fontes de Neu5Ac altamente concentrado e biodisponível. Colocações Os extratos mucoides, comumente conhecidos como “ninho de pássaro comestível”, são extraordinariamente ricos em Neu5Ac natural.[4] Estudos de digestão bioquímica mostram que o preparo culinário adequado, especificamente o controle da temperatura do cozimento, maximiza a decomposição dos glicopeptídeos de alto peso molecular presentes no ninho, transformando-os em fragmentos livres de Neu5Ac de baixo peso molecular e altamente absorvíveis.[4] Isso otimiza sua biodisponibilidade, permitindo que ele entre na corrente sanguínea em altas concentrações para atuar como um inibidor competitivo contra o Neu5Gc presente na alimentação.[4]
Engenharia do microbioma e clivagem enzimática industrial
Um segundo horizonte terapêutico altamente inovador envolve a manipulação direta da alimentação por meio dos próprios mecanismos bioquímicos desenvolvidos pela microbiota intestinal. A recente descoberta de sialidases bacterianas específicas (derivadas de Bacteroidales e Clostridiales) que apresentam uma preferência enzimática avassaladora e altamente específica pela clivagem do Neu5Gc em detrimento do Neu5Ac representam uma enorme oportunidade industrial e médica.[17]
Essas enzimas potentes, capazes de liberar com eficiência o Neu5Gc ligado a glicoproteínas complexas da carne vermelha, poderiam ser utilizadas no processamento industrial de produtos cárneos antes da venda no varejo.[17] Ao submeter a carne vermelha de mamíferos a um pré-tratamento com essas sialidases bacterianas recombinantes específicas, seria possível “remover” efetivamente o Neu5Gc ligado à carne.[17] Como o Neu5Gc livre e não ligado é mal absorvido pelo intestino e é eliminado de forma rápida e segura pelo sistema renal por meio da urina, o Neu5Gc perigoso e ligado é convertido em Neu5Gc livre e inofensivo diretamente no matriz alimentar poderia reduzir drasticamente o risco de doenças inflamatórias.[11,16] Essa abordagem interromperia efetivamente a cadeia bioquímica que leva à xenosialite, sem exigir a abstinência alimentar total de carne vermelha em toda a população.[17,20]
Conclusão
A profunda interseção entre a biologia evolutiva, os mecanismos de glicosilação intracelular, a imunologia e os hábitos alimentares modernos oferece uma explicação abrangente e molecularmente precisa para a predisposição exclusivamente humana às doenças cardiovasculares. O sistema cardiovascular humano opera sob uma desvantagem genética permanente e intrínseca — o legado indelével da pseudogenização do CMAH mediada por Alu, ocorrida há milhões de anos. Embora essa mutação dramática provavelmente tenha salvado nossos ancestrais hominídeos de uma extinção parasitária catastrófica causada pela malária, ela deixou o glicocalix humano moderno permanentemente alterado e altamente vulnerável.
O consumo regular de carne vermelha de mamíferos introduz quantidades enormes e não naturais do ácido siálico “perdido”, o Neu5Gc, diretamente no trato gastrointestinal humano. Lá, sialidases bacterianas especializadas liberam a molécula, permitindo que ela seja absorvida. Por meio de um trágico caso de mimetismo molecular, o aparato celular humano incorpora indiscriminadamente esse glicano estranho por meio do transportador de sialina, apresentando-o covalentemente na superfície luminal do endotélio vascular. Preparado pela exposição alimentar nos primeiros anos de vida e pela contínua captação molecular por patógenos comensais como o Nontypeable Haemophilus influenzae, o sistema imunológico humano reconhece o endotélio alterado como uma ameaça estranha. A consequente enxurrada incessante e ao longo da vida de anticorpos policlonais IgG e IgA desencadeia a deposição clássica do complemento, a expressão maciça de selectinas, a extravasão de monócitos e a formação contínua e latente de placas.
Esse mecanismo amplamente validado, denominado xenosialite, explica de forma clara e completa os 15% casos de aterosclerose clínica que ocorrem em pacientes totalmente desprovidos de fatores de risco tradicionais. Ele explica de forma impecável a enorme aceleração de 2,4 vezes na aterogênese observada em modelos animais controlados após o consumo de carne vermelha e esclarece por que os chimpanzés — nossos parentes evolutivos mais próximos, com perfis lipídicos idênticos — permanecem imunes à aterosclerose coronariana. Daqui para frente, intervenções voltadas para a suplementação competitiva de Neu5Ac e a clivagem enzimática industrial de Neu5Gc na cadeia alimentar oferecem a promessa sem precedentes de anular esse antigo compromisso evolutivo, alterando fundamentalmente o panorama da medicina preventiva cardiovascular e redefinindo nossa compreensão da patologia induzida pela dieta.
Referências
- Kawanishi K, Dhar C, Do R, Varki N, Gordts PLSM, Varki A. Human species-specific loss of CMP-N-acetylneuraminic acid hydroxylase enhances atherosclerosis via intrinsic and extrinsic mechanisms. Proc Natl Acad Sci U S A. 2019;116(32):16036-16045. doi:10.1073/pnas.1902902116
- Baldessari A, Snyder J, Ahrens J, Murnane R. Fatal myocardial fibrosis in an aged chimpanzee (Pan troglodytes).
- Banda K, Gregg CJ, Chow R, Varki NM, Varki A. Metabolism of vertebrate amino sugars with N-glycolyl groups: mechanisms underlying gastrointestinal incorporation of the non-human sialic acid xeno-autoantigen N-glycolylneuraminic acid.
- Kawanishi K, Coker JK, Grunddal KV, et al. Dietary Neu5Ac Intervention Protects Against Atherosclerosis Associated With Human-Like Neu5Gc Loss-Brief Report.
- Dhar C, Sasmal A, Varki A. From “Serum Sickness” to “Xenosialitis”: Past, Present, and Future Significance of the Non-human Sialic Acid Neu5Gc.
- Lewis AL, Chen X, Schnaar RL, Varki A. Sialic Acids and Other Nonulosonic Acids. In: Varki A, Cummings RD, Esko JD, et al., eds.
- Varki A. Sialic acids in human health and disease.
- Altman MO, Gagneux P. Absence of Neu5Gc and Presence of Anti-Neu5Gc Antibodies in Humans-An Evolutionary Perspective. Front Immunol. 2019;10:789. Published 2019 Apr 30. doi:10.3389/fimmu.2019.00789
- Varki A. Colloquium paper: uniquely human evolution of sialic acid genetics and biology. Proc Natl Acad Sci U S A. 2010;107 Suppl 2(Suppl 2):8939-8946. doi:10.1073/pnas.0914634107
- Padler-Karavani V, Yu H, Cao H, et al. Diversity in specificity, abundance, and composition of anti-Neu5Gc antibodies in normal humans: potential implications for disease. Glycobiology. 2008;18(10):818-830. doi:10.1093/glycob/cwn072
- Bardor M, Nguyen DH, Diaz S, Varki A. Mechanism of uptake and incorporation of the non-human sialic acid N-glycolylneuraminic acid into human cells. J Biol Chem. 2005;280(6):4228-4237. doi:10.1074/jbc.M412040200
- Varki A. Multiple changes in sialic acid biology during human evolution. Glycoconj J. 2009;26(3):231-245. doi:10.1007/s10719-008-9183-z
- Dubois L, Pietrancosta N, Cabaye A, et al. Amino Acids Bearing Aromatic or Heteroaromatic Substituents as a New Class of Ligands for the Lysosomal Sialic Acid Transporter Sialin. J Med Chem. 2020;63(15):8231-8249. doi:10.1021/acs.jmedchem.9b02119
- Apicella MA. Nontypeable Haemophilus influenzae: the role of N-acetyl-5-neuraminic acid in biology. Front Cell Infect Microbiol. 2012;2:19. Published 2012 Mar 13. doi:10.3389/fcimb.2012.00019
- Taylor RE, Gregg CJ, Padler-Karavani V, et al. Novel mechanism for the generation of human xeno-autoantibodies against the nonhuman sialic acid N-glycolylneuraminic acid. J Exp Med. 2010;207(8):1637-1646. doi:10.1084/jem.20100575
- Verheijen FW, Verbeek E, Aula N, et al. A new gene, encoding an anion transporter, is mutated in sialic acid storage diseases. Nat Genet. 1999;23(4):462-465. doi:10.1038/70585
- Zaramela LS, Martino C, Alisson-Silva F, et al. Gut bacteria responding to dietary change encode sialidases that exhibit preference for red meat-associated carbohydrates. Nat Microbiol. 2019;4(12):2082-2089. doi:10.1038/s41564-019-0564-9
- Padler-Karavani V, Hurtado-Ziola N, Pu M, et al. Human xeno-autoantibodies against a non-human sialic acid serve as novel serum biomarkers and immunotherapeutics in cancer. Cancer Res. 2011;71(9):3352-3363. doi:10.1158/0008-5472.CAN-10-4102
- Vimr ER, Kalivoda KA, Deszo EL, Steenbergen SM. Diversity of microbial sialic acid metabolism. Microbiol Mol Biol Rev. 2004;68(1):132-153. doi:10.1128/MMBR.68.1.132-153.2004
- Tailford LE, Crost EH, Kavanaugh D, Juge N. Mucin glycan foraging in the human gut microbiome. Front Genet. 2015;6:81. Published 2015 Mar 19. doi:10.3389/fgene.2015.00081
- Samraj AN, Pearce OM, Läubli H, et al. A red meat-derived glycan promotes inflammation and cancer progression. Proc Natl Acad Sci U S A. 2015;112(2):542-547. doi:10.1073/pnas.1417508112
- Hull SC, Mszar R, Ostfeld RJ, et al. Diet and Prevention of Cardiovascular Disease and Cancer: JACC: CardioOncology State-of-the-Art Review. JACC CardioOncol. 2025;7(6):649-667. doi:10.1016/j.jaccao.2025.07.008
- Evrengül H, Dursunoğlu D, Kaftan A, et al. Bilateral diagonal earlobe crease and coronary artery disease: a significant association. Dermatology. 2004;209(4):271-275. doi:10.1159/000080847
- Padler-Karavani V, Tremoulet AH, Yu H, Chen X, Burns JC, Varki A. A simple method for assessment of human anti-Neu5Gc antibodies applied to Kawasaki disease. PLoS One. 2013;8(3):e58443. doi:10.1371/journal.pone.0058443
- Shmilovich H, Cheng VY, Rajani R, et al. Relation of diagonal ear lobe crease to the presence, extent, and severity of coronary artery disease determined by coronary computed tomography angiography. Am J Cardiol. 2012;109(9):1283-1287. doi:10.1016/j.amjcard.2011.12.024
- Gakovic B, Neskovic SA, Vranic I, et al. The relationship of diagonal earlobe crease (Frank’s sign) and obstructive coronary artery disease in patients undergoing coronary angiography. Wien Klin Wochenschr. 2023;135(23-24):667-673. doi:10.1007/s00508-023-02297-y
- Muscari A, Volta U, Bonazzi C, et al. Association of serum IgA antibodies to milk antigens with severe atherosclerosis. Atherosclerosis. 1989;77(2-3):251-256. doi:10.1016/0021-9150(89)90088-9

