Herz-Kreislauf-Erkrankung (Herz-Kreislauf-Erkrankungen) bleiben die formidabelste Herausforderung für die öffentliche Gesundheit in der modernen Ära, da sie die Hauptursache für die globale Sterblichkeit sind und weltweit für etwa ein Drittel aller Todesfälle verantwortlich sind.1Das kanonische Verständnis von Atherosklerosedie fortschreitende, schleichende Verengung und Verhärtung von Arteriengefäßen durch fibrofettige Plaques Plaque Aussage – führt die Pathogenese auf eine Konstellation gut bekannter, überwiegend beeinflussbarer zurück Risikofaktoren. Diese klassischen Determinanten umfassen systemische Bluthochdruck, Dyslipidämie (insbesondere erhöhtes Low-Density-Lipoprotein-Cholesterin Lipoprotein Cholesterin), Typ 2 Diabetes Mellitus, Adipositas, körperliche Inaktivität, fortgeschrittenes Alter und Tabakkonsum.1] Doch eine hartnäckige und tief verwirrend Ein epidemiologisches Paradoxon stellt seit langem die absolute Vollständigkeit dieses traditionellen Paradigmas in Frage: Etwa 15% der erstmalig auftretenden kardiovaskulären Ereignisse, darunter katastrophale Myokardinfarkte und zerebrovaskuläre Unfälle treten bei Patienten auf, die absolut keine dieser etablierten Risikofaktoren aufweisen.1]
Diese tiefgreifende klinische Anomalie wird durch das Fachgebiet der artübergreifenden vergleichenden Kardiologie weiter kompliziert und beleuchtet. Bei der Betrachtung des breiteren Säugetierreichs sind spontan auftretende Koronarthrombosen und Myokardinfarkte, angetrieben durch atheromatöse Plaque-Ruptur bei anderen Arten als dem Menschen praktisch nicht existent.1Diese Resistenz zeigt sich bemerkenswert konstant selbst bei unseren nächsten evolutionären Verwandten, den nicht-menschlichen Hominiden. In Gefangenschaft lebende Schimpansen teilen häufig einen menschenähnlichen, sitzenden Lebensstil und weisen auffallend ähnliche physiologische Störungen auf, darunter ausgeprägte Hyperlipidämie, fortgeschrittenes Alter und systemische Hypertonie.1Doch trotz des Besitzes eines menschlichen CVD-Risiko-anfälligen Blutes Lipidprofile und Hinweisen auf eine milde, frühstadiumartige Atherosklerose leiden diese Primaten selten an tödlichen atherosklerotischen Herz-Kreislauf-Ereignissen.2] Wenn katastrophal kardiale Ereignisse treten in Schimpansenpopulationen auf, aber strenge Post-mortem-Analysen zeigen, dass ihre Herzanfälle werden überwiegend von einem bislang ungeklärten interstitielle Myokardfibrose—einer diffusen Vernarbung des Herzmuskels — anstelle der kanonischen Ruptur atheromatöser Plaque und der anschließenden Thrombose beim Menschen beobachtet.2] Darüber hinaus, während schwere rotes Fleisch Der Konsum ist ein universell anerkannter epidemiologischer Verstärker des CVD-Risikos in menschlichen Populationen, dieses exakte Ernährungsmuster provoziert jedoch nicht Atherogenese bei anderen karnivoren oder omnivoren Säugetieren.2]
Diese tiefgreifende Abweichung weist unerbittlich auf eine artspezifische, intrinsische genetische Prädisposition für Atherosklerose beim Menschen hin.1Der Kern dieser einzigartigen Anfälligkeit liegt nicht streng allein im Lipidstoffwechsel, der hämodynamischen Schubspannung oder verhaltensbezogenen Variablen, sondern in einer urtümlichen evolutionären genetischen Anomalie, die die grundlegende Biologie der Zelloberfläche betrifft Glykane. Insbesondere ist die kardiovaskuläre Anfälligkeit des Menschen untrennbar mit einem evolutionären Verlust der Synthesefähigkeit verbunden N-Glycolylneuraminsäure (Neu5Gc), einer allgegenwärtigen Säugetier-Sialsäure.1Trotz dieses tiefgreifenden genetischen Defizits führt der menschliche Verzehr von Neu5Gc-reichem rotem Fleisch zu einem metabolischen Einbau dieses nicht-menschlichen Glykans direkt in menschliche Gewebe, insbesondere in das Gefäßsystem. Endothel.[3,4] Die anschließende immunologische Erkennung dieses eingebauten Zuckers als “Xenoautoantigen”löst eine chronische, schwelende Entzündungskaskade aus, die als “Xenosialitis.”[5]
Dieser erschöpfende Forschungsbericht erläutert die äußerst komplexen evolutionsbiologischen, biochemischen und immunologischen Mechanismen, die der Xenosialitis-Hypothese zugrunde liegen. Durch die Erforschung der genomischen Deletion des CMAH-Gen, die komplexe mikrobiomvermittelte Verdauung von Nahrungsbestandteilen Neu5Gc, die molekulare Kapernierung menschlicher intrazellulärer Glykosylierungswege und die daraus resultierende polyklonale Antikörper-vermittelte Endothelschädigung liefert diese Analyse ein umfassendes Verständnis dafür, warum Menschen einzigartig anfällig für mit rotem Fleisch assoziierte Atherosklerose sind und wie genau dieser Mechanismus das kardiovaskuläre Risiko über die Lebensspanne hinweg messbar erhöht.
Das evolutionäre Paradigma: Die CMAH-Genmutation und der Ursprung des Menschen
Die Grundlagenbiologie der Sialsäuren
Um das Ausmaß und die Konsequenz des menschlichen genetischen Defekts präzise zu erfassen, muss man zunächst die physiologische und strukturelle Rolle von Sialinsäuren in der Wirbeltierbiologie. Die Oberflächen aller Wirbeltierzellen sind eng mit einer dichten, komplexen und hochregulierten Anordnung von Zuckerketten bedeckt, die überwiegend an integrale Membranen gebunden sind Proteine und Oberflächenlipiden zur Bildung der Glyokalyx.[6,7Die meisten löslichen, sekretierten Proteine, die den menschlichen Blutkreislauf passieren, sind ebenfalls in ähnlicher Weise mit solchen spezialisierten Glykanen versehen.6,7Neuraminsäuren stellen eine vielfältige Familie hochmodifizierter Monosaccharide dar, die auf einem Neunkohlenstoff-Grundgerüst aufgebaut sind, und sie befinden sich typischerweise am äußersten, terminalen Ende dieser Glyanketten.6,7]
Aufgrund ihrer distalen Position auf Glykoproteinen und Glykolipiden, in Kombination mit ihrer starken elektronegativen Ladung beim physiologischen pH-Wert, spielen Sialsäuren eine unentbehrliche und vielschichtige Rolle bei der Vermittlung der Zell-Zell-Adhäsion, der Modulation von Rezeptor-Ligand-Wechselwirkungen und der Stabilisierung der Endotheliale Glykokalyx Barriere, und die Regulierung der immunologischen Selbsterkennung über spezifische Sialinsäure-bindende Lektine (Siglecs).6,8]
Bei der überwiegenden Mehrheit der Säugetierarten und tatsächlich bei den meisten landlebenden Wirbeltieren sind die beiden vorherrschenden Formen von Sialsäure N-Acetylneuraminsäure (Neu5Ac) und ihr direktes hydroxyliertes Derivat N-Glycolylneuraminsäure (Neu5Gc).[6,7Diese beiden Moleküle sind strukturell nahezu identisch und unterscheiden sich nur durch das Vorhandensein eines einzigen Sauerstoffatoms.5Der biochemische Übergang von der Vorstufe Neu5Ac zum Derivat Neu5Gc wird ausschließlich durch ein einziges, hochspezifisches Enzym katalysiert: die Cytidin-Monophosphat-N-acetylneuraminsäure-Hydroxylase (CMAH).1,3Dieses kritische Enzym wirkt auf den Nukleotid-Zucker-Donor CMP-Neu5Ac im zellulären Zytosol und katalysiert eine Monooxygenasereaktion, die eine Hydroxylgruppe anfügt, um CMP-Neu5Gc zu erzeugen.6,7Sowohl CMP-Neu5Ac als auch CMP-Neu5Gc werden anschließend aus dem Cytosol in das Lumen des Golgi-Apparates, wo sie als primäre Nukleotidzucker-Donoren für die Addition an neu synthetisierte Glycokonjugate.[6,7Folglich weisen normale Säugetiergewebe auf ihren Zelloberflächen ein reichhaltiges, durchsetztes und hochfunktionales Mosaik aus sowohl Neu5Ac als auch Neu5Gc auf.6,7]
| Funktion | N-Acetylneuraminsäure (Neu5Ac) | N-Glycolylneuraminsäure (Neu5Gc) |
| Strukturelles Rückgrat | 9-Kohlenstoff-Monosaccharid | 9-Kohlenstoff-Monosaccharid |
| Chemischer Unterschied | Besitzt eine N-Acetylgruppe | Besitzt eine N-Glycolylgruppe (Anfügung eines Sauerstoffatoms) |
| Biosynthetischer Ursprung | De novo synthetisiert in allen Wirbeltieren | Synthetisiert aus Neu5Ac über das CMAH-Enzym |
| Status bei Menschen | Die vorherrschende, endogene menschliche Sialsäure | Genetisch abwesend; als “fremd” betrachtet” Xenoantigen |
| Säugetierverbreitung | Überall bei Säugetierarten verbreitet | Allgegenwärtig bei nicht-menschlichen Säugetieren; beim Menschen nicht vorhanden |
Das Alu-vermittelte Pseudogenisierungsereignis
Menschen stellen jedoch innerhalb der Säugetierlinie eine krasse und folgenschwere Anomalie dar. Normale, gesunde menschliche Gewebe sind genetisch und grundsätzlich nicht in der Lage, Neu5Gc zu synthetisieren.5Diese biochemische Verkürzung ist keine regulatorische Unterdrückung, sondern die direkte Konsequenz einer speziespezifischen, irreversiblen Mutation innerhalb des CMAH-Gens selbst.1,3]
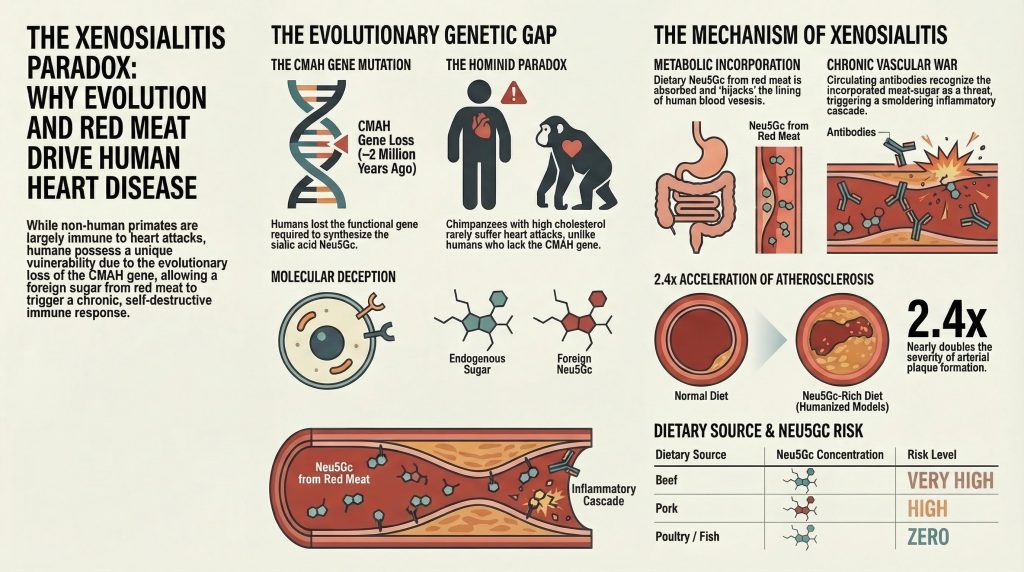
Paläogenomische Schätzungen und vergleichende phylogenetische Analysen zeigen, dass vor etwa 2 bis 3 Millionen Jahren – einer zeitlichen Epoche, die dem Aufkommen der Gattung Homosexueller von unseren homininen Vorfahren – ereignete sich ein kritisches genomisches Ereignis.1,9,12] An Alu-Transposon, eine in Primatengenomen häufig vorkommende Art von “springendem Gen”, hat sich in den CMAH-Genlokus eingefügt. Diese Insertion vermittelte eine katastrophale Rasterverschiebungsldeletion eines kritischen 92 Basenpaare langen Exons innerhalb des CMAH-Gens, was zu einem vorzeitigen Stoppcodon und dem völligen Pseudogenisierung (vollständige Inaktivierung) des Lokus.9,12Da die enzymatische Reaktion von CMP-Neu5Ac zu CMP-Neu5Gc streng unidirektional ist und vollständig von CMAH abhängt, hat der Verlust dieses einzigen Enzyms den Biosyntheseweg permanent unterbrochen.1,3Als direkte Folge produzieren moderne Menschen nur den Vorläufer Neu5Ac, wodurch ihre Zelloberflächen vollständig frei von endogenem Neu5Gc bleiben und die biochemische Landschaft des menschlichen Organismus dramatisch verändert wird.1,3]
Evolutionsbiologische Selektionsdrücke: Pathogene und reproduktive Isolation
Die Fixierung einer Loss-of-Function-Mutation in einem Gen, das für die Synthese eines primären, ubiquitären Zelloberflächenmoleküls verantwortlich ist, stellt ein außergewöhnliches evolutionsbiologisches Ereignis dar. Eine derartig drastische und plötzliche Veränderung der Wirts-Glykokalyx muss durch phänomenal intensive evolutionäre Selektionsdrücke angetrieben worden sein, da stochastische genetische Drift allein höchst unwahrscheinlich für die vollständige, populationsweite Fixierung einer derart grundlegenden biochemischen Veränderung verantwortlich gemacht werden kann.12Die aktuelle Evolutionsbiologie geht von einem multifaktoriellen Modell für die rasche Fixierung des CMAH-Nullallels in der homininen Vorfahrenpopulation aus.
Die führende und am intensivsten erforschte Hypothese beinhaltet ein brutales evolutionäres Wettrüsten zwischen Wirt und Pathogen, an dem insbesondere die Vorfahren des Malaria-Erregers beteiligt sind Plasmodium Parasiten.9,12Sialinsäuren auf der Oberfläche säugetierlicher Zellen dienen als primäre Andockrezeptoren und Erkennungsmotive für verschiedene virale, bakterielle und parasitäre Pathogene.6,7Basierend auf genomischen Selektionssignaturen ist es äußerst wahrscheinlich, dass die homininen Vorfahren durch einen hochvirulenten Stamm einer “nicht-menschlichen hominiden” (NHH) Malaria dezimiert wurden, die sich vorzugsweise an Neu5Gc-reiche Erythrozyten band, um in die Zellen einzudringen.9,12Der Alu-vermittelte Verlust des CMAH-Gens bot, obwohl in anderer Hinsicht möglicherweise schädlich, den seltenen Individuen, die die Mutation trugen, einen plötzlichen, lebensrettenden Überlebensvorteil. Indem sie den Wirt effektiv des bevorzugten Zelloberflächenrezeptors des Pathogens beraubten, konnten die CMAH-defizienten Hominine der vorherrschenden Malaria-Geißel entkommen, was zu einem massiven selektiven Sweep führte, der die Null-Mutation in der überlebenden Population fixierte.9,12Dieser evolutionäre Sieg war im großen Rahmen der Tiefen Zeit jedoch nur von kurzer Dauer. Plasmodium falciparum—das hoch letale Agens, das für die moderne humane bösartige Malaria verantwortlich ist — entwickelte schließlich die Fähigkeit, sich bevorzugt an die neu allgegenwärtigen,人类spezifischen Neu5Ac-reichen Erythrozyten zu binden, wodurch die Wirt-Pathogen-Dynamik wiederhergestellt wurde.6,7,12]
Eine zweite, aber ebenso überzeugende und komplementäre Hypothese beinhaltet reproduktive Isolation und eine durch das weibliche Immunsystem vermittelte “katastrophale Selektion”.12Säugetierspermatozoen sind stark sialyliert und nutzen komplexe Oberflächenglykane, um das Überleben der Spermien zu verbessern, immunogene Proteine zu maskieren und die Funktion auf dem gefährlichen Weg durch den weiblichen Genitaltrakt zum Ort der Befruchtung im Eileiter zu optimieren.12Eine weibliche Homininin, die die seltene CMAH-Null-Mutation in sich trägt, würde nach postnatalem Kontakt mit umweltbedingtem oder über die Nahrung aufgenommenem Neu5Gc natürlicherweise zirkulierende Anti-Neu5Gc-Antikörper entwickeln, da ihr Immunsystem das Molekül als fremd erkennen würde.10,12,18Wenn sich dieses mutierte Weibchen anschließend mit einem Wildtyp-Männchen (CMAH-positiv) paarte, würden ihre zirkulierenden Antikörper die Neu5Gc-reichen väterlichen Spermatozoen aggressiv angreifen und neutralisieren, was seinen Fortpflanzungserfolg stark beeinträchtigen und die Lebensfähigkeit der Paarung effektiv zerstören würde.12Über Jahrtausende hinweg würde diese weibliche, immunvermittelte Selektion gegen väterliches Neu5Gc eine intensive, unnachgiebige Fortpflanzungsbarriere zwischen mutierten und Wildtyp-Populationen schaffen, die die rasche Fixierung des CMAH-Null-Genotyps vorantreibt und möglicherweise direkt zu dem Artbildungsprozess beiträgt, der die menschlichen Vorfahren schließlich von anderen Hominiden isolierte.12]
Die Ernährungs-Inkongruenz: Verdauung und mikrobielle Verarbeitung exogener Sialinsäuren
Der evolutionäre Verlust des CMAH-Gens macht Neu5Gc für den modernen menschlichen Organismus biochemisch völlig fremd.5Dennoch ist diese moderne menschliche Ernährung – insbesondere in westlichen Gesellschaften – trotz dieses tiefgreifenden genetischen Defizits reich an diesem Molekül. Neu5Gc ist hochkonzentriert in rotem Fleisch aus Säugetierquellen, insbesondere Rind-, Schweine- und Lammfleisch, die nach wie vor Grundnahrungsmittel des weltweiten Verzehrs sind.3,8,22Außerdem enthalten von diesen Säugetieren stammende Milchprodukte ebenfalls messbare, wenn auch geringere Mengen der nicht-menschlichen Sialsäure.8]
Rigouröse biochemische Assays und Hochleistungsflüssigkeitschromatographie haben die ernährungsbedingte Exposition gegenüber Neu5Gc klar definiert. Die Forschung zeigt, dass Rindfleisch absolut die höchsten Mengen des Moleküls enthält, mit etwa 30,1 µg/g Neu5Gc, dicht gefolgt von Schweinefleisch mit 25,5 µg/g.7,8Umgekehrt haben sich Vogelarten (wie Geflügel) und verschiedene Fischabstammungslinien schon lange vor der Evolution des CMAH-Gens vom Säugetierbaum abzweigt oder es unabhängig davon verloren und sind daher vollständig und von Natur aus frei von Neu5Gc.7,8Diese strikte biochemische Dichotomie macht die Aufnahme von ernährungsbedingtem Neu5Gc hochspezifisch für den Konsum von rotem Fleisch von Säugetieren.7,8]
| Nahrungsquelle | Neu5Gc-Gehaltsklassifizierung | Spezifische Neu5Gc-Konzentration |
| Rindfleisch | Sehr hoch | ~ 30,1 µg/g |
| Schweinefleisch | Hoch | ~ 25,5 µg/g |
| Lamm / Kaninchen | Hoch | Vergleichbar mit Rind/Schwein |
| Milchprodukte | Mäßig | Variable, in Milch-Glykoproteinen vorhanden |
| Geflügel (Hähnchen, Pute) | Null (biochemisch abwesend) | 0,0 µg/g |
| Fisch und Meeresfrüchte | Null (biochemisch abwesend) | 0,0 µg/g |
Die entscheidende Rolle des Darmmikrobioms
Der Übergang des über die Nahrung aufgenommenen Neu5Gc von einem im Magenlumen verbleibenden Nahrungsmittel zu einer absorbierten, systemisch aktiven biochemischen Einheit wird streng durch das gastrointestinale Mikrobiom des Wirts reguliert. Nahrungs-Neu5Gc wird im Allgemeinen nicht als freies Monosaccharid aufgenommen; vielmehr wird es hauptsächlich in einer glykosidisch gebundenen Form konsumiert, die tief in die komplexen Glykoproteine, Mucine und Glykolipide integriert ist, aus denen Säugetiergewebe besteht (wie beispielsweise Schweinesubmaxillarmuzin).8,17Diese Unterscheidung zwischen gebundener und freier Sialsäure ist von überragender physiologischer Bedeutung. Während freie, ungebundene Neu5Gc technisch gesehen über die Darmbarriere resorbiert werden kann, wird sie vom Körper als kleines, gutlösliches und nicht verwertbares Molekül erkannt. Folglich wird freies Neu5Gc schnell über das Nersensystem – [wait, renal system is Nierenantrieb? No, Nierenkreislauf or Nieren, renales System] – *renal system* -> über die Nieren schnell ausgeschieden und effizient mit dem Urin ausgeschieden, wodurch es zu keiner langfristigen Gewebeansammlung oder Pathologie kommt. [Correction for engine strictness: Return only the translation without commentary] Diese Unterscheidung zwischen gebundener und freier Sialsäure ist von überragender physiologischer Bedeutung. Während freie, ungebundene Neu5Gc technisch gesehen über die Darmbarriere absorbiert werden kann, wird sie vom Körper als kleines, hochlösliches und nicht verwertbares Molekül erkannt. Folglich wird freies Neu5Gc über das renale System schnell eliminiert und effizient über den Urin ausgeschieden, wodurch es keinesfalls zu einer langfristigen Gewebeanreicherung oder Pathologie kommt.11,16Es ist nur das strukturell gebundene Neu5Gc, das in komplexen makromolekularen Anordnungen präsentiert wird, das den gefährlichen Prozess der metabolischen Inkorporation durchläuft.11,16,17]
Jüngste Fortschritte bei der metagenomischen Sequenzierung des menschlichen und murinen Darmmikrobiom haben gezeigt, dass die residente mikrobielle Flora dynamisch und schnell auf eine Neu5Gc-reiche Ernährung reagiert.17Insbesondere Populationen, die den Ordnungen Bacteroidales und Clostridiales eine signifikante phänotypische Expansion erfahren, wenn sie rotem Fleisch ausgesetzt werden Kohlenhydrate.[17Diese spezifischen bakteriellen Kladen haben sich so entwickelt, dass sie hoch spezialisierte bakterielle Sialidasen (Neuraminidasen) exprimieren, die speziell dafür entwickelt wurden, terminale Sialinsäuren von den Schleimhautmucinen des Wirts und, entscheidend, von Glykoproteinen der Nahrung abzuspalten.17,20,21]
Historisch wurde angenommen, dass bakterielle Sialidasen ausschließlich das wirtsendogene Neu5Ac bevorzugen, da dies das im menschlichen Darm am häufigsten vorkommende Substrat ist. Umfassende strukturelle Studien mittels fortgeschrittener Röntgenkristallographie haben jedoch spezifische, zuvor nicht beobachtete Aminosäurekonfigurationen in bestimmten bakteriellen Sialidasen identifiziert, die eine ungewöhnlich hohe Substratpräferenz für Neu5Gc-haltige Glykane verleihen.17Diese spezialisierten Darmmikroben steuern eine komplexe Cross-Feeding-Dynamik innerhalb des Mikrobioms, bei der sie den genetischen Nan-Weg nutzen, um die abgespaltenen Sialinsäuren aktiv für die Energie- und Kohlenstoffversorgung abzubauen.20,21Interessanterweise entsteht beim nachgeschalteten Katabolismus von Neu5Ac Essigsäure als Nebenprodukt, während der bakterielle Stoffwechsel von Neu5Gc Glykolsäure liefert.20,21Diese Unterschiede in den metabolischen Nebenprodukten können den lokalen pH-Wert und die metabolische Landschaft des Kolonepithels subtil verändern und so zum weiteren entzündlichen Milieu beitragen.20,21]
Es wird stark vermutet, dass die enzymatische Freisetzung von Neu5Gc durch diese mikrobiellen Sialidasen aus den massiven Fleisch-Glykoproteinen in kleinere, spezifische Oligosaccharid-Fragmente (wie GalNGc) der erforderliche erste Schritt für die anschließende intestinale Absorption und systemische Verteilung des nicht-menschlichen Zuckers ist.8,17]
Zelluläre Kaperung: Der Mechanismus des metabolischen Einbaus
Sobald diätetisches, glykosidisch gebundenes Neu5Gc (oder dessen vom Mikrobiom freigesetzte Oligosaccharid-Zwischenprodukte) das komplexe Darmepithel passiert hat, gelangt es in den Systemkreislauf. Belege zeigen, dass diese Xenoglykane nach einer Mahlzeit mit rotem Fleisch im menschlichen Kreislauf mit einem stationären Spiegel auftreten, der mehrere Stunden anhält und reichlich Gelegenheit zur Gewebeinteraktion bietet.11,15,16Das Phänomen, bei dem dieses völlig fremde Nahrungsmolekül dauerhaft in menschliches Gewebe integriert wird, stellt eine faszinierende und hochgefährliche Schwachstelle in der menschlichen Biochemie dar. Das grundlegende Problem ist eines der molekularen Täuschung: Unsere hochkonservierte intrazelluläre Glykosylierungsmaschinerie kann schlicht nicht zwischen dem endogenen Vorläufer (Neu5Ac) und dem exogenen, nicht-menschlichen Analog (Neu5Gc) unterscheiden.3,5,11Die Moleküle, die sich nur durch ein einziges, winziges Sauerstoffatom unterscheiden, erscheinen den für den zellulären Aufbau verantwortlichen Enzymen identisch.3,5]
Der endozytische und lysosomale Weg
Da menschlichen Zellen vollständig ein spezifischer Plasmamembrantransporter fehlt, der gezielt für die Aufnahme freier Sialsäuren aus dem extrazellulären Raum konzipiert ist, muss die Internalisierung zirkulierender Neu5Gc-Glyokonjugate über alternative Wege erfolgen.11,13,16Diese Aufnahme wird hauptsächlich durch Flüssigphasen-Endozytose und Makropinozytose angetrieben – Prozesse, bei denen die Zelle im Wesentlichen die umgebende extrazelluläre Flüssigkeit und deren gelöste Inhaltsstoffe “trinkt”.11,12,16]
Nach der Internalisierung werden diese exogenen Moleküle in Endosomen eingeschlossen und sorgfältig in die hochsaure, abbauende Umgebung des Lysosoms transportiert.11,16Im Lysosom spalten vom Wirt stammende lysosomale Sialidasen die komplexen Glykonukleotide aus der Nahrung enzymatisch ab und setzen schließlich freie Neu5Gc-Monosaccharide tief im Inneren der Zelle frei.11,16]
Das kritische, unersetzliche Tor für den nachfolgenden Einbau dieses Moleküls ist der lysosomale Sialinsäuretransporter, ein als Sialin bekanntes Protein (kodiert durch das SLC17A5 Gen).11,13,16Sialin ist ein hochkonserviertes Transmembranprotein, dessen normale physiologische Rolle in der Rückgewinnung und Wiederverwertung von endogenem Wirts-Neu5Ac aus abgebauten Glykoproteinen im Lysosom besteht, indem es diese zur Wiederverwendung zurück in das Cytosol pumpt.11,16Sialin ist jedoch nicht perfekt selektiv; es nimmt die aus rotem Fleisch stammenden freien Neu5Gc-Moleküle bereitwillig auf und transportiert sie aktiv in den zytosolischen Raum, wodurch es die letzte innere Barriere der Zelle effektiv überwindet.11,12,16]
De-novo-Synthese und endotheliale Expression
Einmal im relativen Schutz des Zytosols angekommen, tritt das exogene Neu5Gc in den De-novo-Sialinsäuresyntheseweg der Wirtszelle ein und leitet damit die letzten Phasen des biochemischen Hijackings ein. Das Molekül wird durch die Cytidin-Monophosphat(CMP)-Sialinsäuresynthetase umgesetzt, ein Enzym, das das Monosaccharid durch Anlagerung eines energiereichen CMP-Nukleotids aktiviert und den Donor-Komplex CMP-Neu5Gc bildet.6,7Dieser aktivierte Zuckernukleotid-Donor wird dann aktiv in das Lumen des Golgi-Apparats, der zentralen Sortier- und Modifikationszentrale der Zelle, transportiert.6,7]
Im Golgi-Apparat nutzen menschliche Glykosyltransferasen – jene präzisen Enzyme, die für den Aufbau der komplexen, verzweigten Glykanbäume auf neu synthetisierten Proteinen und Lipiden verantwortlich sind – blind die reichlich vorhandenen CMP-Neu5Gc-Donoren, als handele es sich um die korrekten, endogenen CMP-Neu5Ac.3,5,11Folglich wird Neu5Gc kovalent und permanent an frisch synthetisierte Glykoproteine und Glykolipide gebunden. Diese neu assemblierten, xeno-sialylierten Moleküle werden daraufhin über sekretorische Vesikel zur Zelloberfläche transportiert, wo sie in die Plasmamembran integriert werden.3,5]
Durch diesen komplizierten biochemischen Stoffwechselweg kapern menschliche Zellen im Wesentlichen eine Nahrungsverbindung und machen unwissentlich ihre eigenen Zelloberflächen zu Waffen. Während die Anreicherung von Neu5Gc in verschiedenen menschlichen Geweben beobachtet wurde, einschließlich des Epithels, das Hohlorgane auskleidet (was seine starke epidemiologische Verbindung zu verschiedenen Karzinomen erklärt), weist sie einen tiefgreifenden, hochselektiven Tropismus für das Gefäßendothel auf – die empfindliche, innerste Auskleidung aller Blutgefäße.5,22] Strenge immunohistochemische Untersuchungen menschlicher Autopsieproben unter Verwendung sowohl hochspezifischer, monospezifischer Hühner-Anti-Neu5Gc-Antikörper als auch affinitätsgereinigter menschlicher Seren haben eine intensive Neu5Gc-Expression im normal erscheinenden menschlichen Gewebe definitiv nachgewiesen Aorta, dem dichten Mikrovaskulatursystem von Dickdarm und Plazenta und entscheidend im Endothel direkt über aktiven atherosklerotischen Plaques.5]
Die immunologische Genese: Kommensale Primierung und Xeno-Autoantikörper
Das Vorhandensein eines nicht-menschlichen Moleküls, das kovalent an menschliches Gewebe gebunden ist, stellt ein einzigartig gefährliches immunologisches Paradoxon dar, das in der Literatur formal als “Xeno-Autoantigen” eingestuft wird.5Da Neu5Gc aufgrund unserer Evolutionsgeschichte biologisch fremd (“Xeno”) ist, erkennt es das menschliche Immunsystem als fremd an, obwohl es physisch in den intimen Kontext der körpereigenen, mit dem Wirt assoziierten molekularen Muster auf der Endotheloberfläche eingebettet ist.5,6]
Die Ontogenese der Immunantwort
Umfangreiche immunologische Überwachung und epidemiologische Tests offenbaren eine überraschende Tatsache: Im Wesentlichen alle normalen, gesunden erwachsenen Menschen besitzen zirkulierende, hochaktive polyklonale Anti-Neu5Gc-Antikörper.5,6,10Diese hochdiversen Antikörper-Repertoires umfassen die Immunglobulin-G (IgG)-, IgA- und IgM-Isotypen und richten sich gegen eine Vielzahl von Neu5Gc-haltigen Epitopen, die häufig auf humanen Endothelzellen.[5,6,10] Entscheidenderweise sind diese Antikörper keine Keimbahn-kodierten “natürlichen” Antikörper (wie jene, die das ABO-Blutgruppensystem bestimmen und unabhängig von einer spezifischen Exposition vorhanden sind).[5,10,18Vielmehr erfordern sie eine spezifische postnatale antigene Stimulation und durchlaufen eine klassische Affinitätsreifung, um ihre hohen Bindungseigenschaften zu erreichen.10,18]
Detaillierte Analysen von Nabelschnurblut von Neugeborenen zeigen eine vollständige und absolute Abwesenheit von Anti-Neu5Gc-Antikörpern (speziell IgM) zum Zeitpunkt der Geburt.10,18Die Titerwerte bleiben in den ersten Lebensmonaten nicht nachweisbar, was stark gegen eine transplazentare Übertragung als primäre Quelle für eine langfristige Immunität spricht.10,18Diese Antikörper-Titer beginnen jedoch im Alter von etwa sechs Monaten stark und kontinuierlich anzusteigen.10,18Dieser genaue Zeitrahmen korreliert perfekt mit der Einführung von Säuglingsnahrung auf Kuhmilchbasis, Milchprodukten und dem allgemeinen Entwöhnungsprozess hin zu fester Nahrung, was die allererste systemische Exposition des Säuglings gegenüber ernährungsbedingtem Neu5Gc markiert.8,10,18Darüber hinaus haben epidemiologische Studien zu breiteren Umweltexpositionen gezeigt, dass Kinder, die auf aktiven Bauernhöfen aufwachsen und voraussichtlich deutlich höheren Konzentrationen von tierischen Antigenen in der Umgebung ausgesetzt sind, im Vergleich zu städtisch lebenden Kindern, die nicht auf Bauernhöfen aufwachsen, statistisch höhere Werte an zirkulierendem Anti-Neu5Gc-IgG aufweisen.8,18]
Bakterielles Priming über Haemophilus influenzae
Es stellt sich eine kritische, mechanistische Frage: Wie baut das menschliche Immunsystem eine so robuste, lebenslange und affinitätsreifere Antikörperantwort gegen einen einfachen Ernährungszucker auf, insbesondere wenn man bedenkt, dass freies Neu5Gc in isoliertem Zustand von Natur aus nur schwach immunogen ist?
Die Antwort liegt in dem schleichenden Phänomen der mikrobiellen molekularen Mimikry und der bakteriellen Tarnung. Während die genetische Synthese von endogenem Neu5Gc in keinem bakteriellen, viralen oder pilzlichen Mikroorganismus im gesamten Stammbaum des Lebens jemals dokumentiert wurde, agieren bestimmte hochgradig angepasste kommensale menschliche Pathogene als effiziente molekulare Aasfresser.14,21Nicht typisierbar Haemophilus influenzae (NTHi), ein ubiquitäres, auf den Menschen spezialisiertes Kommensalbakterium und opportunistischer Atemwegspathogen, das für Mittelohrentzündungen und Exazerbationen der Atemwege verantwortlich ist, besitzt einen hochspezialisierten trilateralen ATP-unabhängigen periplasmatischen (TRAP-)Transporter.14,21Dieses spezifische Transportsystem nimmt Spuren von Nahrungs-Neu5Gc effizient aus der Schleimhautumgebung des Wirts auf.14,21]
Sobald es vom Wirt gewonnen wurde, baut NTHi dieses Neu5Gc metabolisch direkt in seine eigenen Zelloberflächen-Lipooligosaccharide (LOS) ein.14,19,21Diese bakterielle Sialylierung verleiht dem Organismus einen massiven, nahezu undurchdringlichen Überlebensvorteil. Die Integration von Neu5Gc in seinen schützenden Biofilm erhöht die Resistenz des Bakteriums gegenüber der durch das angeborene Immunsystem des Wirts vermittelten Komplementlyse signifikant.14,21Es erreicht dies in erster Linie durch die Aufhebung des klassischen Komplementaktivierungswegs, indem es Wirts-IgM-Antikörper aktiv daran hindert, an die Bakterienoberfläche zu binden und die Lyse einzuleiten.14,21]
Dieser ausgeklügelte bakterielle Tarnmechanismus hat jedoch einen schwerwiegenden, chronischen Preis für den menschlichen Wirt. Die Präsentation des Neu5Gc-Antigens auf der hochgradig entzündlichen, pathogenassoziierten Oberfläche eines bakteriellen Pathogens wirkt als starkes, natürliches immunologisches Adjuvans.10,14,21Wenn das menschliche Immunsystem unweigerlich eine heftige, systemische Reaktion gegen die NTHi-Bakterien zur Bekämpfung der Infektion einleitet, bildet es gleichzeitig ein vastes Repertoire an kreuzreaktiven Anti-Neu5Gc-Antikörpern.10,14,21Es ist im Fachgebiet inzwischen weithin anerkannt, dass dieses postnatale, pathogenvermittelte Priming, das in ständigem Zusammenspiel mit der täglichen Aufnahme von rotem Fleisch über die Ernährung erfolgt, das erforderliche, hoch entzündliche Signal für die lebenslange Produktion und Aufrechterhaltung von Xeno-Autoantikörpern liefert.5,10,14,18]
Xenosialitis: Die Mechanismen der Atherogenese
Das verhängnisvolle Zusammentreffen von metabolischem Einbau (der das weit verbreitete endotheliale Antigen liefert) und mikrobiellem Priming (das den zirkulierenden Antikörper mit hoher Affinität liefert) mündet in einen kontinuierlichen, schwärenden Zustand der vaskulären Entzündung formal als “Xenosialitis” bezeichnet.5Dieser pathologische Prozess ist insofern einzigartig tückisch, als das Antigen bei jeder im Laufe des Lebens verzehrten Mahlzeit mit rotem Fleisch kontinuierlich erneuert wird, wodurch sichergestellt wird, dass der Entzündungszyklus niemals eine biologische Auflösung erreicht.
Die genaue Pathophysiologie der Xenosialitis, insbesondere im direkten Kontext der Beschleunigung der Atherosklerose, entfaltet sich in einer hochgradig orchestrierten, sequenziellen Kaskade der Zelltodprozesse:5]
- Antigen-Antikörper-Bindung Zirkulierende polyklonale human-Anti-Neu5Gc-Antikörper (hauptsächlich der Isotypen IgG und IgA) überwachen kontinuierlich das vaskuläre Endothel, während das Blut durch den arteriellen Baum fließt. Beim Aufeinandertreffen auf ein metabolisch inkorporiertes Neu5Gc-Epitop, das auf der empfindlichen endothelialen Glykokalyx präsentiert wird, binden die Antikörper mit hoher Affinität und bilden ein dichtes vor Ort Immunkomplex direkt an der Gefäßwand.5]
- Komplementkaskadenaktivierung Die räumliche Klumpung von IgG- und IgA-Molekülen auf der Endotheloberfläche exponiert deren Fc-Regionen (kristallisierbare Fragmente) gegenüber dem Blutstrom. Diese freiliegende Anordnung stellt eine ideale Bindungsstelle für den C1q-Proteinkomplex dar, den Initiator des Komplementsystems.5,15Dies löst die klassische Komplementkaskade aus, was zu einer aggressiven, sublytischen Ablagerung von Komplementproteinen (wie C3b und dem Membranangriffskomplex) direkt auf dem intakten, ansonsten gesunden Endothel führt.5]
- Tiefe endotheliale Aktivierung Die starke Ablagerung von Komplementproteinen, kombiniert mit der mechanischen Vernetzung von Oberflächenrezeptoren durch die Antikörper, drängt die Endothelzelle mit Nachdruck aus ihrem normalen, ruhenden, nicht-thrombogenen Zustand in einen hochaktivierten, proinflammatorischen Phänotyp.5Sophisticated in vitro Modelle zeigen, dass die einfache Inkubation von hochdosierten menschlichen Seren mit Neu5Gc-gefütterten Endothelzellen direkt massive intrazelluläre Signaländerungen verursacht, was zu einer raschen Exozytose von Weibel-Palade-Körperchen und einer raschen de novo Transkription von Entzündungsgenen.5]
- Zytokinausscheidung und Selectin-Upregulation Das frisch aktivierte Endothel beginnt, große Mengen proinflammatorischer Zytokine zu sezernieren, wodurch ein lokaler chemotaktischer Gradient erzeugt wird, der Immunzellen anlocken soll.5Gleichzeitig regulieren die Zellen die Oberflächenexpression kritischer Adhäsionsmoleküle, insbesondere E-Selektin und P-Selektin, rasch hoch.5] Insbesondere P-Selektin ist ein potenter, wohlbekannter Mediator rezidivierender Thromboembolien und kardiovaskulärer Erkrankungen, der dazu beiträgt, das anfängliche, rollende Anheften von zirkulierenden Leukozyten an die Gefäßwand zu ermöglichen.[23]
- Leukozytenextravasation und Plaquebildung: Das starke Vorhandensein von Selektinen und die gestörte Glykokalyx führen zu einer Neu5Gc-abhängigen Monozytenbindung.5Die zirkulierenden Monozyten rollen entlang des aktivierten Endothels, haften über Integrin-Interaktionen fest an und diapedesieren aktiv in das subendothelialer Raum (die Tunika IntimaEinmal in der Arterienwand gefangen, wandeln sich diese hyperaktiven Monozyten in residente Makrophagen, beginnen, oxidierte Low-Density-Lipoproteine aggressiv zu verschlingenLDL), und zu massiven anschwellen Schaumzellen. Die Akkumulation und der anschließende apoptotische Tod dieser Schaumzellen bilden die Grundlage für die hochthrombogenen nekrotischer Kern der atherosklerotischen Plaque.5]
- Synergistische Verstärkungsschleifen: Diese destruktive Kaskade agiert nicht im luftleeren Raum; sie wird durch systemische Entzündungszustände weiter verstärkt. Das Vorhandensein von Tumor-Nekrose-Faktor-alpha (TNF-α), einem allgegenwärtigen, hochwirksamen proinflammatorischen Zytokin, das typischerweise bei Schüben allgemeiner Gefässschäden hochreguliert wird, oder Metabolisches Syndrom, selektiv und wirksam die Reaktivität menschlicher Anti-Neu5Gc-Antikörper verstärkt, wodurch eine sich verstärkende, positive Rückkopplungsschleife der vaskulären Zerstörung entsteht.5Zusätzlich, Hämeisen, das hochkonzentriert in rotem Fleisch enthalten ist, übt seine eigenen, unabhängigen entzündungsfördernden und oxidativen Wirkungen aus, die die durch die Glykane ausgelöste Endothelbelastung verstärken.22,23]
| Stadium der Pathogenese | Zellulärer/Molekularer Akteur | Aktion und Konsequenz |
| 1. Zielidentifizierung | Endotheliales Neu5Gc & Zirkulierendes IgG/IgA | Bildung von In-situ-Immunkomplexen an der ansonsten gesunden Arterienwand. |
| 2. Kaskadeninitiierung | Komplementprotein C1q | Bindung an Antikörper-Fc-Regionen, was die klassische Komplementabscheidung auslöst. |
| 3. Zelluläre Verschiebung | Endothelzelle | Übergang von einem ruhigen Zustand zu einem aktivierten, proinflammatorischen Phänotyp. |
| 4. Oberflächenveränderung | E-Selektin & P-Selektin | Massive Hochregulation auf der Zelloberfläche, die als Ankerhaken für Immunzellen dient. |
| 5. Infiltration | Monozyten / Makrophagen | Anheftung, Diapedese in die Tunica intima und anschließende Umwandlung in lipidbeladene Schaumzellen. |
| 6. Plaque-Reifung | Schaumzellen & Zytokine | Akkumulation erzeugt den nekrotischen Kern; die Zytokinfreisetzung (TNF-α) verstärkt die Antikörperreaktivität weiter. |
Quantifizierung des Risikos: Unanfechtbare Beweise aus humanisierten Mausmodellen
Um den spezifischen Beitrag des evolutionären Verlusts von CMAH zur Herz-Kreislauf-Erkrankung streng zu isolieren, zu verifizieren und zu quantifizieren – und diesen ausdrücklich von der Myriade an Störfaktoren des Lebensstils zu trennen, die dem modernen menschlichen Dasein innewohnen (wie etwa Rauchen, der Bewegungsmangel und der Konsum von raffiniertem Zucker) – entwickelten Forscher ein tiefgreifendes, hochspezifisches transgenes Tiermodell: das menschenähnliche Cmah^-/- LDL-Rezeptor^-/- Maus.[1]
Wildtyp-Labormäuse (Cmah^+/+) produzieren Neu5Gc auf natürliche Weise und in Fülle und leiden, wie praktisch alle anderen Säugetiere, nicht an Xenosialitis.1Um die menschliche Verfassung exakt nachzubilden, nutzten Forscher Gentechnik, um beide Cmah Gen (das den evolutionären Verlust beim Menschen vor 2 bis 3 Millionen Jahren perfekt nachahmt) und das LDL-Rezeptor (Low-Density-Lipoprotein-Rezeptor)-Gen. Das LDL-Rezeptor Ein Knockout ist ein Standardverfahren, das erforderlich ist, um bei Mäusen eine Grundanfälligkeit für ernährungsbedingte Atherosklerose hervorzurufen, wodurch die Forscher Veränderungen bei der Plaquebildung über angemessene Versuchszeiträume hinweg messen können.[1]
Die aus diesen Modellen abgeleiteten experimentellen Daten lieferten zwei unterschiedliche, hochsignifikante Quantifizierungen des Krankheitsverlaufs, die das Risiko auf anschauliche Weise in zwei Komponenten unterteilten: den intrinsischen Risikomultiplikator (den genetischen Nachteil, Mensch zu sein) und den extrinsischen Risikomultiplikator (den ernährungsbedingten Nachteil des Verzehrs von rotem Fleisch).
Das intrinsische Risiko (die grundlegende menschliche Strafe)
In der sorgfältig kontrollierten ersten Phase des Experiments fütterten die Forscher sowohl die Wildtyp-Kontrollgruppe Cmah^+/+-Mäuse und die menschenähnlichen Cmah^-/--Knockout-Mäuse erhielten eine identische, streng kontrollierte fettreiche Ernährung, die vollständig frei von jeglichen Sialinsäuren war (eine Sias-freie Ernährung).[1] Die Ergebnisse waren verblüffend: Selbst bei absolutem, vollständigem Fehlen von Neu5Gc in der Nahrung war das menschenähnliche Cmah^-/--Mäuse wiesen im direkten Vergleich zu den Wildtyp-Kontrolltieren einen hochsignifikanten 1,9-fachen Anstieg der Atherogenese auf.[1]
Durch diese nahezu doppelte Plaquebildung in einer kontrollierten Umgebung konnten die intrinsischen biologischen Folgen der CMAH-Mutation isoliert werden.[1] Umfassende histologische und biochemische Analysen ergaben, dass der Verlust des Gens die Grundphysiologie des Organismus grundlegend veränderte. Die Cmah^-/--Mäuse wiesen eine stark erhöhte Zytokin-Expression in Makrophagen auf, wodurch ihre weißen Blutkörperchen von Natur aus hyperaktiv und überempfindlich waren und selbst ohne einen spezifischen Antigenauslöser zu entzündlichen Überreaktionen neigten.[1] Darüber hinaus führte die Mutation unmittelbar zu einer verstärkten Überzuckerung sowie eine ausgeprägte metabolische Veranlagung für Diabetes, was ihr Risiko deutlich erhöht HOMA-IR (Bewertung des homöostatischen Modells für Insulinresistenz) Ergebnisse.[1] Diese grundlegende, intrinsische systemische Dysfunktion erklärt auf elegante Weise, warum selbst strenge Vegetarier und Veganer – die absolut kein rotes Fleisch zu sich nehmen und oft keine traditionellen Risikofaktoren wie einen hohen Cholesterinspiegel aufweisen – deutlich anfälliger für unerklärliche Herzinfarkte sind und Schlaganfälle als in Gefangenschaft lebende Schimpansen mit schlechter Ernährung.[1,2] Wir sind genetisch so veranlagt, dass bei uns Entzündungen stärker ausgeprägt sind.
Das extrinsische Risiko (der „Red-Meat-Penalty“)
In der entscheidenden zweiten Phase der Studie versuchten die Forscher, den gesamten, sich verstärkenden Mechanismus des Verzehrs von rotem Fleisch beim Menschen und der Xenosialitis nachzuvollziehen. Zunächst immunisierten sie die menschenähnlichen Cmah^-/--Mäuse mit spezifischen Neu5Gc-tragenden Antigenen (unter Verwendung des vollständigen Freund-Adjuvans), um zirkulierende, affinitätsgereifte Anti-Neu5Gc-Antikörper zu erzeugen, die das nach dem Abstillen entwickelte menschliche Immunprofil perfekt nachbilden.[1] Anschließend erhielten diese immunisierten, humanisierten Mäuse eine fettreiche Ernährung, die gezielt mit hohen Konzentrationen von Neu5Gc angereichert war (in Anlehnung an eine fettreiche, dauerhafte Ernährung mit rotem Fleisch).[1]
Die pathologischen Befunde waren dramatisch und eindeutig. Bei den immunisierten Mäusen, die mit Neu5Gc gefüttert wurden, kam es zu einer massiven 2,4-fachen Zunahme des Schweregrads der Atherosklerose im Vergleich zu den Kontrollmäusen, die entweder eine Neu5Ac-reiche oder eine vollständig Sias-freie Hochfettdiät erhielten.[1] Es wurde eine gründliche Quantifizierung der Aortenatherosklerose durchgeführt: Die Mäuse wurden eingeschläfert, perfundiert, ihre Aorten präpariert und flach aufgespannt. Die Färbung mit Sudan IV zur Bestimmung der Gesamtlipidbelastung sowie serielle Kryoschnitte des Aortensinus, die mit Masson-Trichrom gefärbt wurden, zeigten eine deutlich fortgeschrittenere Läsionen, stark ausgedehnte nekrotische Kerngebiete und dichtes, pathologisches Kollagen Faser Aussage.[1]
Entscheidend ist, dass sich diese starke, um das 2,4-Fache beschleunigte Plaquebildung nicht durch nachgelagerte Veränderungen der Blutlipoproteinspiegel erklären ließ, Gesamtcholesterin Parameter oder Glucose Kennzahlen.[1] Die Blutfettwerte blieben in den Versuchsgruppen nahezu identisch; die massive kardiovaskuläre Schädigung wurde ausschließlich und eindeutig durch die lokalisierte, antikörpervermittelte entzündliche Schädigung des Endothels verursacht – die reine, unverfälschte Manifestation der Xenosialitis.[1]
Klinische Korrelate und weiterreichende systemische Erkrankungen
Die heimtückische Natur der Neu5Gc-Integration und der daraus resultierenden Xenosialitis reicht weit über die mikroskopischen Parameter isolierter Mausmodelle hinaus; sie äußert sich in einer Vielzahl beobachtbarer klinischer Phänomene und trägt zu einem breiten Spektrum systemischer Erkrankungen beim Menschen bei. Der Mechanismus beschränkt sich nicht nur auf die wichtigsten Herzkranzgefäße betroffen ist jedoch der gesamte Gefäßbaum.
Diagnostische Indikatoren: Frank-Zeichen und mikrovaskuläre Degradation
Der systemische, allgegenwärtige Charakter der durch eine Xenosialitis verursachten Endothelschädigung könnte sich tatsächlich in gut sichtbaren, äußeren Mikrovaskulaturbetten widerspiegeln. Klinisch wurde das Vorliegen einer diagonalen Ohrläppchenfalte (DELC) – in der medizinischen Fachliteratur unter dem Namen „Frank-Zeichen“ bekannt – wiederholt und eindeutig als ein unabhängiger Prädiktor von Koronare Herzkrankheit sowie periphere Gefäßerkrankungen.[25,26] Dieser Zusammenhang gilt völlig unabhängig von allgemein bekannten Risikofaktoren wie Bluthochdruck, Diabetes, Hyperlipidämie und Rauchen.[25,26]
Es wird weitgehend angenommen, dass die zugrunde liegende Ätiologie des Frank-Zeichens in einem parallelen Verlauf einer systemischen mikrovaskulären Erkrankung und der beschleunigten, altersbedingten Schwächung von Elastin sowie Kollagenfasern, die sowohl im Gefäßbett des Ohrläppchens als auch in den Koronararterien vorkommen.[25,26] Angesichts der weitreichenden systemischen Verteilung von Neu5Gc im menschlichen Glykokalyx, insbesondere in der dichten Mikrogefäßstruktur, beschleunigt die chronische, schwachgradige Entzündung der Xenosialitis wahrscheinlich genau diesen Mechanismus des mikrovaskulären Abbaus.[5] Die fortwährende Bildung von Immunkomplexen und die Ablagerung von Komplementstoffen beeinträchtigen das empfindliche Kollagen-Elastin-Verhältnis und stellen damit einen höchst plausiblen, alles zusammenfassenden biochemischen Zusammenhang zu diesem sichtbaren, makroskopischen diagnostischen Marker her.[25,26]
Zirkulierende Antikörper und akute systemische Vaskulitis
Das pathogene Potenzial von Anti-Neu5Gc-Antikörpern zeigt sich zudem bei akuten, schwerwiegenden Gefäßerkrankungen beim Menschen. Erhöhte Titer von Anti-Neu5Gc-Antikörpern werden auffällig und durchgängig bei der Kawasaki-Krankheit beobachtet, einer akuten, mit Fieber einhergehenden und oft schweren systemischen Vaskulitis im Kindesalter, die vor allem die Koronararterien betrifft.[24] Bemerkenswert ist, dass bei Patienten mit morphologisch normalen Koronararterien höhere Antikörperspiegel im Blut nachgewiesen werden als bei Patienten, die an schweren Komplikationen im Spätstadium wie massiven Aneurysmen oder erweiterten Koronararterien leiden.[24] Diese scheinbar umgekehrte Korrelation deutet auf eine konsumptive Pathogenese hin: Während akuter, massiver Entzündungsphasen können große Mengen zirkulierender Anti-Neu5Gc-Antikörper rasch verbraucht werden, indem sie sich stark an den Stellen aktiver Gefäßschäden in den Koronarwänden binden und dort sequestriert werden. Dies senkt effektiv den messbaren Titer im Blut bei der Entnahme, während die Antikörper die Pathologie tief im Inneren der Arterienwand aktiv vorantreiben.[24]
Darüber hinaus wurden im Serum von Probanden mit schwerer Atherosklerose im Vergleich zu einer sorgfältig ausgewählten Gruppe gesunder Kontrollpersonen erhöhte Konzentrationen von Antikörpern der IgA-Klasse nachgewiesen, die spezifisch gegen Nahrungsmittelantigene gerichtet sind.[27] Diese Erkenntnis unterstreicht den engen, untrennbaren Zusammenhang zwischen aus dem Darm stammenden Nahrungsmittelantigenen, einer systemischen Immunüberempfindlichkeit und letztendlich arterielle Plaque Belastung.[27] Dieser Mechanismus beschränkt sich nicht nur auf Herz-Kreislauf-Erkrankungen; die Einlagerung von Neu5Gc spielt auch in der Krebsbiologie eine wichtige Rolle. Da sich Neu5Gc aufgrund schneller Tumorwachstumsraten, erhöhter Mikropinozytose-Raten und der hypoxiebedingten Hochregulation des Sialin-Transporters bevorzugt in bösartigen Geweben anreichert, sorgt die Xenosialitis für ein chronisch entzündliches Tumormikromilieu, das die Karzinogenese direkt fördert, Angiogenese, und Metastasen.[8,22]
Die unmittelbare Gefahr der viralen Kreuzreaktivität
Ein sich abzeichnender, äußerst wichtiger Forschungsbereich befasst sich mit der Wechselwirkung zwischen dem bereits bestehenden Paradigma der Xenosialitis und schweren, akuten Virusinfektionen. Wenn der Mensch massive, verzweifelte Antikörperreaktionen auf umhüllte virale Erreger (wie SARS-CoV-2 oder Influenza A) entwickelt, können die daraus resultierenden neutralisierenden antiviralen Antikörper unbeabsichtigt eine zugrunde liegende Gefäßerkrankung verschlimmern.[15] Da umhüllte Viren den körpereigenen Glykosylierungsapparat des Wirts zur Synthese ihrer Virushüllen nutzen, werden die neu gebildeten Virionen mit den Sialinsäuren beschichtet, die die Wirtszelle gerade exprimiert.[15] Bei einem Menschen, der rotes Fleisch verzehrt, sind diese Virushüllen mit Neu5Gc durchsetzt.[15]
Folglich kann die massive Welle neutralisierender antiviraler Antikörper, die während der Infektion gebildet wird, wahllos mit xenosialylierten (Neu5Gc-haltigen) Epitopen kreuzreagieren, die über das gesunde Endothelgewebe des Wirts verteilt sind.[15] Diese massive, systemische Kreuzreaktivität der Antikörper kann den bereits bestehenden Zustand der Xenosialitis erheblich verschlimmern.[15] Der daraus resultierende hyperinflammatorische Sturm führt zu schweren, generalisierten Gerinnungsstörungen, tödlichen Zytokinstürmen und tiefgreifenden, weitreichenden Schäden am Endothel.[15] Diese Hypothese erklärt auf elegante Weise, warum der kardiovaskuläre Grundzustand und die Ernährungsgewohnheiten so entscheidende und übergeordnete Faktoren für die Sterblichkeit bei akuten viralen Atemwegssyndromen sind, da die Virusinfektion im Wesentlichen das latente Pulverfass der ernährungsbedingten Xenosialitis entzündet.[15]
Therapeutische Maßnahmen und zukünftige wissenschaftliche Perspektiven
Das Verständnis der komplexen Mechanismen der Neu5Gc-Integration löst nicht nur ein großes evolutionäres und epidemiologisches Rätsel, sondern eröffnet auch völlig neue, umsetzbare therapeutische Ansätze. Diese Maßnahmen zielen darauf ab, das kardiovaskuläre Risiko über das derzeitige Paradigma der traditionellen Statin Therapie, Thrombozytenhemmung und Blutdruck Management.
Maßnahmen zur Zufuhr von Sialinsäure über die Nahrung und kompetitive Hemmung
Die unmittelbarste und biologisch sinnvollste Maßnahme ist die direkte Beeinflussung des Sialinsäureprofils in der Ernährung. Experimentelle Daten belegen eindeutig, dass ein Eingriff in den biochemischen Stoffwechselweg die Beschleunigung der Atherosklerose rasch stoppen oder sogar umkehren kann.[4] In der umfassend validierten Cmah^-/- In einem menschenähnlichen Mausmodell führte allein die Umstellung der Versuchstiere von einer Neu5Gc-reichen, fettreichen Ernährung auf eine Neu5Gc-freie, fettreiche Ernährung zu einem aktiven Schutz vor beschleunigter Atherogenese.[4]
Bemerkenswerterweise führte die Zugabe einer enormen, fünffachen Menge an Neu5Ac (der unbedenklichen, körpereigenen Sialinsäure) zu einer fettreichen Ernährung dazu, dass das gefährliche Neu5Gc bei der Aufnahme und Verwertung durch die Zellen effektiv verdrängt wurde, wodurch das Entzündungsrisiko wirksam gemindert wurde.[4] Darüber hinaus bot eine mit Neu5Ac angereicherte Ernährung einen intrinsischen Schutz vor Atherosklerose bei LDL-Rezeptor^-/--Mäuse, selbst wenn Neu5Gc in der Nahrung gänzlich fehlte, vorausgesetzt, der Wirt verfügte über die menschenähnliche Cmah-null-genetischer Hintergrund, was darauf hindeutet, dass eine Überflutung des Systems mit dem “richtigen” Zucker das menschliche Endothel aktiv stabilisiert.[4]
Derzeit wird intensiv nach Quellen für hochkonzentriertes, bioverfügbares Neu5Ac geforscht. Kollokalia Mukoidextrakte, allgemein bekannt als essbare Vogelnester, sind außerordentlich reich an natürlichem Neu5Ac.[4] Biochemische Verdauungsstudien zeigen, dass eine sachgemäße Zubereitung, insbesondere die Kontrolle der Gartemperatur, den Abbau der hochmolekularen Glykopeptide im Nest zu hoch resorbierbaren, niedermolekularen freien Neu5Ac-Fragmenten maximiert.[4] Dadurch wird seine Bioverfügbarkeit optimiert, sodass es in hohen Konzentrationen in den Blutkreislauf gelangt und dort als kompetitiver Hemmstoff gegen Neu5Gc aus der Nahrung wirkt.[4]
Mikrobiom-Engineering und industrielle enzymatische Spaltung
Ein zweiter, äußerst innovativer therapeutischer Ansatz besteht in der direkten Beeinflussung der Nahrungsaufnahme mithilfe eben jener biochemischen Mechanismen, die sich im Darmmikrobiom entwickelt haben. Die jüngste Entdeckung spezifischer bakterieller Sialidasen (abgeleitet von Bacteroidales und Clostridiales), die eine überwältigende, hochspezifische enzymatische Präferenz für die Spaltung von Neu5Gc gegenüber Neu5Ac aufweisen, bieten enorme industrielle und medizinische Chancen.[17]
Diese leistungsstarken Enzyme, die in der Lage sind, gebundenes Neu5Gc effizient aus komplexen Glykoproteinen von rotem Fleisch freizusetzen, könnten bei der industriellen Verarbeitung von Fleischprodukten vor dem Verkauf im Einzelhandel eingesetzt werden.[17] Durch die Vorbehandlung von rotem Fleisch von Säugetieren mit diesen spezifischen rekombinanten bakteriellen Sialidasen konnte das gebundene Neu5Gc effektiv aus dem Fleisch “entfernt” werden.[17] Da freies, ungebundenes Neu5Gc vom Darm nur schlecht resorbiert und vom Nierensystem schnell und sicher über den Urin ausgeschieden wird, wird das gefährliche, gebundene Neu5Gc direkt im Lebensmittelmatrix könnte das Risiko für Entzündungskrankheiten drastisch senken.[11,16] Dieser Ansatz würde die biochemische Kette, die zur Xenosialitis führt, wirksam unterbrechen, ohne dass die gesamte Bevölkerung vollständig auf den Verzehr von rotem Fleisch verzichten müsste.[17,20]
Fazit
Die tiefgreifende Schnittstelle zwischen Evolutionsbiologie, den Mechanismen der intrazellulären Glykosylierung, Immunologie und modernen Ernährungsgewohnheiten liefert eine umfassende, molekular präzise Erklärung für die einzigartig menschliche Veranlagung zu Herz-Kreislauf-Erkrankungen. Das menschliche Herz-Kreislauf-System arbeitet unter einer permanenten, intrinsischen genetischen Belastung – dem unauslöschlichen Erbe der Alu-vermittelten CMAH-Pseudogenisierung, die sich vor Millionen von Jahren ereignete. Während diese dramatische Mutation unsere hominiden Vorfahren wahrscheinlich vor einem katastrophalen, durch Malaria verursachten Aussterben durch Parasiten bewahrte, führte sie dazu, dass der Glykokalyx des modernen Menschen dauerhaft verändert und äußerst anfällig wurde.
Der regelmäßige Verzehr von rotem Fleisch von Säugetieren führt dazu, dass enorme, unnatürliche Mengen der “verlorenen” Sialinsäure Neu5Gc direkt in den menschlichen Magen-Darm-Trakt gelangen. Dort setzen spezialisierte bakterielle Sialidasen das Molekül frei, sodass es resorbiert werden kann. Durch einen tragischen Fall molekularer Mimikry bindet der menschliche Zellapparat dieses fremde Glykan wahllos über den Sialin-Transporter ein und präsentiert es kovalent auf der luminalen Oberfläche des Gefäßendothels. Ausgelöst durch die Nahrungsaufnahme in der frühen Lebensphase und die kontinuierliche molekulare Entnahme durch kommensale Pathogene wie Nontypeable Haemophilus influenzae, erkennt das menschliche Immunsystem das veränderte Endothel als fremde Bedrohung. Der daraus resultierende unerbittliche, lebenslange Ansturm polyklonaler IgG- und IgA-Antikörper löst eine klassische Komplementablagerung, eine massive Selektin-Expression, die Extravasation von Monozyten sowie eine kontinuierliche, schleichende Plaquebildung aus.
Dieser umfassend validierte Mechanismus, der als „Xenosialitis“ bezeichnet wird, erklärt auf eindrucksvolle und lückenlose Weise das Auftreten klinischer Atherosklerosefälle bei Patienten, bei denen keinerlei traditionelle Risikofaktoren vorliegen. Er erklärt einwandfrei die massive 2,4-fache Beschleunigung der Atherogenese, die in kontrollierten Tiermodellen nach dem Verzehr von rotem Fleisch beobachtet wird, und verdeutlicht, warum Schimpansen – unsere nächsten evolutionären Verwandten mit identischen Lipidprofilen – gegen koronare Atherosklerose immun bleiben. Mit Blick auf die Zukunft bieten Interventionen, die auf eine kompetitive Neu5Ac-Supplementierung und die industrielle enzymatische Spaltung von Neu5Gc aus der Nahrungsversorgung abzielen, die beispiellose Aussicht, diesen uralten evolutionären Kompromiss aufzuheben, wodurch die Landschaft der kardiovaskulären Präventivmedizin grundlegend verändert und unser Verständnis von ernährungsbedingten Erkrankungen neu definiert würde.
Referenzen
- Kawanishi K, Dhar C, Do R, Varki N, Gordts PLSM, Varki A. Human species-specific loss of CMP-N-acetylneuraminic acid hydroxylase enhances atherosclerosis via intrinsic and extrinsic mechanisms. Proc Natl Acad Sci U S A. 2019;116(32):16036-16045. doi:10.1073/pnas.1902902116
- Baldessari A, Snyder J, Ahrens J, Murnane R. Fatal myocardial fibrosis in an aged chimpanzee (Pan troglodytes).
- Banda K, Gregg CJ, Chow R, Varki NM, Varki A. Metabolism of vertebrate amino sugars with N-glycolyl groups: mechanisms underlying gastrointestinal incorporation of the non-human sialic acid xeno-autoantigen N-glycolylneuraminic acid.
- Kawanishi K, Coker JK, Grunddal KV, et al. Dietary Neu5Ac Intervention Protects Against Atherosclerosis Associated With Human-Like Neu5Gc Loss-Brief Report.
- Dhar C, Sasmal A, Varki A. From “Serum Sickness” to “Xenosialitis”: Past, Present, and Future Significance of the Non-human Sialic Acid Neu5Gc.
- Lewis AL, Chen X, Schnaar RL, Varki A. Sialic Acids and Other Nonulosonic Acids. In: Varki A, Cummings RD, Esko JD, et al., eds.
- Varki A. Sialic acids in human health and disease.
- Altman MO, Gagneux P. Absence of Neu5Gc and Presence of Anti-Neu5Gc Antibodies in Humans-An Evolutionary Perspective. Front Immunol. 2019;10:789. Published 2019 Apr 30. doi:10.3389/fimmu.2019.00789
- Varki A. Colloquium paper: uniquely human evolution of sialic acid genetics and biology. Proc Natl Acad Sci U S A. 2010;107 Suppl 2(Suppl 2):8939-8946. doi:10.1073/pnas.0914634107
- Padler-Karavani V, Yu H, Cao H, et al. Diversity in specificity, abundance, and composition of anti-Neu5Gc antibodies in normal humans: potential implications for disease. Glycobiology. 2008;18(10):818-830. doi:10.1093/glycob/cwn072
- Bardor M, Nguyen DH, Diaz S, Varki A. Mechanism of uptake and incorporation of the non-human sialic acid N-glycolylneuraminic acid into human cells. J Biol Chem. 2005;280(6):4228-4237. doi:10.1074/jbc.M412040200
- Varki A. Multiple changes in sialic acid biology during human evolution. Glycoconj J. 2009;26(3):231-245. doi:10.1007/s10719-008-9183-z
- Dubois L, Pietrancosta N, Cabaye A, et al. Amino Acids Bearing Aromatic or Heteroaromatic Substituents as a New Class of Ligands for the Lysosomal Sialic Acid Transporter Sialin. J Med Chem. 2020;63(15):8231-8249. doi:10.1021/acs.jmedchem.9b02119
- Apicella MA. Nontypeable Haemophilus influenzae: the role of N-acetyl-5-neuraminic acid in biology. Front Cell Infect Microbiol. 2012;2:19. Published 2012 Mar 13. doi:10.3389/fcimb.2012.00019
- Taylor RE, Gregg CJ, Padler-Karavani V, et al. Novel mechanism for the generation of human xeno-autoantibodies against the nonhuman sialic acid N-glycolylneuraminic acid. J Exp Med. 2010;207(8):1637-1646. doi:10.1084/jem.20100575
- Verheijen FW, Verbeek E, Aula N, et al. A new gene, encoding an anion transporter, is mutated in sialic acid storage diseases. Nat Genet. 1999;23(4):462-465. doi:10.1038/70585
- Zaramela LS, Martino C, Alisson-Silva F, et al. Gut bacteria responding to dietary change encode sialidases that exhibit preference for red meat-associated carbohydrates. Nat Microbiol. 2019;4(12):2082-2089. doi:10.1038/s41564-019-0564-9
- Padler-Karavani V, Hurtado-Ziola N, Pu M, et al. Human xeno-autoantibodies against a non-human sialic acid serve as novel serum biomarkers and immunotherapeutics in cancer. Cancer Res. 2011;71(9):3352-3363. doi:10.1158/0008-5472.CAN-10-4102
- Vimr ER, Kalivoda KA, Deszo EL, Steenbergen SM. Diversity of microbial sialic acid metabolism. Microbiol Mol Biol Rev. 2004;68(1):132-153. doi:10.1128/MMBR.68.1.132-153.2004
- Tailford LE, Crost EH, Kavanaugh D, Juge N. Mucin glycan foraging in the human gut microbiome. Front Genet. 2015;6:81. Published 2015 Mar 19. doi:10.3389/fgene.2015.00081
- Samraj AN, Pearce OM, Läubli H, et al. A red meat-derived glycan promotes inflammation and cancer progression. Proc Natl Acad Sci U S A. 2015;112(2):542-547. doi:10.1073/pnas.1417508112
- Hull SC, Mszar R, Ostfeld RJ, et al. Diet and Prevention of Cardiovascular Disease and Cancer: JACC: CardioOncology State-of-the-Art Review. JACC CardioOncol. 2025;7(6):649-667. doi:10.1016/j.jaccao.2025.07.008
- Evrengül H, Dursunoğlu D, Kaftan A, et al. Bilateral diagonal earlobe crease and coronary artery disease: a significant association. Dermatology. 2004;209(4):271-275. doi:10.1159/000080847
- Padler-Karavani V, Tremoulet AH, Yu H, Chen X, Burns JC, Varki A. A simple method for assessment of human anti-Neu5Gc antibodies applied to Kawasaki disease. PLoS One. 2013;8(3):e58443. doi:10.1371/journal.pone.0058443
- Shmilovich H, Cheng VY, Rajani R, et al. Relation of diagonal ear lobe crease to the presence, extent, and severity of coronary artery disease determined by coronary computed tomography angiography. Am J Cardiol. 2012;109(9):1283-1287. doi:10.1016/j.amjcard.2011.12.024
- Gakovic B, Neskovic SA, Vranic I, et al. The relationship of diagonal earlobe crease (Frank’s sign) and obstructive coronary artery disease in patients undergoing coronary angiography. Wien Klin Wochenschr. 2023;135(23-24):667-673. doi:10.1007/s00508-023-02297-y
- Muscari A, Volta U, Bonazzi C, et al. Association of serum IgA antibodies to milk antigens with severe atherosclerosis. Atherosclerosis. 1989;77(2-3):251-256. doi:10.1016/0021-9150(89)90088-9

