Estrutura, transporte e necessidade biológica do colesterol
Uma análise mecanicista da divisão em compartimentos, lipoproteína requisitos estruturais e o valor mínimo estimado pelo modelo para o sistema de transporte circulante
Resumo
Histórico. De corpo inteiro colesterol A distribuição, os requisitos estruturais das lipoproteínas e a dependência dos tecidos em relação ao colesterol circulante são frequentemente confundidos em fontes clínicas e educacionais, levando a exageros quanto à quantidade de colesterol circulante de que o corpo “precisa”.”
Métodos. Esta análise (i) define um vocabulário rigoroso baseado em compartimentos, distinguindo entre colesterol corporal total, colesterol tecidual, colesterol intracelular e colesterol circulante (plasma/soro), e (ii) constrói uma estimativa transparente, baseada em um modelo de transporte, para a concentração mínima de colesterol circulante necessária para manter a integridade estrutural das lipoproteínas e atender à demanda tecidual exógena, com premissas declaradas, parâmetros explicitamente convertidos em unidades e limites de sensibilidade. As equações e os intervalos dos parâmetros são apresentados no apêndice “Métodos” (Seção 11).
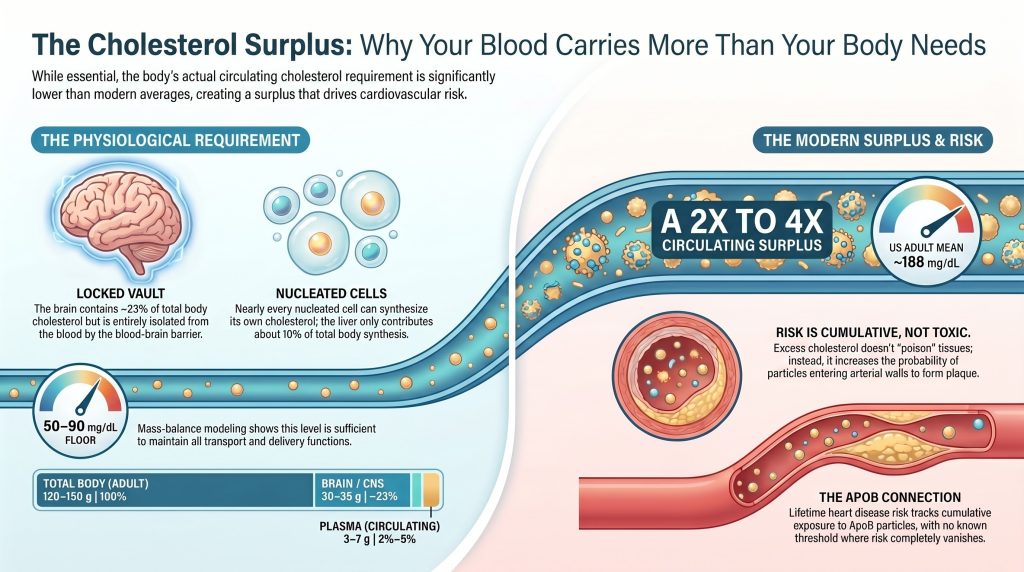
Descobertas. (1) O colesterol total no corpo de um adulto é de aproximadamente 120–150 g; o pool plasmático de rápida troca, de 3–7 g (dependendo do volume plasmático e da medição colesterol total (concentração) representa 2–5% do conteúdo corporal. (2) Somente o cérebro contém cerca de 30–35 g, isolados do plasma pelo barreira hematoencefálica. (3) O colesterol plasmático é de aproximadamente 70% esterificado / aproximadamente 30% livre. (4) Um modelo representativo de 22 nm LDL uma partícula (reconstrução de Hevonoja) contém cerca de 2.200 moléculas de colesterol, das quais cerca de 18% correspondem a colesterol livre na superfície; o LDL é heterogêneo e esses números não devem ser aplicados acriticamente a todas as partículas de LDL. (5) Sob os pressupostos do modelo de transporte aqui apresentados e utilizando contagens de partículas consistentes com dados de RMN (LDL-P em nmol/L → ~10¹⁶–10¹⁷ partículas/dL; HDL-P em µmol/L → ~10¹⁸ partículas/dL), o colesterol total plasmático mínimo estimado pelo modelo, que simultaneamente estabiliza o sistema de lipoproteínas e supre ~50 mg/dia de demanda exógena líquida em um adulto não grávido, é de aproximadamente 50–90 mg/dL (sensibilidade 40–110 mg/dL). Trata-se de um cenário calculado, não de um mínimo fisiológico comprovado.
Conclusões. A média atual do colesterol total plasmático em adultos nos EUA, de ~188 mg/dL (NHANES 2017–2018), excede o limite mínimo de transporte estimado pelo modelo por um fator que depende das premissas, mas que é consistentemente > 2. Esse excedente é metabolicamente tolerado, está causalmente ligado ao risco de ASCVD por partícula de apoB e não é necessário para nenhuma função fisiológica conhecida. As diretrizes clínicas que recomendam a redução do LDL-C para a prevenção da ASCVD operam em um registro epistêmico diferente (redução de eventos em ensaios clínicos) do que este artigo (modelagem de balanço de massa); os dois são complementares, não estão em conflito.
1. Vocabulário baseado em compartimentos
Todas as afirmações sobre colesterol neste artigo especificam (i) o compartimento, (ii) a forma química e (iii) as unidades. Confundir as concentrações clínicas do perfil lipídico com a massa de colesterol nos tecidos ou no corpo inteiro é a fonte da maioria dos erros quantitativos na literatura popular e educacional. A terminologia a seguir é utilizada ao longo de todo o texto. [1]
| Termo | Significado | Unidades típicas |
| Colesterol plasmático / colesterol sérico | Concentração de colesterol total na fração sanguínea correspondente (calculada ou medida diretamente em um perfil lipídico de rotina) | mg/dL ou mmol/L |
| LDL-C / HDL-C / VLDL-C no plasma | Colesterol transportado pela classe de lipoproteína indicada no plasma | mg/dL ou mmol/L |
| LDL-P / HDL-P | Concentração numérica de LDL ou HDL partículas (normalmente medidas por espectroscopia de RMN) | LDL-P em nmol/L; HDL-P em µmol/L (observe as diferentes ordens de magnitude) |
| Colesterol livre no plasma / plasma éster de colesterila | Distribuição química do colesterol plasmático entre as formas não esterificada e esterificada (normalmente ~30% / ~70%) | mg/dL, mmol/L ou % de colesterol total no plasma |
| Massa de colesterol plasmático | Colesterol total no plasma × volume plasmático; a massa absoluta de colesterol circulante no plasma em um determinado momento | g (= mg/dL × dL de plasma / 1000) |
| Massa de colesterol circulante | Massa de colesterol plasmático + colesterol transportado nas membranas dos eritrócitos (que se troca rapidamente com o plasma) | g |
| Concentração de colesterol nos tecidos | Colesterol por unidade de massa de tecido (por exemplo, cérebro: ~23 mg/g de peso úmido) | mg/g de peso úmido ou seco |
| Colesterol celular/subcelular | Colesterol em um tipo específico de célula, membrana de organela ou reservatório | mol% de lipídios de membrana; µg/mg proteína |
| Colesterol total | Massa de colesterol em todo o corpo, em todos os tecidos e fluidos | g |
| Limite mínimo de transporte estimado pelo modelo | Concentração plasmática mínima de colesterol calculada que satisfaz as funções estruturais e de transporte do sistema de lipoproteínas circulantes, sob os pressupostos indicados | mg/dL |
| ■ As unidades de partículas de lipoproteínas são convenções da RMN
A análise de subfrações de lipoproteínas por RMN (LipoProfile e similares) apresenta o LDL-P em nanomolar (nmol/L), refletindo a faixa de aproximadamente 10¹⁵–10¹⁸ partículas/L, típica em adultos. A HDL-P é convencionalmente relatada em micromolar (µmol/L), pois a HDL é mais abundante em termos de partículas. Este artigo utiliza as convenções de RMN em todo o texto e converte os valores para partículas por dL por meio de cálculos aritméticos explícitos. |
| ■ Plasma x soro
Os exames de lipídios clínicos de rotina são realizados no soro ou no plasma; a diferença nos valores medidos de colesterol é pequena (normalmente < 3%). A menos que seja especificado, todas as concentrações de colesterol circulante referem-se tanto ao plasma quanto ao soro, de forma intercambiável. |
2. Distribuição sistêmica e balanço de massa
2.1 Colesterol total
O colesterol total no corpo de um adulto é de aproximadamente 120–150 g, com ajuste em função do peso corporal. O intervalo reflete a variabilidade entre indivíduos e entre métodos em estudos de distribuição tecidual. [2][3] As citações em livros didáticos mais antigos, que indicam cerca de 35 g, referem-se apenas ao Pool A de troca rápida de Goodman (fígado + plasma + eritrócitos + parte das vísceras) no modelo cinético de traçador, e não ao conteúdo total do corpo. A análise quantitativa direta dos tecidos (Sabine, 1977, recapitulada em revisões modernas) situa o colesterol corporal total em humanos adultos no valor mais alto, com o cérebro, o tecido conjuntivo — incluindo o adiposo — e o músculo esquelético contribuindo, cada um, com aproximadamente 25–35 g. [2][3]
O modelo de traçador de três reservatórios de Goodman define um Reservatório A de troca rápida (fígado, plasma, eritrócitos, tecido esplâncnico) de 15–30 g, um Reservatório B de troca lenta (músculo esquelético, tecido adiposo, tecido conjuntivo denso) de 35–60 g, e um reservatório cineticamente isolado no SNC de aproximadamente 30–35 g. [4][5] Somente o compartimento plasmático contém 3–7 g de colesterol, dependendo do volume plasmático e da concentração plasmática medida de colesterol total.
2.2 Distribuição tecidual
Distribuição com base na suposição de ~140 g de colesterol corporal total (valor médio representativo). Todos os dados referem-se à massa de colesterol nos tecidos. [2][3]
| Compartimento | Colesterol (g) | % do total do corpo | Forma química predominante |
| Cérebro / SNC (mielina + membranas neurais) | 30–35 | ~22–25% | >99,51 TP9T livre (não esterificado) |
| Músculo esquelético | ~25–30 | ~18–22% | Livre (membrana plasmática) |
| Tecido conjuntivo, tecido adiposo, fluidos corporais | ~25–32 | ~18–23% | Misto; o CE se acumula com a idade no tendão/dura-máter |
| Pele | ~12–18 | ~9–13% | Grátis |
| Outras vísceras (pulmão, rim, intestino, etc.) | ~12–18 | ~9–13% | Predominantemente gratuito |
| Fígado | ~4–6 | ~3–4% | FC + CE misto |
| Plasma / reservatório circulante | 3–7 | ~2–5% | ~70% CE / ~30% FC |
| Coração, baço, glândulas supra-renais (por órgão) | <1 unidade cada | <1% | Alta densidade por grama (glândulas supra-renais ≥ 25 mg/g) |
O SNC contém aproximadamente 22–251 TP9T de colesterol corporal, apresentando a maior concentração tecidual (aproximadamente 23 mg/g de peso úmido). [5][6] A barreira hematoencefálica é impermeável ao colesterol das lipoproteínas; todo o estoque de colesterol do SNC é sintetizado localmente. O colesterol dos neurônios corticais é renovado com uma meia-vida de 6 meses a 5 anos; o colesterol da mielina é renovado na ordem de décadas. O efluxo líquido do SNC ocorre principalmente como 24S-hidroxicolesterol, que atravessa a barreira hematoencefálica e é eliminada do plasma. [5][6][7]
2.3 Massa de colesterol plasmático em diferentes concentrações de colesterol total plasmático
A massa de colesterol plasmático é o produto do volume plasmático pela concentração plasmática de colesterol total. Para um volume plasmático representativo de 3,0 L:
| TC plasmático (mg/dL) | Massa de colesterol no plasma (g, 3,0 L de plasma) | Contexto clínico |
| 50 | 1.5 | Abaixo da faixa neonatal típica; mutações raras com perda de função (LOF) |
| 80 | 2.4 | Relatado PCSK9 Intervalo de homozigotos para LOF |
| 100 | 3.0 | Inibidor da PCSK9 metas durante o tratamento |
| 150 | 4.5 | Meta terapêutica no tratamento intensivo de redução de lipídios |
| 188 | 5.6 | Média entre adultos nos EUA (NHANES 2017–2018) [8] |
| 220 | 6.6 | Ligeiramente elevado |
| 280 | 8.4 | Intervalo de FH heterozigótica |
| ■ O volume plasmático varia de acordo com o tamanho corporal
O volume plasmático em adultos é de aproximadamente 40–45 mL/kg de peso corporal (~2,8–3,2 L para um adulto de 70 kg, ~3,5–4,0 L para um adulto de 90 kg). Todos os cálculos de massa plasmática neste artigo utilizam um valor representativo de 3,0 L, salvo indicação em contrário. |
2.4 Distribuição subcelular e o sensor de colesterol do retículo endoplasmático
Na maioria das células não neurais, a membrana plasmática contém 60–90% de colesterol celular para cada 30–40 mol% de lipídios da membrana plasmática, enquanto o retículo endoplasmático mantém apenas 3–6 mol%. [9][10] O gradiente é regulado pelo SREBP2, em conjunto com o SCAP e o Insig: quando o colesterol no RE ultrapassa ~5 mol%, o SCAP retém o SREBP2 no RE e a síntese é suprimida. [11] Das et al. (eLife 2014) classificaram o colesterol da membrana plasmática em três reservatórios funcionais utilizando uma sonda de Perfringolisina O (PFO*): um pool sequestrado pela esfingomielina (~15 mol% de lipídios da MP), um pool “essencial” necessário para a viabilidade celular e um pool “acessível” que flui para o RE para regular a síntese. [11][12] A reserva acessível — e não o colesterol PM em geral — é o sinal regulador.
| ▲ O limiar de ligação do PFO* se aplica às bicamadas da membrana plasmática, e não às monocamadas de lipoproteínas.
O limiar de acessibilidade de 35 mol% ao PFO* nas membranas plasmáticas reflete a arquitetura da bicamada e a formação de complexos entre esfingomielina e colesterol, características específicas da membrana plasmática. [11][12] As superfícies do LDL e do HDL são monocamadas de fosfolipídios estabilizadas por apolipoproteínas; elas apresentam composição lipídica, assimetria das camadas e restrições de empacotamento diferentes. O limiar não deve ser aplicado diretamente às superfícies das lipoproteínas sem uma análise mais aprofundada. |
2.5 Faturamento diário
De novo em todo o corpo síntese de colesterol em adultos é de aproximadamente 10 mg/kg/dia (~700 mg/dia em um adulto de 70 kg, ~880 mg/dia em um adulto de 88 kg). O fígado contribui com apenas ~10% da síntese total em seres humanos; a maior parte ocorre fora do fígado. [13] Estudos com traçadores em três compartimentos sobre a renovação do colesterol plasmático indicam uma taxa de produção total (síntese mais absorção alimentar) de ~1,0–1,2 g/dia em indivíduos com níveis normais de lipídios. [4] A ingestão alimentar (~300–500 mg/dia em uma dieta ocidental, com absorção de ~30–50%) é compensada pela regulação negativa da síntese endógena. [14]
3. Arquitetura das lipoproteínas e distribuição do colesterol
3.1 Composição de uma partícula representativa de LDL de 22 nm
A reconstrução a seguir é de Hevonoja et al. (BBA 2000) para uma partícula representativa de LDL com 22 nm de diâmetro. [15][16][17]
| Componente | Moléculas / partículas | Fração mássica (%) | Localização |
| Ésteres de colesterol (CE) | ~1,600 | 40–45% | Núcleo |
| Colesterol não esterificado (FC) | ~600 | 8–10% | ~400 amostras superficiais, ~200 amostras do núcleo |
| Triglicerídeos (TG) | ~170 | 5–9% | Núcleo |
| Fosfatidilcolina | ~450 | } 19–21% combinado | Monocamada superficial |
| Esfingomielina | ~185 | (total de fosfolipídios) | Monocamada superficial |
| ApoB-100 (uma única cópia) | 1 | 20–25% | Envolve a superfície |
O colesterol total por partícula representativa de LDL é de aproximadamente 2.200 moléculas; o FC de superfície representa aproximadamente 18% de Colesterol LDL. Algumas referências gerais citam cerca de 1.500 de colesterol por partícula média de LDL, refletindo diferentes métodos de cálculo da média na distribuição do tamanho das partículas de LDL; ambos os números são descrições da tendência central de uma população inerentemente heterogênea. [16]
| ▲ O LDL é heterogêneo.
A LDL in vivo apresenta um tamanho de aproximadamente 22–27,5 nm, com variação substancial na composição; LDL pequeno e denso contém menos colesterol por partícula e é rica em TG, enquanto o LDL grande e flutuante contém mais. A reconstrução de Hevonoja é uma partícula representativa da tendência central e não deve ser aplicada acriticamente a todas as espécies de LDL. |
3.2 Relação entre a fração livre e a fração esterificada no plasma
Medições enzimáticas e cromatográficas diretas em soro humano saudável mostram que o colesterol livre no plasma representa cerca de 25–30% do colesterol plasmático total, com a fração esterificada representando cerca de 70–75%. [18][19] Uma relação FC/CE elevada está associada à disfunção da LCAT, à quilomicronemia familiar e, em alguns estudos, a um sinal aterogênico independente. [20]
3.3 Colesterol livre na superfície: papel estrutural
O colesterol livre na superfície da lipoproteína se intercala entre as cadeias acílicas dos fosfolipídios, com seu grupo 3β-hidroxil projetando-se para a interface aquosa e sua estrutura rígida esterol anel alinhado com as caudas lipídicas. Essa “condensação” reduz o volume livre na monocamada, diminui sua permeabilidade à água e aumenta a estabilidade mecânica da partícula. [21][22] O FC em ~25 mol% de lipídios de superfície é compatível com uma monocamada líquida ordenada e bem compactada; essa configuração favorece a estabilidade das partículas e a mobilidade lateral para o processamento enzimático. [23]
3.4 Troca de colesterol livre
O colesterol livre na superfície das lipoproteínas encontra-se em equilíbrio espontâneo com as membranas celulares e outras partículas de lipoproteínas por meio da difusão aquosa passiva. O tempo de meia-vida de troca varia inversamente à curvatura da superfície: ~5 min para o HDL nascente, ~45 min para o LDL. [21][23] Esse sistema cinético mantém uma atividade termodinâmica quase uniforme do colesterol em todas as superfícies lipídicas extracelulares. [22][23]
4. Ésteres de colesterol: transporte de carga
Os ésteres de colesterol são totalmente hidrofóbicos e se encontram no núcleo da lipoproteína na forma de gotículas líquidas ou de cristal líquido. Os ésteres de colesterol (CE) no LDL representam 40–45% da massa da partícula e fornecem a maior parte do colesterol transportado às células por meio da endocitose mediada por receptores, onde a lipase ácida lisossômica libera o colesterol livre para uso. [17]
CETP transporta a CE do HDL para as lipoproteínas contendo apoB em troca de triglicerídeos, enriquecendo apoB partículas que transportam colesterol. Uma fração substancial do CE do núcleo das partículas de apoB reflete, portanto, o colesterol que passou pelas células periféricas, pelo plasma e pelo HDL antes de ser transferido para o LDL, somando-se aos estoques de colesterol hepático secretados como VLDL. [24]
5. Maturação do HDL
O HDL em formação é secretado na forma de apoA-I com baixo teor de lipídios, que adquire fosfolipídios e colesterol livre das células periféricas por meio de ABCA1, formando uma partícula discóide composta por duas moléculas de apoA-I na conformação de “cinturão duplo”. [25] A LCAT, ativada pela apoA-I, transfere um grupo acil da posição sn-2 da fosfatidilcolina para a FC da superfície, gerando CE que migra para o núcleo hidrofóbico. [23][25]
À medida que o CE se acumula, a bicamada discóide torna-se esférica. O HDL2 maduro atinge um diâmetro de ~10–12 nm e transporta ~30–60 moléculas de colesterol por partícula (principalmente CE), com ~5–15 FC na superfície. [23] O CE retorna diretamente ao fígado por meio de SR-B1 ou é transferido para partículas de apoB por meio da CETP para eliminação hepática por meio de LDLR. [23][24]
6. Necessidades teciduais: síntese de novo e captação exógena
6.1 A maioria dos tecidos com células nucleadas é capaz de sintetizar colesterol de novo
Todas as células com núcleo do corpo humano expressam a via biossintética completa do mevalonato-colesterol. [13][26] Em condições normais, a maioria dos tecidos não depende totalmente do suprimento contínuo de colesterol exógeno proveniente do plasma; o equilíbrio quantitativo entre a síntese local e a captação derivada das lipoproteínas varia de acordo com o tecido, a idade e o estado fisiológico.
| Tecido | Fonte primária de colesterol | Notas |
| Cérebro / SNC | Síntese local (astrócitos → neurônios por meio de apoE) | O BBB exclui o colesterol das lipoproteínas; efluxo líquido por meio do colesterol 24S-OH [7] |
| Músculo esquelético | Síntese predominantemente local | Baixa demanda por um novo esterol |
| Pele | Síntese local ~90% | Apoia a função de barreira |
| Córtex adrenal | Misturado: LDLR > SR-B1 em humanos; o inverso em roedores [27][28] | Os buffers de CE armazenados atendem à demanda aguda por esteróides |
| Gônadas (testículos, ovários) | Misto: LDLR + SR-B1; dependente do estado reprodutivo | A gravidez e a lactação aumentam a demanda |
| Placenta | LDL e HDL maternos; apenas durante a gravidez | Fora do escopo da análise de adultos não grávidas |
| Fígado | Síntese + alimentar + transporte reverso | Regulador principal; secreta VLDL |
Na fisiologia adrenocortical e gonadal humana, a endocitose mediada pelo LDLR tem maior peso quantitativo do que o SR-B1 no transporte do colesterol — ao contrário do padrão observado em roedores, nos quais o SR-B1 é predominante. No entanto, o SR-B1 continua sendo expresso e biologicamente ativo nos tecidos esteroidogênicos humanos, e a perda de função do SR-B1 em humanos produz anormalidades sutis, mas reais, na resposta do cortisol estimulada pelo ACTH. A natureza de via mista do suprimento de colesterol esteroidogênico humano deve ser preservada em qualquer discussão mecanicista. [27][28]
6.2 Cinética do receptor de LDL: os ensaios in vitro e in vivo não são intercambiáveis
In vitro: Em fibroblastos humanos em cultura, a ligação de alta afinidade da apoB-100 do LDL atinge a saturação em concentrações da proteína do LDL inferiores a 50 µg/mL (Brown & Goldstein). [29][30] Catapano e colegas (2024) descrevem isso como uma meia-saturação correspondente a um equivalente plasmático de LDL-C de ~2,5 mg/dL, e combinam isso com a observação de que o LDL-C no líquido intersticial é de ~20% do LDL-C plasmático para argumentar que um LDL-C plasmático de ~12,5 mg/dL saturaria o LDLR tecidual. [31] Esse argumento se baseia em suposições intermediárias sobre a relação entre a massa da proteína LDL e a do colesterol, a composição do fluido intersticial e a uniformidade do comportamento do receptor de LDL (LDLR) nos fibroblastos; este artigo cita o argumento sem endossá-lo como um limiar comprovado em humanos.
In vivo: A depuração de LDL em nível de órgão em ratos e hamsters (Spady & Dietschy) resulta em um Km ≈ 90 mg/dL — cerca de 30 vezes maior, o que reflete camadas limite sem agitação, permeabilidade capilar e densidade de receptores, e não a afinidade intrínseca. [32] Esse valor obtido in vivo em roedores não é diretamente aplicável aos limites de absorção de colesterol no tecido humano.
| ▲ A cinética de saturação do receptor não constitui um limiar claro para a administração em humanos.
A cadeia (Km de fibroblastos in vitro → LDL-C equivalente ao plasmático → saturação do LDLR no fluido intersticial em células adrenais/gonadais) depende de suposições que não foram validadas de forma independente em seres humanos, e os hepatócitos são expostos ao sangue sinusoidal, e não ao fluido intersticial comum. A afirmação substancialmente defensável é empírica: seres humanos com LDL-C plasmático muito baixo, por genética ou em terapia, não apresentaram sinais clínicos de insuficiência no transporte de colesterol nas populações estudadas. |
6.3 Observações empíricas: níveis muito baixos de LDL-C em seres humanos
Os portadores de mutações homozigotas de perda de função do gene PCSK9 constituem uma pequena amostra relatada. Os homozigotos afro-americanos do Dallas Heart Study, descritos originalmente, apresentavam níveis plasmáticos de LDL-C ao longo da vida de 14–29 mg/dL (colesterol total normalmente entre 50 e 80 mg/dL) sem anomalias clínicas evidentes nas poucas descrições publicadas. [33][34] O número total relatado de indivíduos homozigotos desse tipo em todo o mundo continua sendo pequeno; portanto, essas evidências corroboram a ausência de danos de grande magnitude, mas não comprovam a existência de um mínimo fisiológico universal.
As evidências mais robustas provêm de ensaios clínicos randomizados com inibidores da PCSK9. Fourier (n = 27.564) apresentaram um tempo mediano de acompanhamento após a randomização de 2,2 anos, com mediana do LDL-C durante o tratamento de 30 mg/dL e sem indícios de insuficiência adrenal, hipogonadismo, declínio cognitivo, derrame hemorrágico, ou doença muscular. [35] ODISSEIA O estudo OUTCOMES (n = 18.924) apresentou um tempo mediano de acompanhamento de 2,8 anos, com resultados semelhantes em termos de segurança. [36] A Extensão Aberta do Estudo FOURIER (FOURIER-OLE, n = 6.635 dos 27.564 iniciais) apresentaram uma mediana 5,0 anos de evolocumabe exposição, trazendo exposição cumulativa nesse subconjunto para cerca de 8,4 anos, sem que tenha surgido nenhum novo indício de segurança. [37] Trata-se de um amplo conjunto de dados prospectivos sobre segurança; eles não constituem uma medição direta dos limites de tolerância do colesterol em seres humanos, mas delimitam por cima a faixa de segurança do LDL-C plasmático comprovada empiricamente.
Estudos sobre o linfoma periférico humano indicam que a concentração de LDL no fluido intersticial é de aproximadamente 10–20% da concentração plasmática de LDL. [38][39] Esses dados são descritivos e não estabelecem um limiar medido de saturação do tecido humano.
7. Uma estimativa do colesterol mínimo circulante com base no modelo de transporte
| ■ O que esta seção é e o que ela não é.
Esta seção apresenta uma estimativa, baseada em modelo de transporte, da concentração mínima de colesterol no plasma que, simultaneamente, (i) mantém a integridade estrutural do sistema de lipoproteínas circulantes e (ii) supre a demanda diária líquida de colesterol exógeno de um adulto não grávido em condições normais. A estimativa é um cálculo, não uma medição. As equações e os valores dos parâmetros encontram-se na Seção 11. |
7.1 Integridade estrutural
Todas as partículas de lipoproteínas circulantes necessitam de colesterol livre na superfície para estabilizar sua monocamada de fosfolipídios. Utilizando contagens de partículas compatíveis com RMN (LDL-P em nmol/L; HDL-P em µmol/L) e conversão explícita de unidades: [15][17]
| Classe de partículas | Concentração em aulas (clínica) | Partículas por dL | Área superficial (FC) por partícula | Contribuição do FC de superfície (mg/dL) |
| LDL | LDL-C 100 mg/dL; LDL-P ~1.200 nmol/L | ~7,1 × 10¹⁶ | ~400 | ~18 |
| HDL | Colesterol HDL (HDL-C) 50 mg/dL; Partículas de HDL (HDL-P) ~30 µmol/L | ~1,8 × 10¹⁸ | ~10 | ~12 |
| VLDL / IDL | Causado por TG; contagem de partículas ~10¹⁵–10¹⁶ /dL | — | ~variável | ~2–3 |
| FC da superfície total (modelo, TC de referência ~190) | — | — | — | ~30–33 |
| FC plasmático total medido (~28% de TC no TC 190) | — | — | — | ~50–55 (inclui FC principal e outros) |
A FC de superfície derivada do modelo, de aproximadamente 30–33 mg/dL, com valores lipídicos clínicos típicos, somada à FC do núcleo, de aproximadamente 10–15 mg/dL (o LDL possui cerca de 200 FC do núcleo por partícula, enquanto o HDL apresenta uma contribuição menor do FC do núcleo), além de uma pequena contribuição dos resíduos de quilomicrões e da Lp(a), totaliza aproximadamente 45–55 mg/dL de FC no plasma. Isso corresponde à fração de FC plasmática medida diretamente, de ~25–30% do colesterol total, com colesterol total em ~190 mg/dL. [18][19]
7.2 Approvisionamento diário líquido de colesterol exógeno aos tecidos periféricos
Transporte reverso de colesterol Estudos com traçadores em adultos saudáveis (Turner et al., 2012) estimam a taxa de efluxo de FC dos tecidos de todo o corpo em 3,79 ± 0,88 mg/kg/h, valor relatado no artigo original como ≈8 g/dia; isso corresponde a ~6,4 g/dia para 70 kg ou ~8 g/dia para 88 kg (peso corporal médio aproximado do estudo). [40] Trata-se do fluxo de troca bidirecional, e não da demanda líquida de fornecimento. A estimativa da captação exógena líquida obrigatória pelos tecidos cuja síntese local é insuficiente em condições basais, em uma adulta não grávida, é de aproximadamente:
| Tecido / função | Consumo diário estimado de colesterol | Fonte de abastecimento |
| Esteroidogênese adrenal (valor basal) | ~30–60 mg/dia | Em grande parte mediada pelo LDLR; contribuição do SR-B1 |
| Esteroidogênese gonadal (adulto não grávido, valor basal) | < 10 mg/dia | Predominantemente mediado pelo LDLR em seres humanos |
| Ácido biliar síntese | ~400 mg/dia | Reserva hepática; não se trata de uma demanda periférica |
| Renovação da membrana extra-hepática (total) | ~600–700 mg/dia | Obtido por síntese local |
| Demanda exógena líquida obrigatória (adulto não grávido, linha de base) | Da ordem de dezenas de mg/dia (estimativa central de ~50 mg/dia) | Nível de LDL-C plasmático muito baixo |
| ▲ Adulto não grávida, apenas valor basal.
A gravidez praticamente dobra o colesterol plasmático materno; a demanda placentária é de uma ordem de magnitude diferente e não é considerada aqui. Doenças agudas, estresse intenso e regeneração tecidual rápida também aumentam essa demanda. |
7.3 Limite mínimo de transporte estimado pelo modelo combinado
Resultados do modelo para uma faixa de valores de TC do plasma:
| Cenário de TC de plasma | FC da superfície do LDL (mg/dL) | FC da HDL (mg/dL) | FC plasmática total (mg/dL) | Notas |
| TC 188 (média dos EUA) | ~18 | ~12 | ~50–55 | Linha de base |
| TC 100 (alvo do PCSK9-Rx) | ~10 | ~10 | ~30 | Adequado; bem acima de qualquer piso estrutural |
| TC 70 (homozigoto para perda de função do PCSK9) | ~4 | ~9 | ~17 | No nível do piso do modelo ou próximo a ele; tolerado empiricamente |
| TC 50 (genética extrema) | ~2 | ~8 | ~13 | Abaixo de qualquer caso empírico bem validado |
Conclusão: O modelo de transporte prevê que um adulto não grávido, em condições basais, possa manter um sistema funcional de lipoproteínas circulantes e atender a uma demanda tecidual exógena de aproximadamente 50 mg/dia, com colesterol total plasmático da ordem de 50–90 mg/dL (faixa de sensibilidade de 40 a 110 mg/dL). A forma química permanece, aproximadamente, 70% esterificada e 30% não esterificada nessa faixa. A estimativa do piso do modelo está em concordância numérica com o CT plasmático observado em homozigotos para LOF do PCSK9 (~50–80 mg/dL), fornecendo uma corroboração independente das observações clínicas e genéticas. A média atual do CT plasmático em adultos nos EUA é de ~188 mg/dL [8] excede o limite mínimo estimado pelo modelo em aproximadamente 2 a 4 vezes, dependendo do cenário de sensibilidade utilizado.
7.4 Limites de sensibilidade
| A hipótese variou | Alcance testado | Efeito na estimativa do piso de transporte |
| Volume plasmático | 2,5–4,0 L | Escalonamento inverso; efeito primário sobre a massa absoluta, efeito secundário sobre mg/dL |
| LDL-P para um determinado valor de LDL-C | ± 50% de amostra representativa | Afeta o componente FC proporcionalmente |
| FC superficial por partícula de LDL | 300–500 | ± 15% no componente FC |
| FC por partícula de HDL | 5–15 | ± 25% no componente FC do HDL |
| Demanda periférica líquida | 20–150 mg/dia | Adiciona uma margem de 5 a 30 mg/dL |
| Gravidez / doença aguda | — | Modelo não aplicável; a demanda pode aumentar de 2 a 10 vezes |
| Intervalo plausível combinado (adulto não grávido, valor basal) | — | ~40–110 mg/dL de colesterol total (CT) no plasma |
8. Causalidade da ApoB e risco de ASCVD
A questão de saber se os tecidos periféricos necessitam de colesterol circulante é distinta daquela de saber se as lipoproteínas circulantes contendo apoB são causalmente aterogênicas. Randomização mendeliana em mais de 50 instrumentos genéticos (LDLR, PCSK9, HMGCR, NPC1L1, APOB, ANGPTL3, LPL, CETP) demonstrou que o risco ao longo da vida de ASCVD está relacionado à exposição cumulativa às partículas de apoB, e não apenas à concentração absoluta de LDL-C, com um relação log-linear entre a apoB e o risco de ocorrência de eventos, mesmo com níveis de LDL-C inferiores a 20 mg/dL. [41][42]
O risco aterogênico associado a uma determinada massa de colesterol circulante é determinado pelo número de partículas (contagem de apoB) e pelo tempo de permanência, e não pelo fato de o colesterol ser necessário para o transporte aos tecidos. As duas questões são fisiologicamente ortogonais.
9. Contexto evolutivo e mecanicista
A biossíntese do colesterol requer 11 moléculas de O₂ e cerca de 100 equivalentes de ATP por molécula de colesterol, além de envolver intermediários tóxicos. [43][44] Esse custo está de acordo com a hipótese de que o colesterol surgiu à medida que os eucariotos se adaptaram ao aumento da pressão do oxigênio na atmosfera; o colesterol consome O₂ durante a síntese e reduz a permeabilidade da membrana ao O₂, funcionando parcialmente como um sumidouro de O₂. [44]
Sob a perspectiva de modelagem desenvolvida na Seção 7, o sistema de transporte de lipoproteínas é melhor interpretado como (i) um veículo para a distribuição de triglicerídeos — o LDL é um subproduto cinético do catabolismo do VLDL — e (ii) um tampão cinético do potencial químico que mantém uma atividade uniforme dos esteróis em todas as superfícies lipídicas extracelulares. [22][23] De acordo com essa interpretação, a concentração de colesterol circulante na população moderna é determinada principalmente pela capacidade de depuração hepática (densidade do LDLR, atividade da PCSK9, atividade da IDOL), e não pela demanda periférica.
10. Conclusões
- O colesterol total no corpo de um adulto é de aproximadamente 120–150 g; o compartimento plasmático, de 3–7 g, representa 2–5%, e não 10–30%, do conteúdo corporal.
- O cérebro contém cerca de 30–35 g (22–25% do colesterol do corpo), inteiramente sintetizado localmente e isolado do plasma pela barreira hematoencefálica.
- Uma partícula representativa de LDL de 22 nm contém cerca de 2.200 moléculas de colesterol (cerca de 1.600 CE + cerca de 600 FC, das quais cerca de 400 FC estão na superfície). O LDL é heterogêneo; esses números descrevem uma reconstrução representativa.
- O colesterol plasmático é composto por aproximadamente 70% esterificado e aproximadamente 30% livre.
- Nos seres humanos, a endocitose mediada pelo LDLR tem maior importância do que a mediada pelo SR-B1 na captação de colesterol pelas glândulas supra-renais e genitais, mas o SR-B1 continua biologicamente ativo.
- Utilizando contagens de partículas de lipoproteínas consistentes com a RMN (LDL-P em nmol/L, HDL-P em µmol/L), o colesterol total plasmático mínimo estimado pelo modelo para um adulto não grávido em condições basais é de aproximadamente 50–90 mg/dL (sensibilidade de 40–110 mg/dL). Trata-se de um cenário calculado, e não de um mínimo fisiológico humano medido diretamente.
- O fornecimento diário líquido de colesterol exógeno aos tecidos periféricos em um adulto não grávido, em condições basais, é da ordem de dezenas de mg/dia, valor facilmente atendido com níveis plasmáticos de LDL-C na faixa de 15 a 30 mg/dL, observados em portadores de LOF para PCSK9 e em participantes de ensaios clínicos com inibidores de PCSK9 (mediana do estudo FOURIER: 2,2 anos; mediana do subconjunto FOURIER-OLE: 5,0 anos adicionais), nos quais não foi relatado nenhum sinal de insuficiência no fornecimento de colesterol.
- O colesterol total plasmático médio em adultos nos EUA, de aproximadamente 188 mg/dL (NHANES 2017–2018), excede o limite mínimo de transporte estimado pelo modelo em cerca de 2 a 4 vezes, dependendo do cenário de sensibilidade utilizado. Esse excedente é metabolicamente tolerado, está causalmente associado ao risco de ASCVD com base na apoB e não é necessário para nenhuma função fisiológica conhecida em um adulto não grávido em condições basais.
11. Apêndice de métodos
11.1 Escopo
Este apêndice especifica as equações, os valores dos parâmetros e os pressupostos utilizados na estimativa do modelo de transporte da Seção 7.
11.2 Equações
Massa de colesterol no plasma:
M_plasma = TC × V_plasma / 1000 (g)
onde TC está em mg/dL e V_plasma está em dL.
Conversão da concentração de partículas por RMN para partículas por dL:
N_partículas_por_dL = [class-P] × 10⁻⁹ × N_A / 10 (LDL: [LDL-P] em nmol/L)
N_partículas_por_dL = [P da classe] × 10⁻⁶ × N_A / 10 (HDL: [P do HDL] em µmol/L)
onde N_A = 6,022 × 10²³ /mol. O /10 converte L em dL.
Exemplo prático, LDL-P = 1.200 nmol/L:
1.200 × 10⁻⁹ × 6,022 × 10²³ / 10 = 7,23 × 10¹⁶ partículas/dL
Exemplo prático, HDL-P = 30 µmol/L:
30 × 10⁻⁶ × 6,022 × 10²³ / 10 = 1,81 × 10¹⁸ partículas/dL
Contribuição da FC de superfície proveniente de uma classe de lipoproteínas:
[FC]_classe (mg/dL) = N_partículas_por_dL × n_FC,classe × MW_col × 1000 / N_A
Exemplo prático: LDL com LDL-C = 100 (N = 7,23 × 10¹⁶/dL), 400 FC de superfície por partícula, MW_chol = 386,7 g/mol:
7,23 × 10¹⁶ × 400 × 386,7 × 1.000 / 6,022 × 10²³ = ~18,2 mg/dL
Valor mínimo total do transporte estimado pelo modelo:
TC_piso ≈ Σ [FC]_classe,superfície + Σ [FC]_classe,núcleo + CE_núcleo,estrutural + CE_reserva_para_entrega
11.3 Valores dos parâmetros utilizados
| Parâmetro | Valor central | Fonte / base | Faixa de sensibilidade |
| Volume plasmático | 3,0 L (= 30 dL) | ~42 mL/kg × 70 kg | 2,5–4,0 L |
| LDL-P com LDL-C de 100 mg/dL | ~1.200 nmol/L (= 7,1 × 10¹⁶ /dL) | Dados do NMR LipoProfile; MESA, Júpiter | 600–1.800 nmol/L |
| HDL-P com HDL-C de 50 mg/dL | ~30 µmol/L (= 1,8 × 10¹⁸ /dL) | Dados de RMN | 20–40 µmol/L |
| FC superficial por partícula de LDL | 400 | Reconstrução de Hevonoja 2000 [15] | 300–500 |
| FC por partícula de HDL (total) | ~10 | Análises da composição do HDL2/3; calculadas a partir do HDL-C/HDL-P com base nos valores centrais | 5–15 |
| Demanda exógena periférica líquida diária (adulto não grávido) | ~50 mg/dia | Média ponderada das estimativas das glândulas supra-renais, gônadas e membranas [26][27] | 20–150 mg/dia |
| Colesterol MW | 386,7 g/mol | Corrigido | n/a |
| Número de Avogadro | 6,022 × 10²³ /mol | Corrigido | n/a |
11.4 Premissas
O cálculo do piso de transporte depende dos pressupostos explicitados aqui:
- O adulto não grávido encontra-se em estado de equilíbrio metabólico em condições basais (sem gravidez, sem doença aguda, sem regeneração tecidual rápida).
- O volume plasmático é considerado como um único valor representativo, em vez de ser calculado individualmente.
- A contagem de partículas varia de forma aproximadamente linear com a concentração de colesterol da classe na faixa modelada; essa aproximação deixa de ser válida em valores extremos.
- O FC da superfície por LDL é obtido a partir da reconstrução de Hevonoja; a composição da superfície varia um pouco de acordo com o tamanho das partículas e o estado de remodelação.
- O FC por partícula de HDL reflete a composição esférica madura do HDL2/3; o HDL discóide nascente apresenta um teor de FC por partícula diferente.
- A demanda periférica líquida é estimada na ordem de dezenas de mg/dia; isso agrega valores no nível tecidual que apresentam ampla incerteza em diferentes estados endócrinos.
- Lp(a), quilomícrons, e os resíduos de quilomicrões não são modelados separadamente; incluí-los aumentaria ligeiramente a contribuição do FC.
- O modelo é de estado estacionário e desconsidera as variações diurnas, pós-prandial, e variação sazonal.
11.5 O que este apêndice não estabelece
Este apêndice não estabelece um mínimo fisiológico humano medido para o colesterol total. Ele fornece uma estimativa transparente e reproduzível baseada em um modelo de transporte. Evidências empíricas diretas sobre a segurança de níveis muito baixos de LDL-C plasmático em seres humanos (portadores de LOF do PCSK9; participantes de ensaios clínicos com inibidores do PCSK9) são apresentadas separadamente na Seção 6.3 e continuam sendo a evidência mais sólida de que o limite mínimo previsto pelo modelo é fisiologicamente plausível. As duas fontes de evidência são independentes: um modelo de transporte e uma observação clínica/genética. Elas são numericamente consistentes — ambas indicam que o colesterol total plasmático pode cair para ~50–80 mg/dL sem consequências clínicas identificadas em um adulto não grávido —, mas nenhuma delas, isoladamente, é determinante.
Referências
- Mach F, Baigent C, Catapano AL, et al. 2019 ESC/EAS Guidelines for the management of dyslipidaemias: lipid modification to reduce cardiovascular risk. Eur Heart J. 2020;41(1):111-188. doi:10.1093/eurheartj/ehz455
- Pikuleva IA, Curcio CA. Cholesterol in the retina: the best is yet to come. Prog Retin Eye Res. 2014;41:64-89. doi:10.1016/j.preteyeres.2014.03.002
- Mc Auley MT, Wilkinson DJ, Jones JJ, Kirkwood TB. A whole-body mathematical model of cholesterol metabolism and its age-associated dysregulation. BMC Syst Biol. 2012;6:130. Published 2012 Oct 10. doi:10.1186/1752-0509-6-130
- Goodman DS, Noble RP, Dell RB. Three-pool model of the long-term turnover of plasma cholesterol in man. J Lipid Res. 1973;14(2):178-188.
- Dietschy JM, Turley SD. Thematic review series: brain Lipids. Cholesterol metabolism in the central nervous system during early development and in the mature animal. J Lipid Res. 2004;45(8):1375-1397. doi:10.1194/jlr.R400004-JLR200
- Björkhem I, Meaney S. Brain cholesterol: long secret life behind a barrier. Arterioscler Thromb Vasc Biol. 2004;24(5):806-815. doi:10.1161/01.ATV.0000120374.59826.1b
- Lütjohann D, Breuer O, Ahlborg G, et al. Cholesterol homeostasis in human brain: evidence for an age-dependent flux of 24S-hydroxycholesterol from the brain into the circulation. Proc Natl Acad Sci U S A. 1996;93(18):9799-9804. doi:10.1073/pnas.93.18.9799
- Gao Y, Shah LM, Ding J, Martin SS. US Trends in Cholesterol Screening, Lipid Levels, and Lipid-Lowering Medication Use in US Adults, 1999 to 2018. J Am Heart Assoc. 2023;12(3):e028205. doi:10.1161/JAHA.122.028205
- Canfrán-Duque A, Rotllan N, Zhang X, et al. Macrophage-Derived 25-Hydroxycholesterol Promotes Vascular Inflammation, Atherogenesis, and Lesion Remodeling. Circulation. 2023;147(5):388-408. doi:10.1161/CIRCULATIONAHA.122.059062
- van Meer G, Voelker DR, Feigenson GW. Membrane lipids: where they are and how they behave. Nat Rev Mol Cell Biol. 2008;9(2):112-124. doi:10.1038/nrm2330
- Das A, Brown MS, Anderson DD, Goldstein JL, Radhakrishnan A. Three pools of plasma membrane cholesterol and their relation to cholesterol homeostasis. Elife. 2014;3:e02882. Published 2014 Jun 11. doi:10.7554/eLife.02882
- Schoop V, Martello A, Eden ER, Höglinger D. Cellular cholesterol and how to find it. Biochim Biophys Acta Mol Cell Biol Lipids. 2021;1866(9):158989. doi:10.1016/j.bbalip.2021.158989
- Dietschy JM, Turley SD, Spady DK. Role of liver in the maintenance of cholesterol and low density lipoprotein homeostasis in different animal species, including humans. J Lipid Res. 1993;34(10):1637-1659.
- Jones PJ, Pappu AS, Hatcher L, Li ZC, Illingworth DR, Connor WE. Dietary cholesterol feeding suppresses human cholesterol synthesis measured by deuterium incorporation and urinary mevalonic acid levels. Arterioscler Thromb Vasc Biol. 1996;16(10):1222-1228. doi:10.1161/01.atv.16.10.1222
- Hevonoja T, Pentikäinen MO, Hyvönen MT, Kovanen PT, Ala-Korpela M. Structure of low density lipoprotein (LDL) particles: basis for understanding molecular changes in modified LDL. Biochim Biophys Acta. 2000;1488(3):189-210. doi:10.1016/s1388-1981(00)00123-2
- Kumar V, Butcher SJ, Öörni K, et al. Three-dimensional cryoEM reconstruction of native LDL particles to 16Å resolution at physiological body temperature. PLoS One. 2011;6(5):e18841. Published 2011 May 9. doi:10.1371/journal.pone.0018841
- Feingold KR. Introduction to Lipids and Lipoproteins. In: Feingold KR, Adler RA, Ahmed SF, et al., eds. Endotext. South Dartmouth (MA): MDText.com, Inc.; January 14, 2024.
- Leonard PJ, Shaper AG, Jones KW. Relationship between free and total cholesterol values in human serum. Am J Clin Nutr. 1965;17(6):377-380. doi:10.1093/ajcn/17.6.377
- Saier EL, Nordstrand E, Juves MW, Hartsock RJ. The ratio of free to esterified cholesterol in serum. A new discriminant in correlating lipid metabolism with disease state. Am J Clin Pathol. 1979;71(1):83-87. doi:10.1093/ajcp/71.1.83
- Bagheri B, Alikhani A, Mokhtari H, Rasouli M. The Ratio of Unesterified/esterified Cholesterol is the Major Determinant of Atherogenicity of Lipoprotein Fractions. Med Arch. 2018;72(2):103-107. doi:10.5455/medarh.2018.72.103-107
- Lange Y, Steck TL. Cholesterol homeostasis and the escape tendency (activity) of plasma membrane cholesterol. Prog Lipid Res. 2008;47(5):319-332. doi:10.1016/j.plipres.2008.03.001
- Maxfield FR, Tabas I. Role of cholesterol and lipid organization in disease. Nature. 2005;438(7068):612-621. doi:10.1038/nature04399
- Rothblat GH, Phillips MC. High-density lipoprotein heterogeneity and function in reverse cholesterol transport. Curr Opin Lipidol. 2010;21(3):229-238. doi:10.1097/mol.0b013e328338472d
- Barter PJ, Brewer HB Jr, Chapman MJ, Hennekens CH, Rader DJ, Tall AR. Cholesteryl ester transfer protein: a novel target for raising HDL and inhibiting atherosclerosis. Arterioscler Thromb Vasc Biol. 2003;23(2):160-167. doi:10.1161/01.atv.0000054658.91146.64
- Shih AY, Sligar SG, Schulten K. Maturation of high-density lipoproteins. J R Soc Interface. 2009;6(39):863-871. doi:10.1098/rsif.2009.0173
- Cerqueira NM, Oliveira EF, Gesto DS, et al. Cholesterol Biosynthesis: A Mechanistic Overview. Biochemistry. 2016;55(39):5483-5506. doi:10.1021/acs.biochem.6b00342
- Azhar S, Reaven E. Scavenger receptor class BI and selective cholesteryl ester uptake: partners in the regulation of steroidogenesis. Mol Cell Endocrinol. 2002;195(1-2):1-26. doi:10.1016/s0303-7207(02)00222-8
- Gomez-Sanchez CE, Gomez-Sanchez EP. Cholesterol Availability and Adrenal Steroidogenesis. Endocrinology. 2024;165(4):bqae032. doi:10.1210/endocr/bqae032
- Brown MS, Goldstein JL. A receptor-mediated pathway for cholesterol homeostasis. Science. 1986;232(4746):34-47. doi:10.1126/science.3513311
- Goldstein JL, Brown MS. Familial hypercholesterolemia: identification of a defect in the regulation of 3-hydroxy-3-methylglutaryl coenzyme A reductase activity associated with overproduction of cholesterol. Proc Natl Acad Sci U S A. 1973;70(10):2804-2808. doi:10.1073/pnas.70.10.2804
- Borghi C, Bragagni A. There are those who would like zero LDL cholesterol. Eur Heart J Suppl. 2024;26(Suppl 1):i19-i22. Published 2024 Apr 17. doi:10.1093/eurheartjsupp/suae012
- Spady DK, Bilheimer DW, Dietschy JM. Rates of receptor-dependent and -independent low density lipoprotein uptake in the hamster. Proc Natl Acad Sci U S A. 1983;80(11):3499-3503. doi:10.1073/pnas.80.11.3499
- Cohen JC, Boerwinkle E, Mosley TH Jr, Hobbs HH. Sequence variations in PCSK9, low LDL, and protection against coronary heart disease. N Engl J Med. 2006;354(12):1264-1272. doi:10.1056/NEJMoa054013
- Zhao Z, Tuakli-Wosornu Y, Lagace TA, et al. Molecular characterization of loss-of-function mutations in PCSK9 and identification of a compound heterozygote. Am J Hum Genet. 2006;79(3):514-523. doi:10.1086/507488
- Sabatine MS, Giugliano RP, Keech AC, et al. Evolocumab and Clinical Outcomes in Patients with Cardiovascular Disease. N Engl J Med. 2017;376(18):1713-1722. doi:10.1056/NEJMoa1615664
- Schwartz GG, Steg PG, Szarek M, et al. Alirocumab and Cardiovascular Outcomes after Acute Coronary Syndrome. N Engl J Med. 2018;379(22):2097-2107. doi:10.1056/NEJMoa1801174
- O’Donoghue ML, Giugliano RP, Wiviott SD, et al. Long-Term Evolocumab in Patients With Established Atherosclerotic Cardiovascular Disease. Circulation. 2022;146(15):1109-1119. doi:10.1161/CIRCULATIONAHA.122.061620
- Sloop CH, Dory L, Roheim PS. Interstitial fluid lipoproteins. J Lipid Res. 1987;28(3):225-237.
- Reichl D, Simons LA, Myant NB, Pflug JJ, Mills GL. The lipids and lipoproteins of human peripheral lymph, with observations on the transport of cholesterol from plasma and tissues into lymph. Clin Sci Mol Med. 1973;45(3):313-329. doi:10.1042/cs0450313
- Turner S, Voogt J, Davidson M, et al. Measurement of reverse cholesterol transport pathways in humans: in vivo rates of free cholesterol efflux, esterification, and excretion. J Am Heart Assoc. 2012;1(4):e001826. doi:10.1161/JAHA.112.001826
- Ference BA, Ginsberg HN, Graham I, et al. Low-density lipoproteins cause atherosclerotic cardiovascular disease. 1. Evidence from genetic, epidemiologic, and clinical studies. A consensus statement from the European Atherosclerosis Society Consensus Panel. Eur Heart J. 2017;38(32):2459-2472. doi:10.1093/eurheartj/ehx144
- Sniderman AD, Thanassoulis G, Glavinovic T, et al. Apolipoprotein B Particles and Cardiovascular Disease: A Narrative Review. JAMA Cardiol. 2019;4(12):1287-1295. doi:10.1001/jamacardio.2019.3780
- Summons RE, Bradley AS, Jahnke LL, Waldbauer JR. Steroids, triterpenoids and molecular oxygen. Philos Trans R Soc Lond B Biol Sci. 2006;361(1470):951-968. doi:10.1098/rstb.2006.1837
- Brown AJ, Galea AM. Cholesterol as an evolutionary response to living with oxygen. Evolution. 2010;64(7):2179-2183. doi:10.1111/j.1558-5646.2010.01011.x

